皱纹盘鲍(Haliotis discus hannai)是中国重要的养殖经济贝类之一,2024年中国鲍养殖产量达25.18万余t[1]。皱纹盘鲍以海带(Laminaria japonica)、龙须菜(Asparagus schoberioides Kunth)等大型藻类为主要食物来源[2],目前,海上浮筏养殖皱纹盘鲍饵料主要是海带,而工厂化养殖则主要依赖人工配合饲料,饲料品质是影响皱纹盘鲍养殖效益及产业可持续发展的关键要素[3]。研究表明,饲料添加剂可通过调控营养代谢、肠道菌群及免疫应答等途径改善鲍的生长性能及机体能力[4]。皱纹盘鲍人工配合饲料中添加适宜剂量的藻粉、益生菌制剂、甘露寡糖等能有效改善皱纹盘鲍的生长性能、体成分、消化酶活性、抗氧化能力和免疫机能[5-7]。
岩藻黄质(Fucoxanthin,FX)是一种广泛存在于褐藻、硅藻、金藻、黄绿藻等藻类及海洋贝类中的类胡萝卜素[8],而类胡萝卜素作为促生长剂、抗氧化剂已在多种水产动物中应用[9]。岩藻黄质在褐藻中含量最丰富,分子结构中特有的单环氧基、联烯基使其具有显著的生物活性[10]。目前,已从海带、铜藻(Sargassum horneri)、羊栖菜(Sargassum fusiforme)、三角褐指藻(Phaeodactylum tricornutum)、马尾藻(Scagassum)等多种藻类中分离得到岩藻黄质[11-15]。岩藻黄质具有抗氧化、抗炎症、免疫调节等有益功能,人和动物体内不能合成,因此在功能性食品、医药及动物饲料等领域具有广阔的应用前景[10,16-17]。可见,从海洋动植物中提取岩藻黄质添加于人工配合饲料并饲喂水产动物具有重要的研究及实践意义[18]。已有研究表明,岩藻黄质可提高黄颡鱼(Pelteobagrus fulvidraco)的生长速度、消化和抗氧化能力[19];对H2O2诱导斑马鱼(Barchydanio rerio)的衰老具有抑制作用[20];对赤海胆(Pseudocentrotus depressus)的机体免疫力和排卵数量有提升作用[21]。可见,岩藻黄质对水产动物具有促生长、提高存活率、提升免疫力和抗氧化能力的功能。然而,岩藻黄质对皱纹盘鲍的功能性研究鲜有报道。
鉴于皱纹盘鲍对海带具有天然的摄食偏好,且海带中岩藻黄质含量较高[8],本研究中提取海带岩藻黄质,以不同水平添加至皱纹盘鲍基础饲料中进行饲喂试验,探究海带岩藻黄质对皱纹盘鲍幼鲍生长性能、抗氧化能力及非特异性免疫功能的影响,为海藻岩藻黄质在鲍产业中的应用提供了科学依据与数据支撑,可提高幼鲍品质及经济效益,促进鲍产业健康持续发展。
1 材料与方法
1.1 材料
1.1.1 海带岩藻黄质 采用酶提法提取海带岩藻黄质粗提液,离心并浓缩至红褐色黏稠状,采用冷冻干燥获得纯度为13.6%的岩藻黄质干粉,置于阴凉干燥处保存备用。
1.1.2 试验幼鲍 皱纹盘鲍幼鲍购自威海市某养殖场,试验选用同批次、同规格、健康无病的个体,初始平均壳长为(12.45±0.86)mm,初始平均体质量为(0.19±0.05)g。
1.2 方法
1.2.1 试验饲料配制 皱纹盘鲍幼鲍基础饲料,见表1。向基础饲料中分别添加0%(对照)、0.20%、0.40%、0.60%、0.80%、1.00%的海带岩藻黄质[19,22-23],分别记为F0、F2、F4、F6、F8、F10组,混合均匀并用超微颗粒水产饲料膨化机加工制成861 μm颗粒饲料,于60 ℃烘干,冷却后保存于-20 ℃冰箱中备用。
表1 基础饲料组成及营养水平(干物质基础)
Tab.1 Basic feed composition and nutritional level (dry matter basis) %
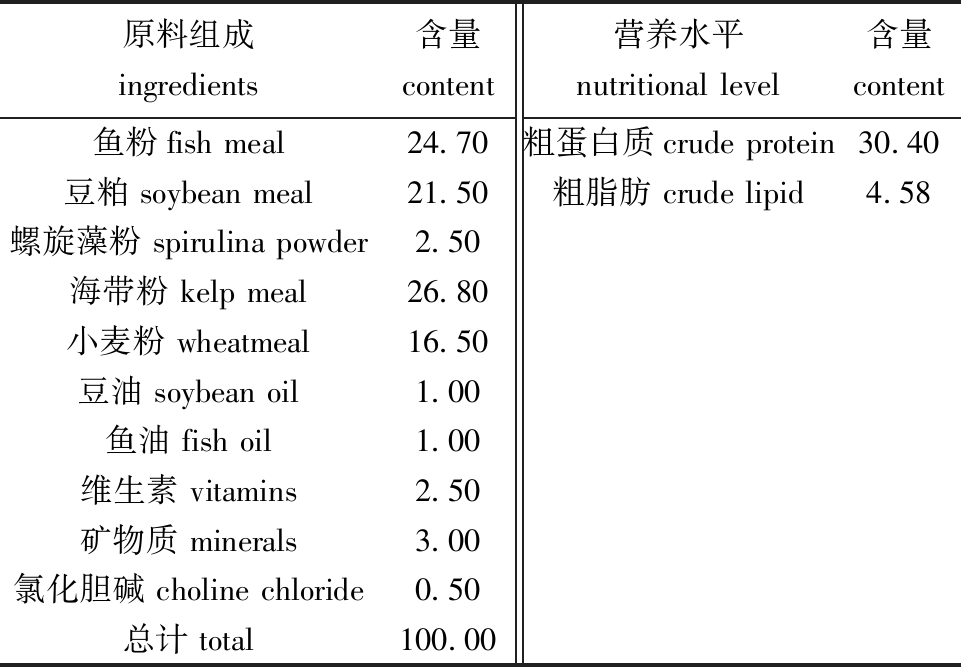
注:维生素和矿物质购自威海金牌生物科技股份有限公司;营养水平均为计算值。
Note:Vitamins and minerals were purchased from Weihai Gold Biotechnology Company Limited.;Nutrition levels are calculated.
原料组成ingredients含量content营养水平nutritional level含量content鱼粉fish meal24.70粗蛋白质crude protein30.40豆粕 soybean meal21.50粗脂肪 crude lipid4.58螺旋藻粉 spirulina powder2.50海带粉 kelp meal26.80小麦粉 wheatmeal16.50豆油 soybean oil1.00鱼油 fish oil1.00维生素 vitamins2.50矿物质 minerals3.00氯化胆碱 choline chloride 0.50总计 total100.00
1.2.2 皱纹盘鲍幼鲍饲养试验 将试验幼鲍随机投放于F0、F2、F4、F6、F8、F10组(每组设置3个平行试验)的18个玻璃钢水槽(0.8 m×0.6 m×0.4 m)中,每个水槽放置300粒。分别投喂添加0%(对照)、0.20%、0.40%、0.60%、0.80%、1.00%海带岩藻黄质的试验饲料。采用自然光照和循环流水养殖,每天8:00清池换水,并记录各试验组幼鲍死亡数量;17:00投喂试验饲料,投喂量为鲍体质量的3%~5%,并根据鲍摄食情况进行适当调整,试验持续60 d。
1.2.3 幼鲍生长指标测定 试验后20、40、60 d各试验组随机取幼鲍50只,分别测定其壳长(cm)、体质量(g),同时统计各试验组死亡的幼鲍个数。
1.2.4 幼鲍抗氧化酶活性及非特异性免疫酶活性测定 试验结束时,各试验组随机取20只幼鲍,采用腹足创伤法抽取血淋巴,采用GT 16—3高速冷冻离心机,4 ℃下以5 000 r/min离心10 min,取上清液,置于-80 ℃超低温冰箱中保存备用。
采用南京建成生物工程研究所试剂盒测定皱纹盘鲍幼鲍的抗氧化酶活性,包括:超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)、丙二醛(MDA)。测定非特异性免疫酶活性,包括:酸性磷酸酶(ACP)、碱性磷酸酶(AKP)、溶菌酶(LZM)、酚氧化酶(PO)。
1.3 数据处理
根据测得的生长指标,计算皱纹盘鲍幼鲍的壳长特定生长率(LsGR,%/d)、体质量特定生长率(WsGR,%/d)、存活率(SR,%)。
RLsGR=(lnLt-lnL0)/t×100%,
(1)
RWsGR=(lnWt-lnW0)/t×100%,
(2)
RSR=Nt/N0×100%。
(3)
式中:Lt为幼鲍终末壳长;L0为幼鲍初始壳长;Wt为幼鲍终末体质量;W0为幼鲍初始体质量;Nt为幼鲍终末存活数量;N0为幼鲍初始数量。试验数据采用平均值±标准差(mean±S.D.)表示,采用SPSS 26.0单因素方差分析(one-ANOVA)和Duncan’s多重比较进行数据处理,显著性差异设为0.05。
2 结果与分析
2.1 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍生长性能的影响
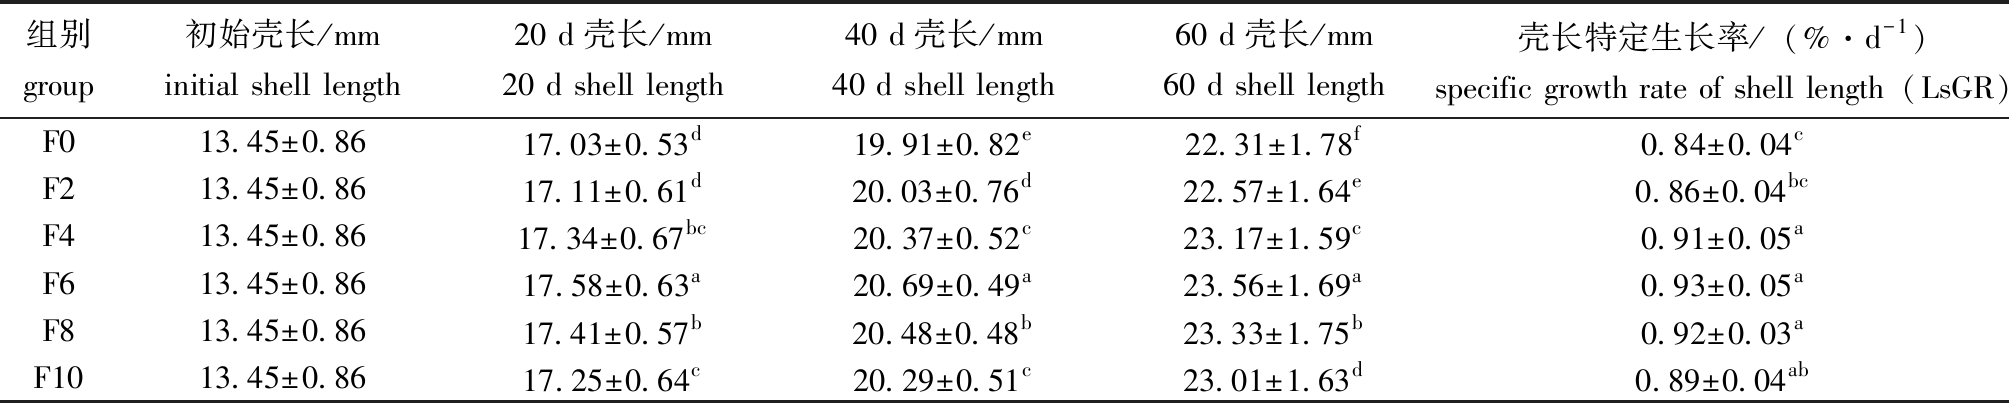
2.1.1 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍壳长的影响 随着饲料中海带岩藻黄质添加量增大,皱纹盘鲍幼鲍的壳长及壳长特定生长率均呈先增大后减小的趋势;饲料中添加0.60%海带岩藻黄质(F6组)时,幼鲍壳长分别在20、40、60 d时皆最大,均显著大于同时期其他试验组(P<0.05),60 d时壳长最大为23.56 mm;饲料中添加0.60%海带岩藻黄质(F6组)时,幼鲍壳长特定生长率最大为0.93%/d,与F0、F2组差异显著(P<0.05)。分析可见,饲料中添加海带岩藻黄质可促进皱纹盘鲍幼鲍壳长生长,且添加量为0.60%时壳长生长最优,添加量为0.80%时次之(表2)。
表2 海带岩藻黄质对皱纹盘鲍幼鲍壳长的影响
Tab.2 Effect of kelp fucoxanthin on the shell length of juvenile abalone,Haliotis discus hannai n=3
注:同列数据上标有不同字母表示不同海带岩藻黄质添加量试验组皱纹盘鲍幼鲍壳长/壳长特定生长率有显著性差异(P<0.05),下同。
Note:Values with different superscripts in the same colum are significant differences (P<0.05) in shell length or shell length specific growth rate of juvenile abalone fed with different kelp fucoxanthin additions,et sequentia.
组别group初始壳长/mminitial shell length20 d壳长/mm20 d shell length40 d壳长/mm40 d shell length60 d壳长/mm60 d shell length壳长特定生长率/(%·d-1)specific growth rate of shell length(LsGR)F013.45±0.8617.03±0.53d19.91±0.82e22.31±1.78f0.84±0.04cF213.45±0.8617.11±0.61d20.03±0.76d22.57±1.64e0.86±0.04bcF413.45±0.8617.34±0.67bc20.37±0.52c23.17±1.59c0.91±0.05aF613.45±0.8617.58±0.63a20.69±0.49a23.56±1.69a0.93±0.05aF813.45±0.8617.41±0.57b20.48±0.48b23.33±1.75b0.92±0.03aF1013.45±0.8617.25±0.64c20.29±0.51c23.01±1.63d0.89±0.04ab
2.1.2 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍体质量的影响 随着饲料中海带岩藻黄质添加量增大,皱纹盘鲍幼鲍的体质量及体质量特定生长率均先增大后减小;饲料中添加0.60%海带岩藻黄质(F6组)时,幼鲍体质量20、40、60 d时皆最大,40、60 d时显著大于其他试验组(P<0.05),60 d时体质量最大为1.78 g;饲料中添加0.60%海带岩藻黄质(F6组)时,幼鲍特定生长率最大为3.02%/d,皆显著大于其他试验组(P<0.05)。分析可见,饲料中添加海带岩藻黄质可促进皱纹盘鲍幼鲍体质量生长,且添加量为0.60%时体质量生长最优,添加量为0.80%时次之(表3)。
表3 海带岩藻黄质对皱纹盘鲍幼鲍体质量的影响
Tab.3 Effect of kelp fucoxanthin on the weight of juvenile abalone,Haliotis discus hannai n=3
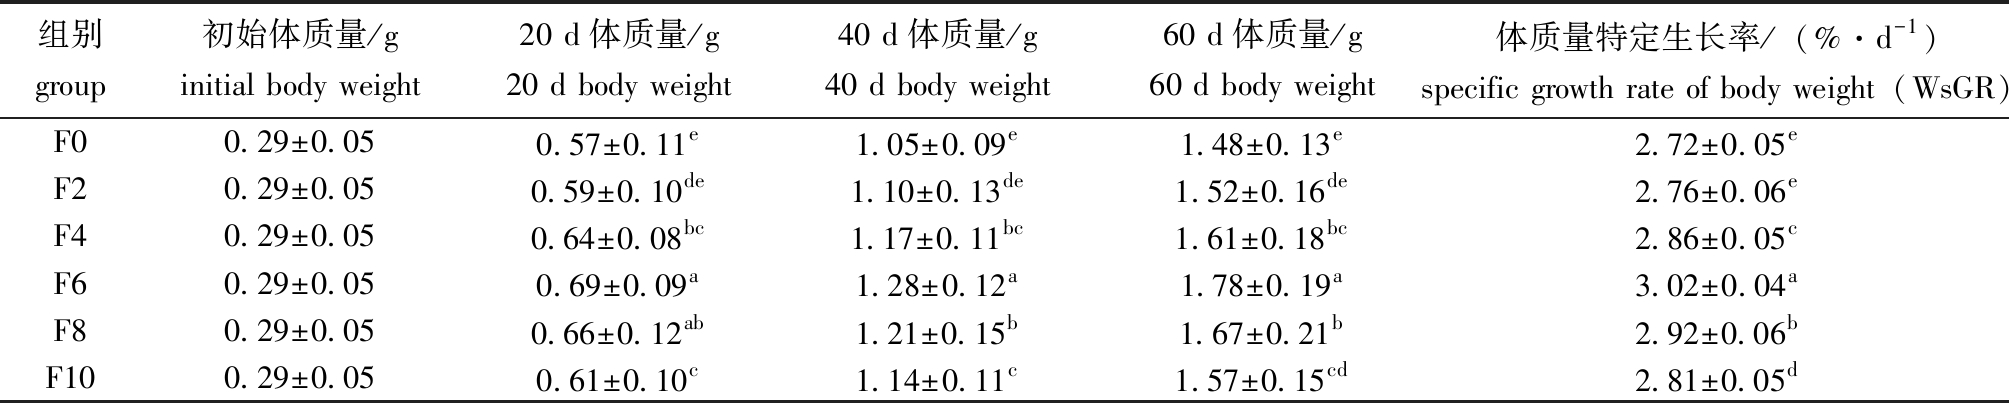
组别group初始体质量/ginitial body weight20 d体质量/g20 d body weight40 d体质量/g40 d body weight60 d体质量/g60 d body weight体质量特定生长率/(%·d-1)specific growth rate of body weight(WsGR)F00.29±0.050.57±0.11e1.05±0.09e1.48±0.13e2.72±0.05eF20.29±0.050.59±0.10de1.10±0.13de1.52±0.16de2.76±0.06eF40.29±0.050.64±0.08bc1.17±0.11bc1.61±0.18bc2.86±0.05cF60.29±0.050.69±0.09a1.28±0.12a1.78±0.19a3.02±0.04aF80.29±0.050.66±0.12ab1.21±0.15b1.67±0.21b2.92±0.06bF100.29±0.050.61±0.10c1.14±0.11c1.57±0.15cd2.81±0.05d
2.1.3 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍存活率的影响 随着饲料中海带岩藻黄质添加量增大,皱纹盘鲍幼鲍的存活率先增大后减小;饲料中添加0.60%海带岩藻黄质(F6组)时,幼鲍存活率20、40、60 d时皆最大,其中20 d时与F4组相等,为100%(P>0.05),40、60 d时皆显著大于其他试验组(P<0.05);60 d时F6组存活率最大,为98.67%(P<0.05),F0组(对照)存活率最小,为90.67%(P<0.05)。分析可见,饲料中添加海带岩藻黄质可提高皱纹盘鲍幼鲍的存活率,且添加量为0.60%时存活率最优,添加量为0.80%时次之(图1)。
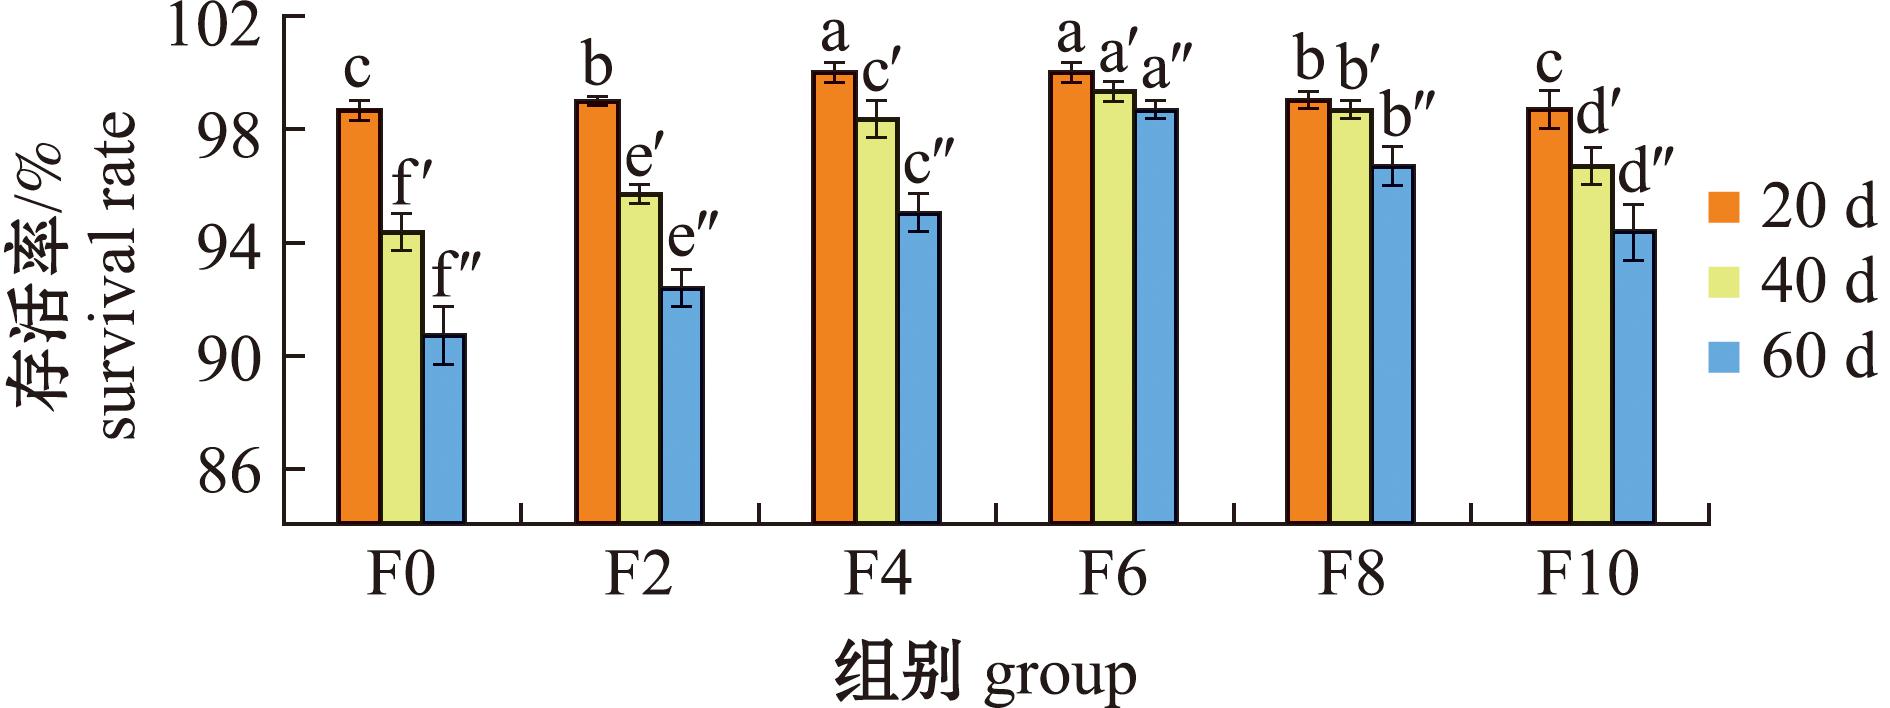
同一时间,不同字母表示不同海带岩藻黄质添加量试验组的皱纹盘鲍幼鲍存活率差异显著(P<0.05)。
Different letters are significant differences (P<0.05) in the survival rate of juvenile abalone fed with different kelp fucoxanthin additions.
图1 海带岩藻黄质对皱纹盘鲍幼鲍存活率的影响
Fig.1 Effect of kelp fucoxanthin on the survival rate of juvenile abalone,Haliotis discus hannai
2.2 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍抗氧化酶活性的影响
随着饲料中海带岩藻黄质添加量增大,皱纹盘鲍幼鲍血淋巴SOD、CAT、GSH-Px 3种抗氧化酶活性均先增大后减小,而MDA含量先减小后增大。饲料中添加0.60%海带岩藻黄质(F6组)时,SOD、CAT、GSH-Px酶活性均最大,分别为77.59 U/mL(P<0.05)、1.99 U/mL和49.38 U/mL(P<0.05);其中,CAT酶活性与F8组无显著性差异(P>0.05),但显著大于其他试验组(P<0.05);F0组(对照)SOD、CAT、GSH-Px酶活性均最低。F6组MAD含量最小,为3.13 μmol/mL(P<0.05),F0组(对照)MAD含量最大,为3.84 μmol/mL(P<0.05)。分析可见,饲料中添加海带岩藻黄质可提高幼鲍血淋巴SOD、CAT、GSH-Px活性、降低MAD含量,且添加量为0.60%时抗氧化能力最优,添加量为0.80%时次之(表4)。
表4 海带岩藻黄质对皱纹盘鲍幼鲍抗氧化酶活性的影响
Tab.4 Effect of kelp fucoxanthin on the antioxidant enzyme activities of juvenile abalone,Haliotis discus hannai n=3
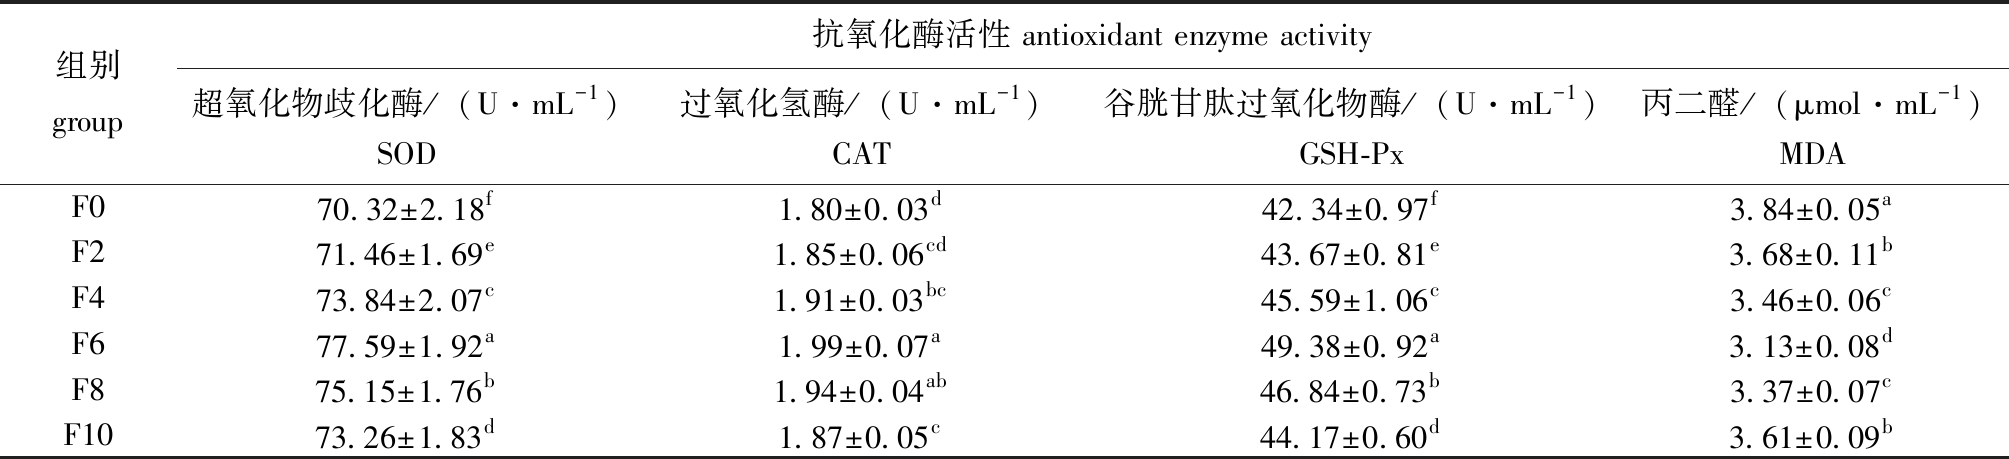
组别group抗氧化酶活性 antioxidant enzyme activity超氧化物歧化酶/(U·mL-1)SOD过氧化氢酶/(U·mL-1)CAT谷胱甘肽过氧化物酶/(U·mL-1)GSH-Px丙二醛/(μmol·mL-1)MDAF070.32±2.18f1.80±0.03d42.34±0.97f3.84±0.05aF271.46±1.69e1.85±0.06cd43.67±0.81e3.68±0.11bF473.84±2.07c1.91±0.03bc45.59±1.06c3.46±0.06cF677.59±1.92a1.99±0.07a49.38±0.92a3.13±0.08dF875.15±1.76b1.94±0.04ab46.84±0.73b3.37±0.07cF1073.26±1.83d1.87±0.05c44.17±0.60d3.61±0.09b
2.3 饲料中添加海带岩藻黄质对皱纹盘鲍幼鲍非特异性免疫酶活性的影响
随着饲料中海带岩藻黄质添加量增大,皱纹盘鲍幼鲍血淋巴ACP、AKP、LZM、PO 4种非特异性免疫酶活性均呈先增大后减小的趋势。饲料中添加0.60%海带岩藻黄质(F6组)时,ACP、AKP、LZM、PO酶活性皆最高,分别为16.67 King’s/100 mL(P<0.05)、7.81 King’s/100 mL(P<0.05)、4.12 U/mL(P<0.05)、3.83 U/mL(P<0.05);F0组(对照)ACP、AKP、LZM、PO酶活性皆最低。分析可见,饲料中添加海带岩藻黄质可提高幼鲍血淋巴ACP、AKP、LZM、PO活性,且添加量为0.60%时非特异性免疫力最优,添加量为0.80%时次之(表5)。
表5 海带岩藻黄质对皱纹盘鲍幼鲍非特异性免疫酶活性的影响
Tab.5 Effect of kelp fucoxanthin on the non-specific immune enzyme activities of juvenile abalone,Haliotis discus hannai n=3
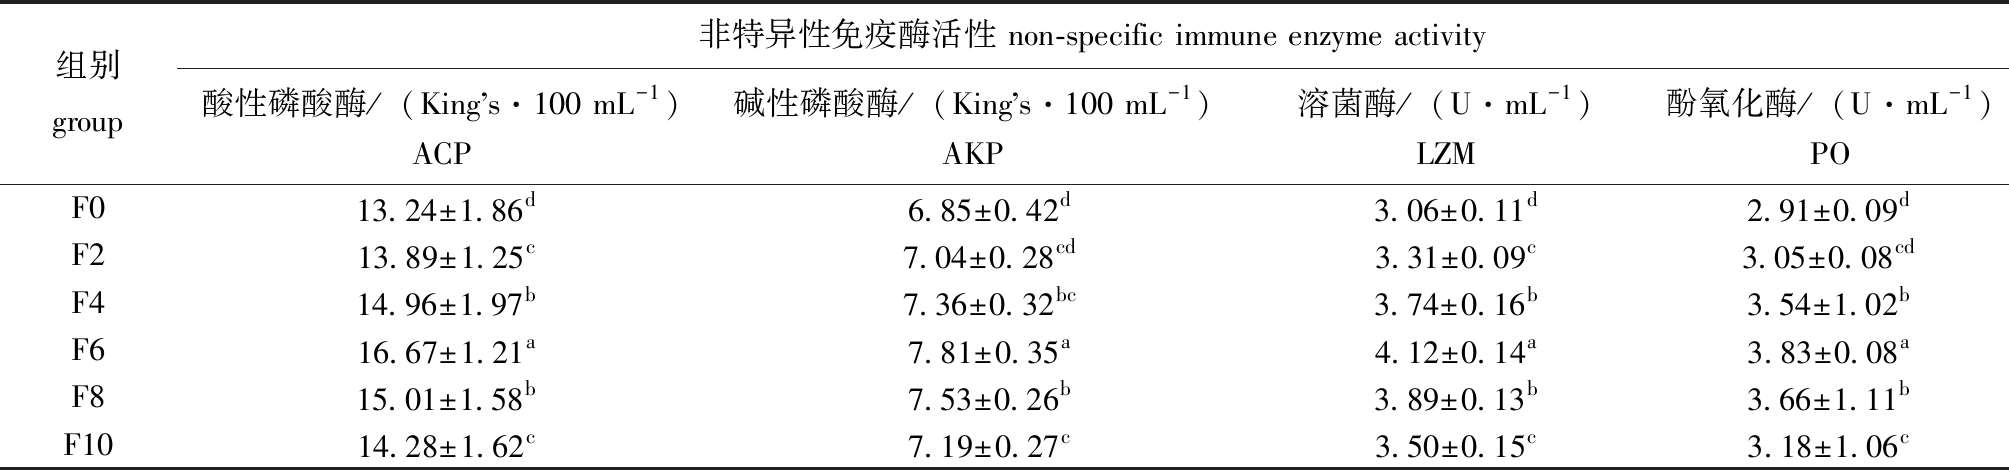
组别group非特异性免疫酶活性 non-specific immune enzyme activity酸性磷酸酶/(King s·100 mL-1)ACP碱性磷酸酶/(King s·100 mL-1)AKP溶菌酶/(U·mL-1)LZM酚氧化酶/(U·mL-1)POF013.24±1.86d6.85±0.42d3.06±0.11d2.91±0.09dF213.89±1.25c7.04±0.28cd3.31±0.09c3.05±0.08cdF414.96±1.97b7.36±0.32bc3.74±0.16b3.54±1.02bF616.67±1.21a7.81±0.35a4.12±0.14a3.83±0.08aF815.01±1.58b7.53±0.26b3.89±0.13b3.66±1.11bF1014.28±1.62c7.19±0.27c3.50±0.15c3.18±1.06c
3 讨论
3.1 海带岩藻黄质对皱纹盘鲍幼鲍生长性能的影响
藻源及生物活性物质作为饲料添加剂,对水产动物的生长、抗氧化及免疫等功能呈现“激素样”剂量效应。研究表明,饲料中添加浒苔粉、褐藻寡糖可促进皱纹盘鲍、虹鳟(Oncorhynchus mykiss)、脊尾白虾(Exopalaemon carinicauda)、大菱鲆(Scophthalmus maximus)、凡纳滨对虾(Litopenaeus vannamei)等多种水产动物的生长性能[5,24-26],但最优添加量不同。岩藻黄质作为褐藻中关键的脂溶性类胡萝卜素,因其独特的生物活性而备受关注[8,10,27],然而,目前其对水生动物生长性能的影响研究尚不充分。张腾闲[19]研究发现,饲料中添加岩藻黄质可提高黄颡鱼蛋白酶、淀粉酶等消化酶的活性,提高蛋白质效率,降低饲料系数,从而提高其生长速率与存活率;且添加量为80 mg/kg时效果最优。张淼等[20]研究发现,在斑马鱼胚胎培养液中分别加入2.5、5 μmol/L岩藻黄质可显著抑制H2O2诱导的胚胎衰老、提高胚胎存活率。本研究中,饲料中添加0.40%~1.00%的海带岩藻黄质能显著提升皱纹盘鲍幼鲍的壳长特定生长率、体质量特定生长率;在试验40、60 d时皆显著提高幼鲍的存活率。这一促生长效应与张腾闲[19]、张淼等[20]的研究结果一致。推测皱纹盘鲍喜食海带等大型海藻,其生理代谢系统可能对海带岩藻黄质存在天然的适应性及正向响应。本研究中“2.2节”与“2.3节”结果显示,海带岩藻黄质显著增强了幼鲍的抗氧化与非特异性免疫能力,意味着机体用于维持免疫稳定与应对氧化应激的消耗降低,而将更多能量和营养物质用于生长,这与Naidoo等[3]提出的优质饲料可通过改善鲍的生理状态进而促进鲍生长的观点相符。然而,本研究中显示,岩藻黄质添加量为0.60%时幼鲍生长、存活最优,与张腾闲[19]、张淼等[20]的结果不同。推测饲料中岩藻黄质最优添加量与岩藻黄质来源藻类、试验动物种类、基础饲料配方、养殖环境等多重因素有关;适宜剂量的岩藻黄质能最优地激活与生长和代谢相关的生理通路,而过高剂量可能对机体产生一定的代谢压力或干扰其他营养素的平衡。
3.2 海带岩藻黄质对皱纹盘鲍幼鲍抗氧化酶活性的影响
生物体内的抗氧化防御系统依赖于SOD、CAT、GSH-Px等关键酶的协同作用,以清除过量活性氧自由基;而MDA作为脂质过氧化物的终产物,其含量可有效反映机体所受的氧化损伤程度[28]。研究表明,藻源活性物质是增强此防御系统的有效途径。饲料中添加海带粉、岩藻多糖可提高凡纳滨对虾、刺参(Apostichopus japoniccus)的SOD、CAT、GSH-Px酶活性,并降低MDA含量[29-30]。
岩藻黄质含有的单环氧基、联烯基等特殊基团,是其抗氧化活性的结构基础,且具备浓度依赖性[16]。研究表明,从长角马尾藻(Sargassum siliquastrum)、海带等藻类中提取的岩藻黄质可有效清除1,1-二苯基-2-三硝基苯肼(DPPH)、2,2′-联氮-双-3-乙基苯丙噻唑啉-6-磺酸(ABTS)、羟基等多种自由基,并对UV-B(中波紫外线)辐射或H2O2介导的细胞损伤具有显著的保护作用[10,15,31-33]。然而,关于岩藻黄质对水生动物抗氧化酶系统影响的研究仍显匮乏。张淼等[20]在斑马鱼模型中发现,岩藻黄质能抑制H2O2诱导的氧化应激。张腾闲[19]研究发现,饲料中添加0.32 g/kg岩藻黄质可提高黄颡鱼SOD、CAT酶活性,降低MDA含量。推测岩藻黄质可能通过直接清除自由基与激活机体自身抗氧化防御系统的双重途径发挥作用。
本研究中,饲料中添加海带岩藻黄质能显著提高皱纹盘鲍幼鲍SOD、CAT、GSH-Px抗氧化酶活性,降低MDA含量,与张腾闲[19]的研究结果一致。研究表明,添加量为0.60%时,SOD、CAT、GSH-Px活性最大,MDA含量最小,与张腾闲[19]在黄颡鱼中的研究结果不同。可见,不同水产动物对岩藻黄质需求量不同。推测岩藻黄质的生物活性与其来源藻类密切相关,不同水产动物体内抗氧化酶系统的构成与调控机制不同,岩藻黄质活性成分组成与生物利用度存在差异。
3.3 海带岩藻黄质对皱纹盘鲍幼鲍非特异性免疫酶活性的影响
贝类的非特异性免疫系统依赖于多种免疫因子的协同作用,其中水解酶类发挥着核心功能,关键的水解酶类包括ACP、AKP,二者是评估免疫细胞活性和吞噬功能的重要指标[34]。LZM则通过水解细菌细胞壁的肽聚糖,构成一道直接的体液免疫防线[35]。此外,PO作为氧化还原酶类的代表,其活性水平直接反映软体动物酚氧化酶原系统的激活状态与非特异性免疫防御能力[36]。研究表明,藻源活性物质是提升水产动物非特异性免疫的有效策略,饲料中添加海带粉、岩藻多糖、褐藻寡糖等可提高凡纳滨对虾、脊尾白虾、刺参、大菱鲆的ACP、AKP、LZM、PO等免疫酶活性[25-26,29-30]。岩藻黄质作为褐藻中的特征性功能成分,在牡蛎等水生贝类体内亦存在[8],推测其可能参与基础的免疫调节。岩藻黄质可提高大鼠成骨细胞AKP活性[37];褐藻岩藻黄质在脓毒症小鼠体内可通过靶向抑制干扰素调节因子的磷酸化水平参与先天免疫调节[38]。然而,岩藻黄质对水生动物尤其是贝类免疫影响的研究相对匮乏。Kawakami等[39]研究发现,岩藻黄质可增强海胆吞噬细胞的活性,参与海胆的非特异性免疫防御机制;张腾闲[19]研究发现,岩藻黄质可提高黄颡鱼的血细胞呼吸爆发活性,且添加量为320 mg/kg时血细胞呼吸爆发活性最高。
本研究中,饲料中添加海带岩藻黄质能显著提升皱纹盘鲍幼鲍ACP、AKP、LZM、PO 4种非特异性免疫酶的活性。这与Kawakami[21]、张腾闲[19]的研究结果一致。结合“3.2节”所述,推测岩藻黄质的抗氧化能力有助于维持免疫细胞的稳定性和功能完整性。研究表明,岩藻黄质可通过调节TLR/MyD88等保守的信号轴,有效提升机体的基础免疫水平与酶活性。本研究中,ACP、AKP、LZM、PO活性皆有提升,推测岩藻黄质可能通过类似的信号转导机制,系统增强皱纹盘鲍的免疫预防功能。本研究中,海胆岩藻黄质添加量为0.60%时4种非特异性免疫酶活性最优,与张腾闲[19]的研究结果不同。可见,水生动物对岩藻黄质的免疫响应具有物种特异性。因此,针对特定水产养殖对象精准确定岩藻黄质的藻源种类及其最适添加量,是实现岩藻黄质高效利用的关键。
4 结论
1)在饲料中添加适量的海带岩藻黄质可提高皱纹盘鲍幼鲍的WsGR、LsGR和SR,表明适宜的海带岩藻黄质添加量有利于皱纹盘鲍幼鲍的生长和存活。
2)在饲料中添加适量海带岩藻黄质可显著提高皱纹盘鲍幼鲍的SOD、CAT、GSH-Px活性,降低MDA含量,表明适宜的岩藻黄质添加量可以提升幼鲍的抗氧化能力。
3)饲料中添加适量海带岩藻黄质可显著提高皱纹盘鲍幼鲍的ACP、AKP、LZM、PO活性,表明适宜的岩藻黄质添加量可以提升幼鲍的非特异性免疫能力。
4)本试验条件下,对皱纹盘鲍幼鲍最适宜的海带岩藻黄质添加量为0.60%。
[1] 农业农村部渔业渔政管理局,全国水产技术推广总站,中国水产学会.2025中国渔业统计年鉴[M].北京:中国农业出版社,2025.Bureau of Fisheries,Ministry of Agriculture and Rural Affairs,National Fisheries Technology Extension Center,China Society of Fisheries.2025 China fishery statistical yearbook[M].Beijing: China Agriculture Press,2025.(in Chinese)
[2] ALCANTARA L,NORO T.Growth of the abalone Haliotis diversicolor (Reeve) fed with macroalgae in floating net cage and plastic tank[J].Aquaculture Research,2006,37(7):708-717.
[3] NAIDOO K,MANEVELDT G,RUCKK,et al.A comparison of various seaweed-based diets and formulated feed on growth rate of abalone in a land-based aquaculture system[J].Journal of Applied Phycology,2006,18(3):437-443.
[4] 杨熙芸.饲料中甘露寡糖对皱纹盘鲍免疫抗病力的影响及作用机制[D].烟台:鲁东大学,2022.YANG X Y.Effects and underlying mechanism of dietary mannan oligosaccharides on immune and disease resistance of Haliotis discus hannai ino[D].Yantai:Ludong University,2022.(in Chinese)
[5] 王珊珊.饲料中添加浒苔对皱纹盘鲍幼鲍生长、存活及体成分的影响[J].海洋湖沼通报,2021,43(2):91-98.WANG S S.Effects of dietary Enteromorpha prolifra supplementation on growth,survival and body composition of juvenile abalone,Haliotis discus hannai[J].Transactions of Oceanology and Limnology,2021,43(2):91-98.(in Chinese)
[6] 冷晓飞.希瓦氏菌制剂对皱纹盘鲍幼鲍存活和生长影响的现场试验[J].水产学杂志,2022,35(2):53-58.LENG X F.Field test:effects of compound preparations of Shewanella sp.(WA64)and Shewanella sp.(WA65)on growth and survival of juvenile disk abalone Haliotis discus hannai[J].Chinese Journal of Fisheries,2022,35(2):53-58.(in Chinese)
[7] 张瑞标.沼泽红假单胞菌对皱纹盘鲍幼鲍生长性能、抗氧化能力及非特异性免疫的影响[J].饲料研究,2021,44(16):43-47.ZHANG R B.Effect of Rhodopseudomonas palustris on growth performance,antioxidant capacity and nonspecific immunity of juvenile abalone Haliotis discus hannai[J].Feed Research,2021,44(16):43-47.(in Chinese)
[8] 吴跃,林亲录,战鑫.岩藻黄质的功能特性及在食品工业中的应用[J].食品研究与开发,2012,33(10):203-206.WU Y,LIN Q L,ZHAN X.The functional properties of fucoxanthin and its application in food industry[J].Food Research and Development,2012,33(10):203-206.(in Chinese)
[9] 王吉桥,樊莹莹,徐振祥,等.饲料中β-胡萝卜素和虾青素添加量对仿刺参幼参生长及抗氧化能力的影响[J].大连海洋大学学报,2012,27(3):215-220.WANG J Q,FAN Y Y,XU Z X,et al.Effects of dietary β-carotene and astaxanthin levels on anti-oxidation in juvenile sea cucumber Apostichopus japonicus[J].Journal of Dalian Ocean University,2012,27(3):215-220.(in Chinese)
[10] 谭明乾,李佳璇,于潇婷.岩藻黄质的功能特性及其在食品中的应用[J].食品科学技术学报,2021,39(5):9-25.TAN M Q,LI J X,YU X T.Functional properties of fucoxanthin and its application in foods[J].Journal of Food Science and Technology,2021,39(5):9-25.(in Chinese)
[11] 毕可海,张玉莹,孙玉奉,等.超声辅助酶法提取海带岩藻黄素工艺条件研究[J].食品研究与开发,2020,41(16):88-93.BI K H,ZHANG Y Y,SUN Y F,et al.Study on process conditions of ultrasonic assisted enzymatic extraction of fucoxanthin from kelp[J].Food Research and Development,2020,41(16):88-93.(in Chinese)
[12] 陈雅鑫,何袅袅,蔡树芸,等.铜藻中岩藻黄质提取及分离纯化工艺研究[J].食品工业科技,2022,43(17):194-202.CHEN Y X,HE N N,CAI S Y,et al.Study on extraction separation and purification of fucoxanthin from Sargassum horneri[J].Science and Technology of Food Industry,2022,43(17):194-202.(in Chinese)
[13] 金旭东,王俊淇,曹朝清,等.循环超声提取羊栖菜中岩藻黄质的工艺研究[J].食品工业科技,2021,42(17):170-178.JIN X D,WANG J Q,CAO C Q,et al.Study on the technology of extracting fucoxanthin from Hizikia fusiforme by cyclic ultrasound[J].Science and Technology of Food Industry,2021,42(17):170-178.(in Chinese)
[14] KIM S M,JUNG Y J,KWON O N,et al.A potential commercial source of fucoxanthin extracted from the microalga Phaeodactylum tricornutum[J].Applied Biochemistry and Biotechnology,2012,166(7):1843-1855.
[15] 熊海霞,皮彩玉,叶琬褀,等.马尾藻岩藻黄素的提取条件优化及抗氧化、抗炎作用[J].食品研究与开发,2024,45(12):120-127.XIONG H X,PI C Y,YE W Q,et al.Extraction condition optimization and antioxidant and anti-inflammatory effects of fucoxanthin from Sargassum[J].Food Research and Development,2024,45(12):120-127.(in Chinese)
[16] GUVATOVA Z,DALINA A,MARUSICH E,et al.Protective effects of carotenoid fucoxanthin in fibroblasts cellular senescence[J].Mechanisms of Ageing and Development,2020,189:111260.
[17] LIU CL,LIANG A L,HU M L.Protective effects of fucoxanthin against ferric nitrilotriacetate-induced oxidative stress in murine hepatic BNL CL.2 cells[J].Toxicology in Vitro,2011,25(7):1314-1319.
[18] 刘熙麟.海带中岩藻黄质提取工艺研究[J].山东化工,2018,47(23):64-65.LIU X L.Study on extraction process of fucoxanthin from fresh kelp[J].Shandong Chemical Industry,2018,47(23):64-65.(in Chinese)
[19] 张滕闲.姜黄素和岩藻黄质对黄颡鱼生长、消化及部分生化指标影响[D].天津:天津农学院,2017.ZHANG T X.Effects of curcumin and fucoxanthin on growth performance,digestive enzymes activity and biochemical indices of Pelteobagrus fulvidraco[D].Tianjin:Tianjin Agricultural University,2017.(in Chinese)
[20] 张淼,杨迪,魏爽,等.岩藻黄素对H2O2诱导斑马鱼衰老的抑制作用[J].广西科学,2023,30(2):403-412.ZHANG M,YANG D,WEI S,et al.Inhibitory effect of fucoxanthin on H2O2 induced senescence in barchydanio rerio[J].Guangxi Sciences,2023,30(2):403-412.(in Chinese)
[21] KAWAKAMI T,TSUSHIMA M,KATABAMIY,et al.Effect of β,β-carotene,β-echinenone,astaxanthin,fucoxanthin,vitamin A and vitamin E on the biological defense of the sea urchin Pseudocentrotus depressus[J].Journal of Experimental Marine Biology and Ecology,1998,226(2):165-174.
[22] WU Q,WANG L,ZHANG H,et al.Effects of dietary fucoxanthin on growth performance,antioxidant capacity,and immune response of juvenile white shrimp (Litopenaeus vannamei) [J].Fish &Shellfish Immunology,2019,92,583-590.
[23] 王鲁波,薛敏,王嘉,等.天然叶黄素对黄颡鱼生长性能和皮肤着色的影响[J].水产学报,2012,36(7):1102-1110.WANG L B,XUE M,WANG J,et al.Effect of natural xanthophylls on growth performance and body pigmentation of yellow catfish (Pelteobagrus fulvidraco)[J].Journal of Fisheries of China,2012,36(7):1102-1110.(in Chinese)
[24] 汤伟,王祺,李佳欣,等.饲料中添加褐藻寡糖、红藻寡糖对虹鳟生长性能、肌肉营养成分及血清免疫功能的影响[J].农业生物技术学报,2024,32(9):2100-2111.TANG W,WANG Q,LI J X,et al.Effects on dietary supplementation of algal oligosaccharides or red algal oligosaccharides on growth performance,muscle nutrient composition and serum immune function of Oncorhynchus mykiss[J].Journal of Agricultural Biotechnology,2024,32(9):2100-2111.(in Chinese)
[25] 史文军,王学江,李峰,等.饲料中添加褐藻寡糖对脊尾白虾免疫能力的影响[J].江苏农业学报,2024,40(4):698-710.SHI W J,WANG X J,LI F,et al.Effects of alginate oligosaccharides supplementation on immunity of Exo-Palaemon carinicauda[J].Jiangsu Journal of Agricultural Sciences,2024,40(4):698-710.(in Chinese)
[26] 邓婉珍.褐藻寡糖对大菱鲆和凡纳滨对虾生长、肠道健康、免疫和抗病力的影响[D].济南:山东大学,2023.DENG W Z.Effects of alginate oligosaccharide on growth,intestinal health,immunity and disease resistance of Scophthalmus maximus and Litopenaeus vannamei[D].Jinan:Shandong University,2023.(in Chinese)
[27] LOURENÇO-LOPESC,FRAGA-CORRAL M,JIMENEZ-LOPEZ C,et al.Biological action mechanisms of fucoxanthin extracted from algae for application in food and cosmetic industries[J].Trends in Food Science &Technology,2021,117:163-181.
[28] 刘秋瑀,王伟隆,黄旭雄.不同饲料能量源及其水平对凡纳滨对虾生长、抗氧化能力及蛋白质利用的影响[J].中国水产科学,2023,30(9):1067-1079.LIU Q Y,WANG W L,HUANG X X.Effects of dietary energy sources and levels on growth,antioxidant capacity and protein utilization of Litopenaeus vannamei[J].Journal of Fishery Sciences of China,2023,30(9):1067-1079.(in Chinese)
[29] 沈前,黄永波,王志超,等.海带、羊栖菜和坛紫菜粉对凡纳滨对虾生长性能和免疫性能的影响[J].核农学报,2025,39(6):1333-1343.SHEN Q,HUANG Y B,WANG Z C,et al.Effects of Saccharina japonica,Sargassum fusiforme,and neoporphyra haitanensis powders on the growth and immune performance of Penaeus vannamei[J].Journal of Nuclear Agricultural Sciences,2025,39(6):1333-1343.(in Chinese)
[30] 李宝山.岩藻多糖、岩藻糖和葡萄糖对刺参生长、消化生理与糖代谢的影响[D].上海:上海海洋大学,2024.LI B S.Effect of dietary fucoidan,fucos,and glucose on growth,digestive physiology and glycolmetabolism of juvenile sea cucumber Apostichopus japonicus[D].Shanghai:Shanghai Ocean University,2024.(in Chinese)
[31] HEO S J,JEON Y J.Protective effect of fucoxanthin isolated from Sargassum siliquastrum on UV-B induced cell damage[J].Journal of Photochemistry and Photobiology B:Biology,2009,95(2):101-107.
[32] HEO S J,KO S C,KANG S M,et al.Cytoprotective effect of fucoxanthin isolated from brown algae Sargassum siliquastrum against H2O2-induced cell damage[J].European Food Research and Technology,2008,228(1):145-151.
[33] 唐晨,陆未,齐晓玲,等.海带中岩藻黄素的提取及其活性研究[J].南通职业大学学报,2017,31(4):93-97.TANG C,LU W,QI X L,et al.Extraction and research of fucoxanthin from Laminaria japonica[J].Journal of Nantong Vocational University,2017,31(4):93-97.(in Chinese)
[34] 耿凯祥.干露胁迫对橄榄蛏蚌存活与生理代谢、抗氧化及免疫功能的影响[D].南京:南京农业大学,2023.GENG K X.Effects of air-exposure on survival and physiological metabolism,antioxidant and immune function of Solenaia oleivora[D].Nanjing:Nanjing Agricultural University,2023.(in Chinese)
[35] 刘经未,李宝山,王际英,等.岩藻多糖对刺参生长、消化、免疫、抗氧化及糖脂代谢的影响[J].水产学报,2025,49(2):185-195.LIU J W,LI B S,WANG J Y,et al.Effects of dietary fucoidan on growth performance,digestion,immunity,antioxidant and glucolipid metabolism of juvenile sea cucumber(Apostichopus japonicus)[J].Journal of Fisheries of China,2025,49(2):185-195.(in Chinese)
[36] 吴曙,王淑红,王艺磊,等.软体动物和甲壳动物酚氧化酶的研究进展[J].动物学杂志,2009,44(5):137-146.WU S,WANG S H,WANG Y L,et al.Phenoloxidase in mollusca and crustacean[J].Chinese Journal of Zoology,2009,44(5):137-146.(in Chinese)
[37] 谢婷,刘婷婷,曾雪慧,等.岩藻黄质活化核因子E2相关因子2改善糖皮质激素诱导的成骨细胞凋亡[J].中国组织工程研究,2024,28(23):3609-3614.XIE T,LIU T T,ZENG X H,et al.Fucoxanthin alleviates glucocorticoid-induced osteoblast apoptosis by activating nuclear factor erythroid-2-related factor 2[J].Chinese Journal of Tissue Engineering Research,2024,28(23):3609-3614.(in Chinese)
[38] SU J Q,GUAN B Y,CHEN K S,et al.Fucoxanthin attenuates inflammation via interferon regulatory factor 3 (IRF3) to improve sepsis[J].Journal of Agricultural and Food Chemistry,2023,71(33):12497-12510.
[39] KAWAKAMI T, TSUSHIMA M, KATABAMI Y, et al. Effect of β, β-carotene, β-echinenone, astaxanthin, fucoxanthin, vitamin A and vitamin E on the biological defense of the sea urchin Pseudocentrotus depressus[J].Journal of Experimental Marine Biology and Ecology, 1998, 226(2): 165-174.