日本海螂 (Mya japonica)原称“砂海螂(Mya arenaria)”,俗称“大蚍”“蚍蛤”,属于双壳纲海螂目海螂科,2018年经Zhang等[1]整合贝壳形态、多基因序列分析与精子超微结构观察等多种手段,明确砂海螂 和日本海螂是两个独立物种,西北太平洋海域分布的原被认定为砂海螂的物种,实际均为日本海螂,故更名。日本海螂广泛分布于北美东西海岸,俄罗斯远东海域,日本和朝鲜沿海及中国黄渤海沿岸,是中国北方海域的一种大型埋栖性双壳贝类。它个体肥大,出肉率高,适应性强,有较高的经济价值,是一种极具增养殖开发前景的海洋经济贝类。
胶州湾是一个近似喇叭状的半封闭海湾,海湾底质以泥沙为主,有大沽河、白沙河、城阳河等10余条河流入[2]。湾内营养盐充沛,孕育了丰沛的饵料生物,形成了适宜鱼、虾、贝、藻等生长繁殖的优良生境,有丰富的野生日本海螂资源。日本海螂属于大型埋栖型滤食性贝类,其在洞穴内的生物灌溉活动对沉积物中有机物矿化,以及净化水质、控制富营养化等方面也有较好的生态价值。目前胶州湾日本海螂以采捕野生资源为主,近年来,成品贝的规格呈现小型化趋势,无序采捕势必会对野生资源造成极大威胁。任何一个品种的规模化养殖都与该品种规模化繁育技术的突破密不可分,日本海螂亦如此。日本海螂对盐度的耐受性广,非常适合胶州湾这种汛期盐度变化大的海湾,胶州湾海域养殖渔民对日本海螂苗种有较大需求,若能实现日本海螂苗种的规模化繁育并开展胶州湾底播增养殖,实现养殖区域的轮播轮养,在保护海区生态环境的同时,将极大地提高养殖户的经济效益,带动农民增产增收。
目前,对日本海螂的研究多聚焦于表型性状与质量性状的相关性分析[3]、遗传多样性及基因组特征解析[4],以及繁殖期壳尺寸性状对体质量的影响机制[5]等方面。张明亮等[6]曾系统阐明了芝罘湾砂海螂的性腺发育规律与生殖周期,表明2龄以上贝是人工育苗的良好来源。宋志乐等[7]对砂海螂幼体和稚贝的发育进行了研究,初步掌握了人工育苗的基本规律,但缺乏详尽的发育过程图谱,且日本海螂的苗种始终未能商业化。日本海螂属大型底栖贝类,其摄食、洞穴建造和生物翻耕活动产生的生物扰动能影响颗粒迁移、有机质的封存、再悬浮,以及沉积物-水界面的溶质通量[8-9]。本研究中以胶州湾海域野生日本海螂为研究对象,采用组织切片技术对其性腺进行了年度跟踪调查和取样,对性腺发育进行了分期,确定了年度繁殖规律,同时对日本海螂开展了苗种培育试验,观察了其早期生长发育时序进程与关键节点形态,探讨了其中间培育的形式。本文可为日本海螂苗种的商业化培育与养殖,推广全产业链条模式提供科学依据与技术支撑。
1 材料与方法
1.1 材料
试验用日本海螂采自山东胶州湾海域,为野生个体,2024年12月—2025年10月,每月随机收集80~100枚样品,挑选活力好、壳形完整、无损伤的个体用于性腺发育的组织学取样。选用胶州湾捕捞的日本海螂(壳长为60.00~70.00 mm)作为亲贝,于2025年4月16日运至烟台市牟平顺意育苗场,在20.4 m3水池暂养3 d后,经初步挑选后进行人工育苗。
1.2 方法
1.2.1 温度测量 试验期间投放浊度叶绿素仪于胶州湾海域监测海区温度,试验结束后浊度叶绿素仪回收,根据取样时间记录当天水温变化并取平均值。
1.2.2 样品测量 使用毛巾擦干贝表面的水分,测量日本海螂壳尺寸性状和湿质量后,分离软体部和贝壳,测量软体部湿质量和性腺部湿质量,使用烘箱70 ℃烘干48 h至恒重,分别称量软体部干质量、性腺干质量与贝壳干质量(精确为0.01 g)。相关参数的计算公式为
肥满度=软体部质量/体质量×100%,
(1)
条件指数=软体干质量/贝壳干质量×100%,
(2)
性腺指数=性腺湿质量/软体湿质量×100%。
(3)
1.2.3 组织学观察试验 取30枚贝解剖观察其性腺发育情况,分离软体部和贝壳后,使用镊子轻轻夹取少量生殖腺压片镜检,显微镜下初步辨别性别与性腺发育程度。雌雄个体分别取5枚,每枚取绿豆大小的性腺部位材料用Bouins 液固定24 h后转移至75%乙醇中,经乙醇梯度脱水、透明、浸蜡、包埋并切成4~6 μm薄片,进行HE染色、封片,采用数字切片扫描仪(20倍物镜扫描,分辨率s0.23 μm/pixel)自动扫描整张玻片,拼接转化成数字化的组织切片。运用Slide Viewer软件对采集图像选取视野,使用Adobe Photoshop 2018软件对图像进行标记。
1.2.4 亲贝的催产和孵化 亲贝促熟过程中溶解氧浓度为6.12~6.72 mg/L,平均水温为20.4 ℃,水体pH为7.86±0.20,盐度为30。饵料以小新月菱形藻(Nitzschia closterium)和扁藻(Platymonas sp.)为主,等鞭金藻(Isochrysis galbana)和小球藻(Chlorella sp.)为辅。促熟7 d后,挑选200枚性腺肥满、活力好,外壳无损伤的日本海螂亲贝进行人工催产,催产方式采用“阴干+流水+升温”刺激法。阴干2 h,然后经流水(16.4 ℃)刺激30 min,转移至升温海水(20.2 ℃)养殖池中,进行催产。暂养过程溶解氧浓度为6.12~6.72 mg/L,平均水温为20.4 ℃,水体pH为7.86±0.2,盐度为30,连续充气。饵料以小新月菱形藻和扁藻为主,等鞭金藻和小球藻为辅。促熟期间,每天早晨和下午换水1次,每日全量换水。
1.2.5 幼虫培育与观察 幼虫培育期间水温为20 ℃~21 ℃,pH为8.0~8.2,盐度为29~30。幼虫养殖密度为3~5 ind./mL,随着幼虫生长,至下潜前逐渐调整为1~2 ind./mL。每天半量换水1~2次,每5~7 d倒池1次。幼虫下潜后停止倒池,此时可加大换水量,每天半量换水2~3次。饵料在幼虫壳长<140 μm时以等鞭金藻为主,每日投饵4~6次,投喂量为(1~2)×104 cells/mL。幼虫壳长>140 μm后以等鞭金藻为主,辅以扁藻小球藻,每日投饵4~6次,投喂量为(3~4)×104 cells/mL。直到25日龄幼虫,壳长>300 μm时,饵料以扁藻为主,等鞭金藻和小球藻为辅,每日投饵1~2次,投喂量为(1~2)×106 cells/mL。
幼虫出足后,在水泥池中投放铺有海砂的网框,海砂铺设深度约2 cm,网框为1.0 m×0.4 m×0.2 m,作为附着基的海砂先使用含有高锰酸钾的海水浸泡2 h,再用砂滤海水清洗浸泡3 d。幼虫下潜后饵料可增加到(2~3)×106 cells/mL,每日投喂4次,视摄食情况逐渐增减饵料,以在4 h内吃完为宜。
使用显微镜观察不同时期日本海螂胚胎和幼虫发育情况,记录发育时间并拍照。采用Image J软件测量受精卵卵径、幼虫及稚贝的壳长及壳高,并统计幼虫的存活率和变态率及稚贝的存活率。
1.2.6 中间培育 幼虫完成变态后,使用245 μm绢网将稚贝与海砂分离。分别采用浅海浮筏和室内两种模式进行稚贝的中间培育,浅海浮筏的中间育成中每个保苗袋放稚贝1 000枚。室内中间培育按8 枚/cm2的密度养殖。培育时间为60 d,测量幼贝壳长,计算存活率。
1.3 数据处理
试验数据以平均值±标准差(mean±S.D.)表示,采用Excel软件作图并进行数据处理。试验数据采用SPSS 26软件进行分析,显著性差异设为0.05。
2 结果与分析
2.1 日本海螂性腺相关指数的跟踪调查
试验所用日本海螂共镜检135枚,其中雄性63枚,占46.67%;雌性72枚,占53.33%。测量平均壳长为(70.95±8.83) mm、平均壳高为(46.96±6.11) mm、平均湿质量为(55.39±17.48) g。
日本海螂在2024年12月—2025年10月的性腺指数、肥满度和条件指数与水温变化连续观测结果见图 1。1—8月上旬海水温度呈逐渐上升的趋势,8月下旬—12月海水温度平稳回落。12月—次年4月日本海螂的性腺指数呈现稳定增长趋势,在4月达到上半年最大值(45.04%±2.79%),4—5月呈现小幅度回落趋势。5—8月性腺指数较为平稳,至9月达到全年最大值(47.51%±3.93%),随后缓慢下降。日本海螂肥满度的周年变化与水温变化密切相关,从前一年12月开始,肥满度随水温降低逐渐减小,次年1—3月肥满度随着水温升高逐渐增加并达到最大值(55.68%±5.01%)。3月底肥满度又开始下降,预示有一部分个体参与了早期繁殖,直至4月降到最低值(40.89%±2.21%)。稳定至9月(40.71%±1.94%),之后肥满度逐渐降低并趋于稳定,10月达最低值(31.18%±4.48%)。12月—次年4月随着水温升高条件指数呈现稳定增长趋势,3月达到最大值(35.04%±0.30%)。4月呈现小幅回落趋势,亲贝性腺发育至成熟期,精卵排出进行繁殖。5—8月条件指数平稳,8—10月下降,10月达到最低值(11.19%±0.01%)。亲贝发育中,8月底—9月开始进行产卵繁殖,至10月排放期完成。
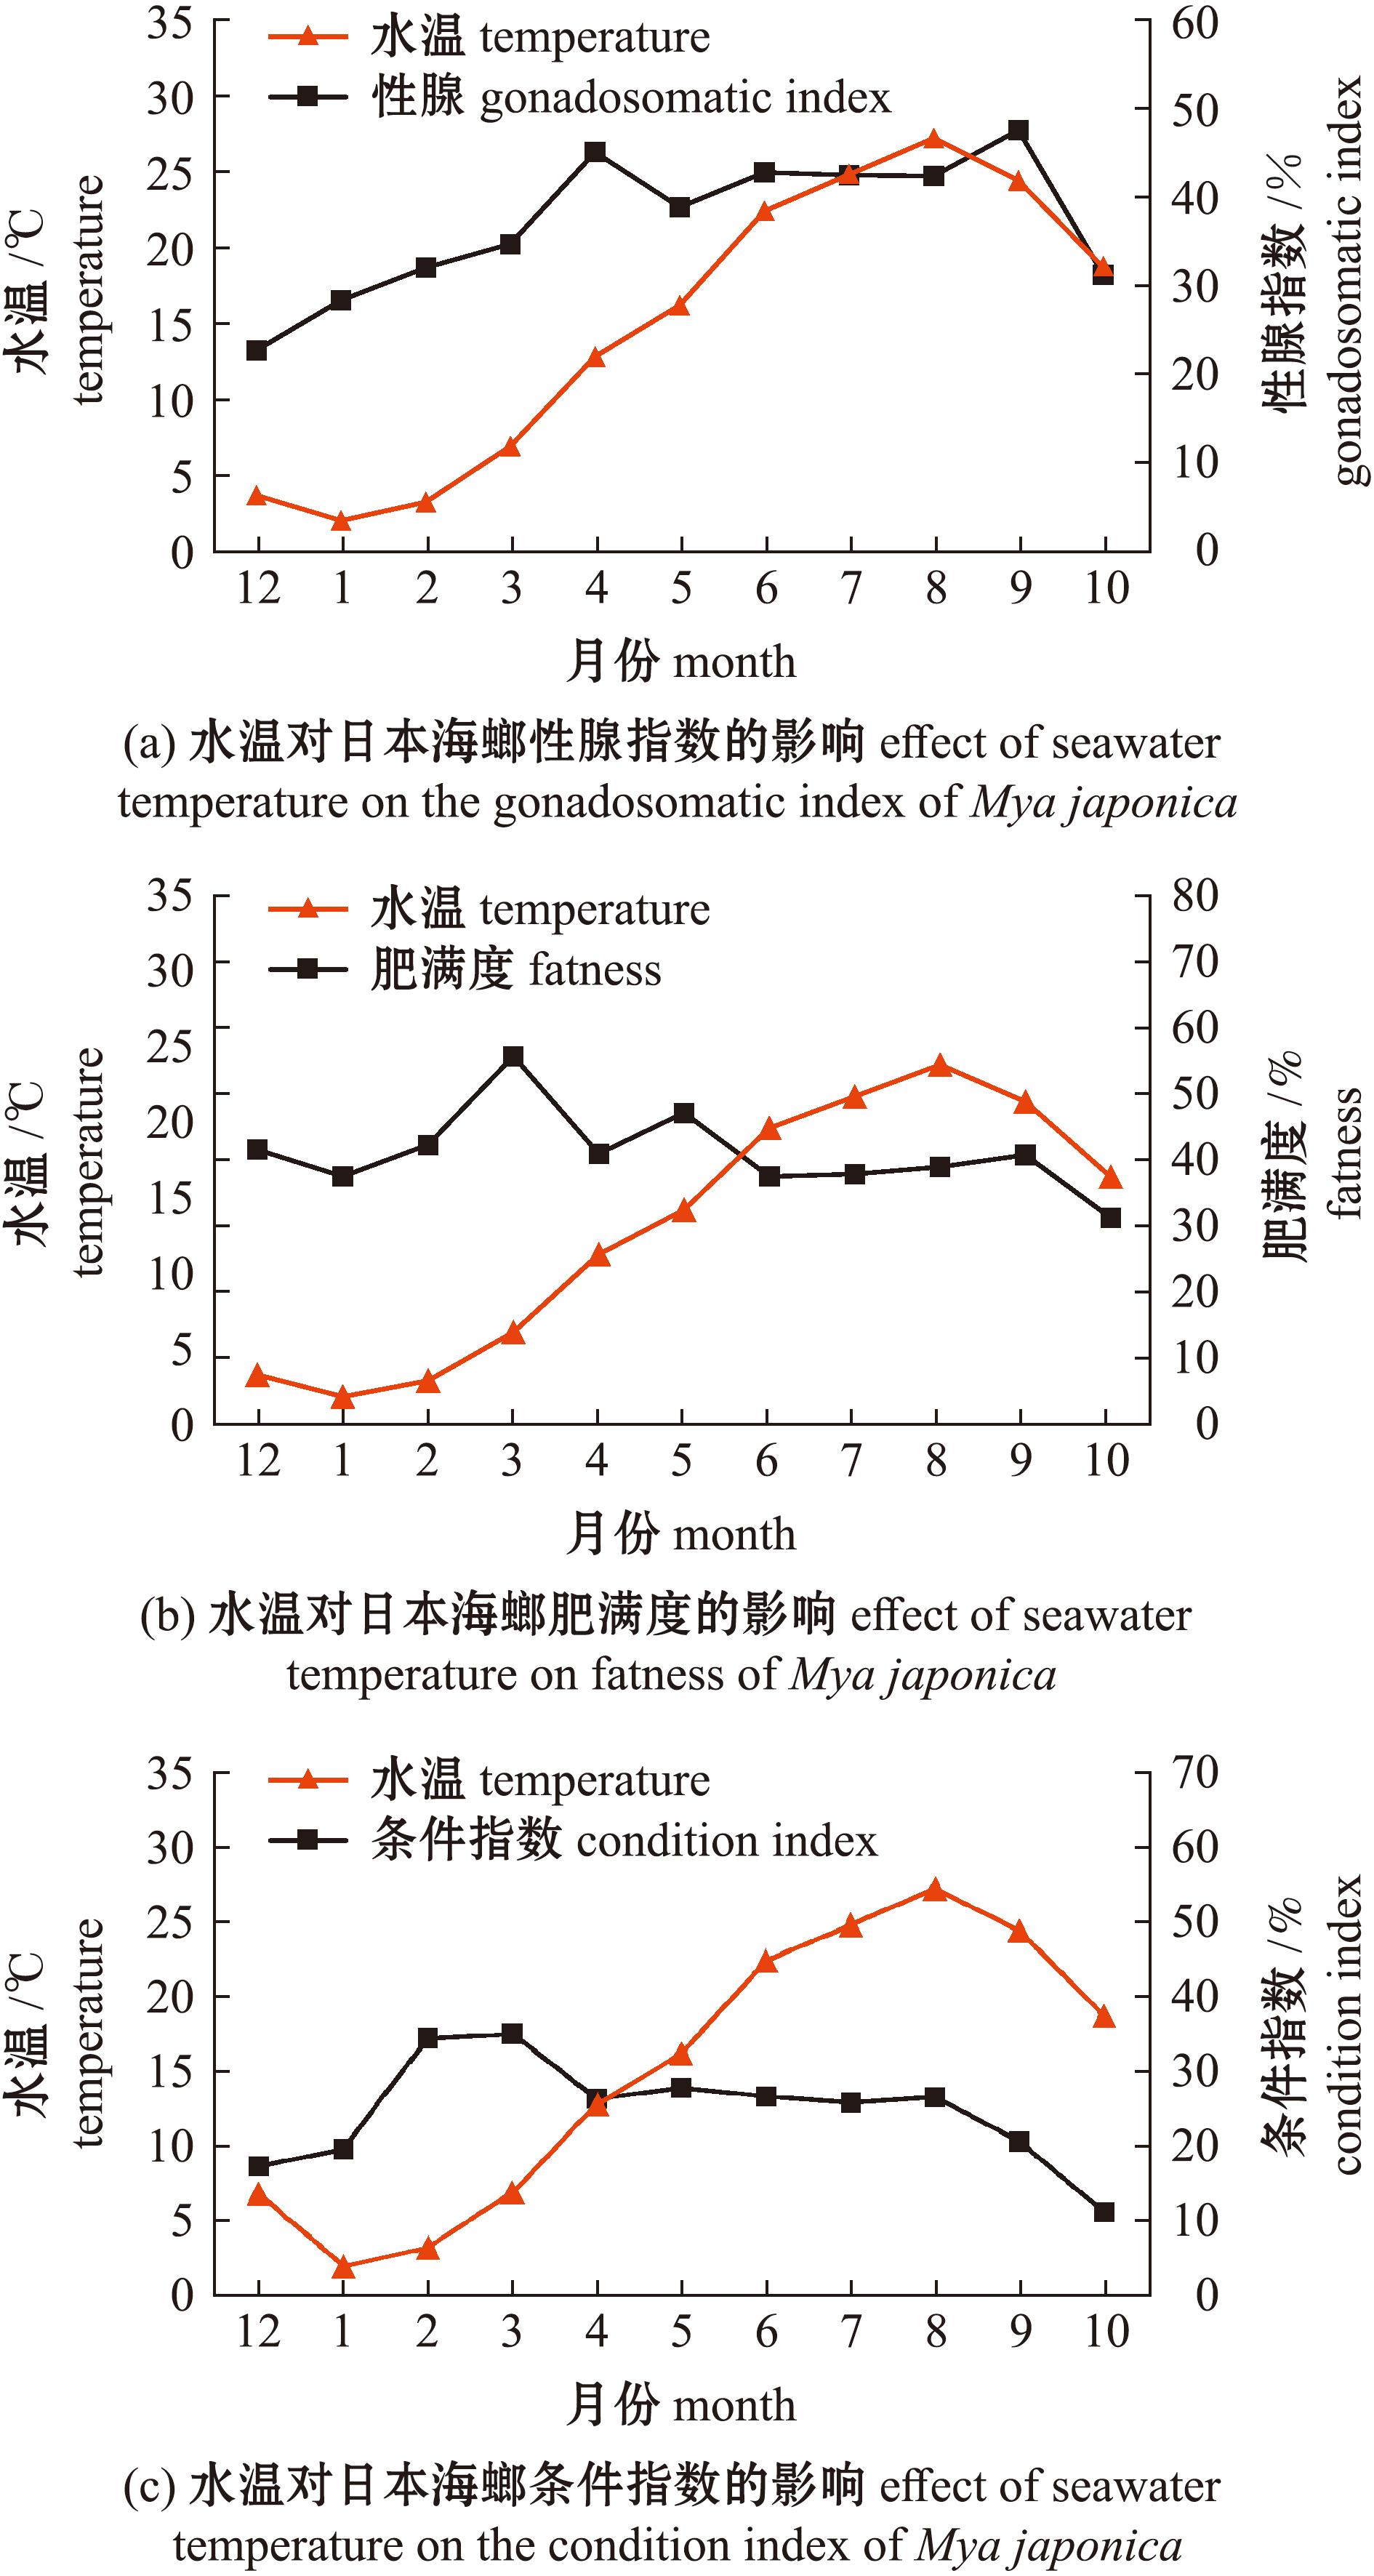
图1 水温与日本海螂性腺指数、肥满度和条件指数的关系
Fig.1 Relationships between seawater temperature and the gonadosomatic index,fatness and condition index of Mya japonica
2.2 日本海螂性腺发育分期
日本海螂的性腺在外形上为扁圆形,颜色为乳白色,不易区分雌雄(图2)。其性腺组织结构同其他双壳贝类一样,主要由滤泡、生殖管和生殖输送管组成。滤泡大小不均,形状各异,滤泡壁由生殖组织及结缔组织构成,生殖上皮不断增殖为精原细胞或卵原细胞,并进一步发育为初级精母细胞或卵母细胞等。根据周年调查将性腺发育分为增殖期、生长期、成熟期、排放期和休止期。
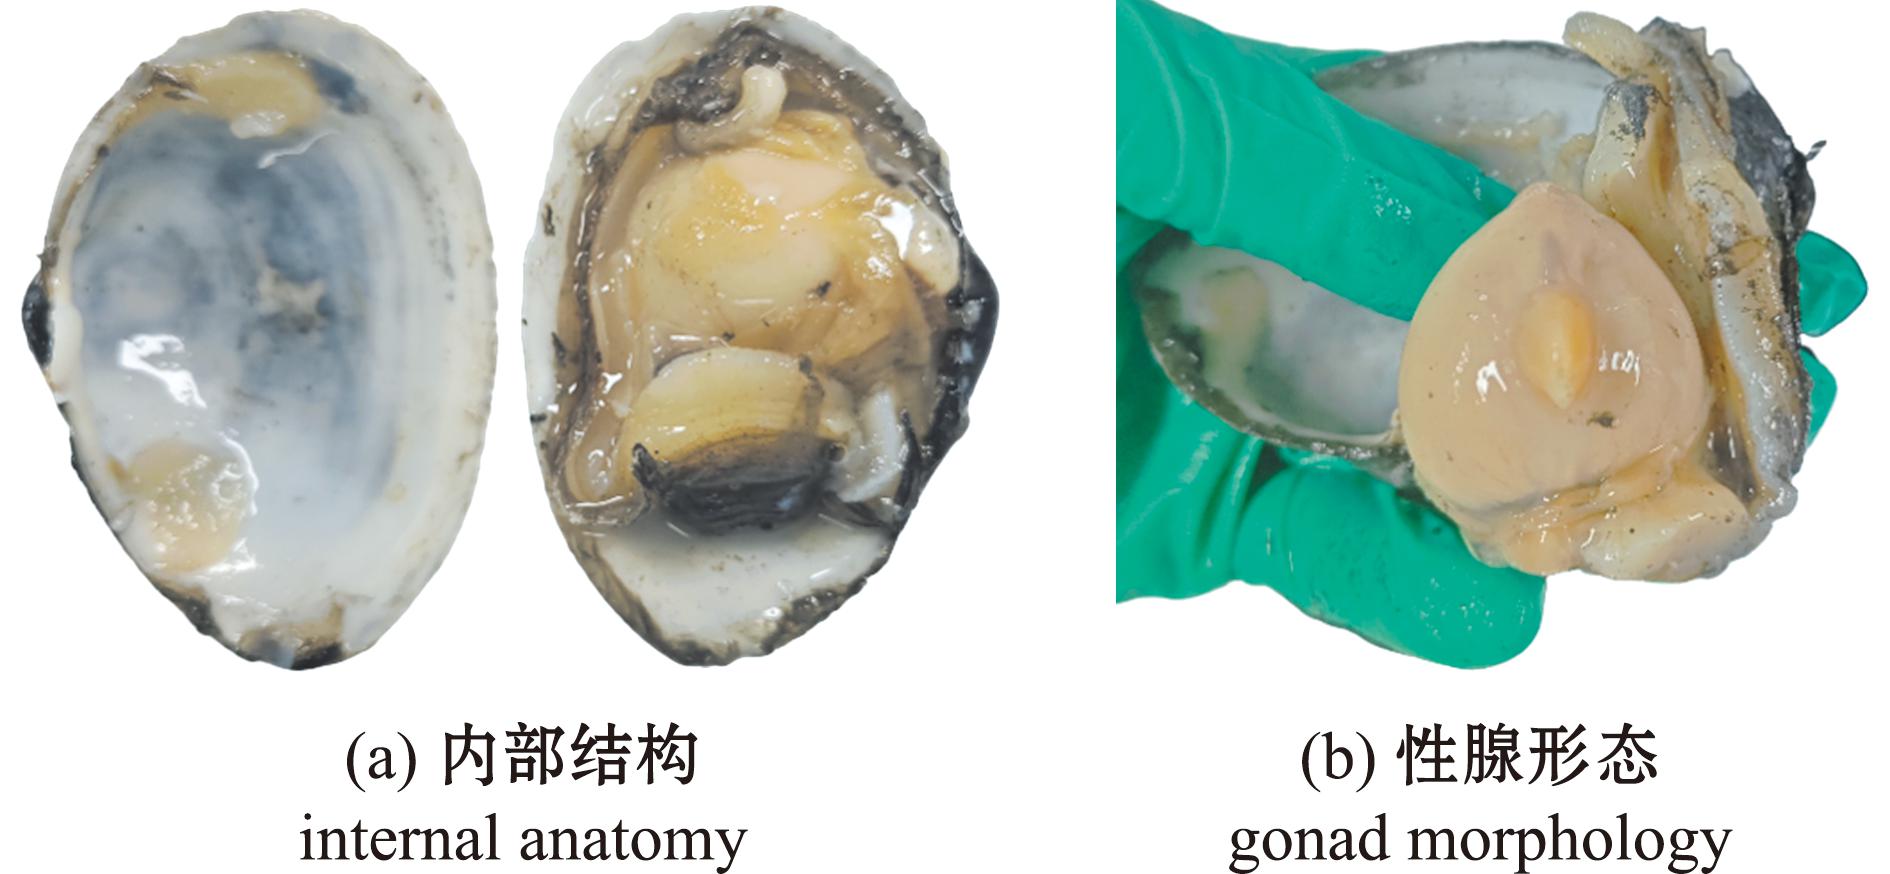
图2 日本海螂解剖图
Fig.2 Anatomy of Mya japonica
增殖期(1—2月、7月):1—2月,海区平均水温从全年最低的2.02 ℃缓慢上升至3.24 ℃,此时日本海螂性腺体积逐渐增大,生殖腺中滤泡开始出现,数量不断上升,体积不断增大,形状大小不同。雄性个体滤泡壁之间夹杂着精原细胞,并逐渐产生少量的精母细胞(图3A)。雌性个体滤泡壁增厚,生殖上皮中生殖原细胞不断分裂增殖,并逐渐出现少量初级卵母细胞(图3F)。
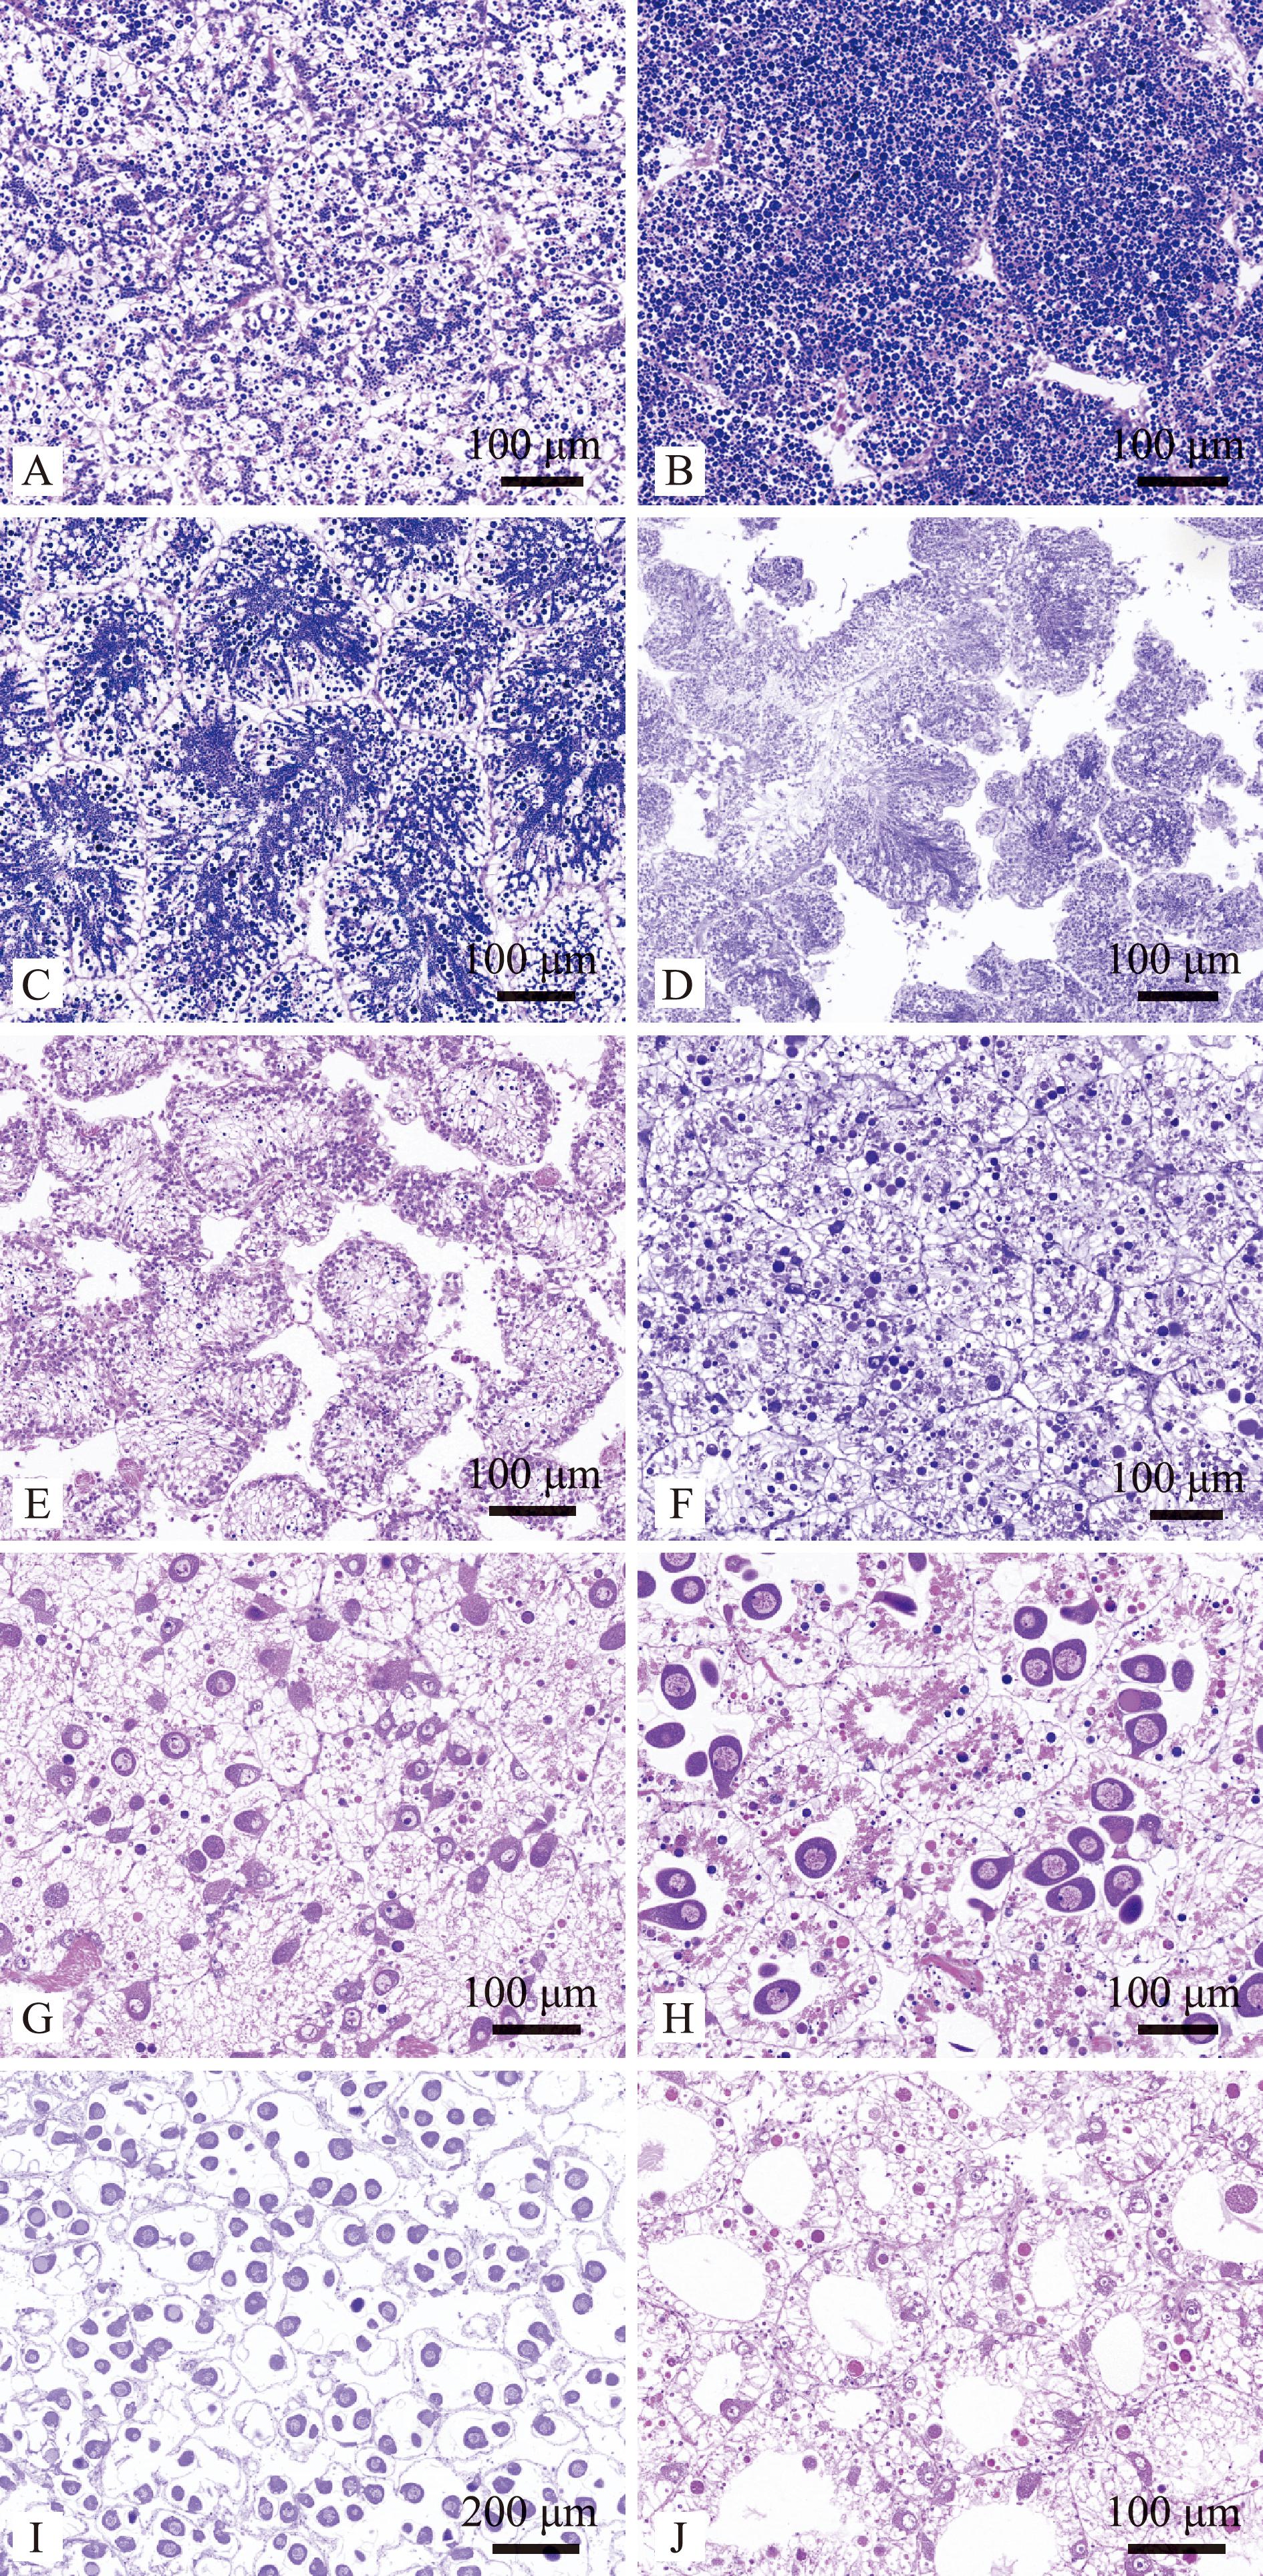
A~E—分别为雄性增殖期、生长期、成熟期、排放期和休止期;F~J—分别为雌性增殖期、生长期、成熟期、排放期和休止期。
A-E—represent the proliferation stage,growth stage,maturation stage,spawning stage,and resting stage of males,respectively;F-J—represent the proliferation stage,growth stage,maturation stage,spawning stage,and resting stage of females,respectively.
图3 日本海螂性腺发育分期
Fig.3 Gonadal development stages of Mya japonica
生长期(2月—4月、7月—8月):2—4月,海区平均水温上升至12.82 ℃,3月,性腺达到椭圆状态,条件指数和肥满度达到全年最大值。此时期日本海螂性腺肥满,生殖腺中滤泡数量增多,体积不断增大,分布范围广泛。雄性生殖腺中精原细胞大量分裂增殖和分化,滤泡腔内的精细胞大量分布,个别精细胞已发育为成熟精子,这一期间可观察到滤泡内分布的精原细胞和精子的各个不同发育阶段的生殖细胞(图3B)。雌性滤泡中卵母细胞增多 ,并出现较大的卵黄期卵母细胞,卵母细胞以卵柄和滤泡壁相连,形状多呈梨形(图3G)。7—8月,海区平均水温持续在22.00 ℃以上,此时期日本海螂性腺刺破后有液体流出。条件指数、肥满度和性腺指数在此时期趋于稳定,性腺发育处于生长期和繁殖期。
成熟期(4—5月、8—9月):4—5月,海区平均水温上升至16.20 ℃,此时期日本海螂性腺体积相比其他器官相对较大,生殖腺基本被滤泡组织所占据,饱满圆润,且滤泡之间有空隙,滤泡腔内充满生殖细胞,刺破性腺表层有乳白色液体流出。雄性滤泡腔内充满精细胞和变态的精子,滤泡腔呈菊花状或辐射状密集排列,精子头部朝滤泡壁,而尾部向着滤泡腔中央,滤泡壁上精原细胞增殖减少(图3C)。雌性滤泡腔内充满成熟卵子和卵母细胞,卵子的核膜和核仁明显,滤泡壁上仍有少量带卵柄的未成熟卵细胞(图3H)。此时期亲贝排放精卵子进行繁殖。9月,海区平均水温为23.40 ℃左右,日本海螂性腺体积非常饱满,刺破后有液体流出。4—5月与9月的条件指数和肥满度降低,是日本海螂的两个繁殖盛期。
排放期(6月、9—10月):6月,海区平均水温为22.40 ℃,此时期日本海螂性腺体积依旧比其他器官大,性腺饱满,刺破后有液体流出。9—10月,海区平均水温为18.7 ℃,此时期日本海螂性腺呈扁平状,刺破后无液体流出,有少量内含物。条件指数、肥满度和性腺指数在此时期均降低。生殖腺中滤泡因成熟生殖细胞的排放逐渐出现大小不等的空腔,空腔体积逐渐增大,滤泡壁开始变薄,有些滤泡壁因精卵的排放而破裂。雄性个体滤泡中呈放射状排列的精子显著减少,滤泡内仍有精母细胞、精细胞和精子等不同发育时期的生殖细胞(图3D)。雌性个体滤泡内仍留有卵黄形成前期和后期的卵母细胞和少量未产出的成熟卵子,滤泡开始萎缩,滤泡之间结缔组织逐渐增多(图3I)。
休止期 (10—12月):12月—次年1月,海区平均水温从6.68 ℃下降至2.02 ℃,此时期日本海螂性腺为扁平状,腺体内含有少量内含物,肥满度降低,而条件指数和性腺指数升高。生殖腺中滤泡慢慢变为大空腔,形状不规则,滤泡间空隙逐渐加大,滤泡壁变薄并开始萎缩。此时滤泡内仍可见少量生殖细胞,结缔组织大量增生并充满滤泡间的空隙,滤泡开始萎缩退化直至消失(图3E,J)。
2.3 胚胎和幼虫发育
2.3.1 日本海螂的催产和孵化 将在16 ℃水中暂养的亲贝放入网框中,经过流水刺激30 min,阴干3 h,放入20 ℃水中升温刺激。雌雄亲贝排卵不同步,升温刺激1 h后雄贝开始排放精子,刺激1.5 h后雌贝开始排放卵子,排卵高峰过程持续1.5 h,雄贝排放精子后观察水体颜色,水体稍浑浊时将雄性亲贝捡出,防止精子浓度过高导致受精卵发育畸形。
2.3.2 日本海螂胚胎发育 日本海螂胚胎发育阶段,全程在水温20 ℃的育苗池中进行培育。日本海螂卵子为圆球形,卵径为85~95 μm。精子入卵10 min后发生顶体反应,受精膜顶起出现第一极体。受精卵分裂方式为完全不等卵裂,40 min时发育至2细胞期,期间受精卵纵向自缢形成明显的卵裂沟,将卵细胞分成大小不等的卵裂球,之后以完全不等卵裂方式进行第二次和第三次卵裂,分别形成4细胞期和8细胞期。受精后约3 h开始进行螺旋卵裂,逐渐发育为 16细胞期,再经3 h发育到桑葚期。至受精后9 h,胚胎发育成椭圆球形,周围细胞长出细小纤毛,开始在水中做顺时针旋转,为囊胚期。受精后17 h,在顶部隆起一圈纤毛环,纤毛分布茂密,通过摆动纤毛环使胚体快速游动,纤毛环中央有一根长鞭毛,摆动控制胚体游动方向,为担轮幼虫。受精后22 h,胚胎开始分泌胚壳逐渐包裹软体部,消化系统逐渐分化形成,并形成运动器官面盘,发育至D形幼虫(初期面盘幼虫)(表1,图4)。
表1 日本海螂胚胎发育
Tab.1 Embryonic development of Mya japonica
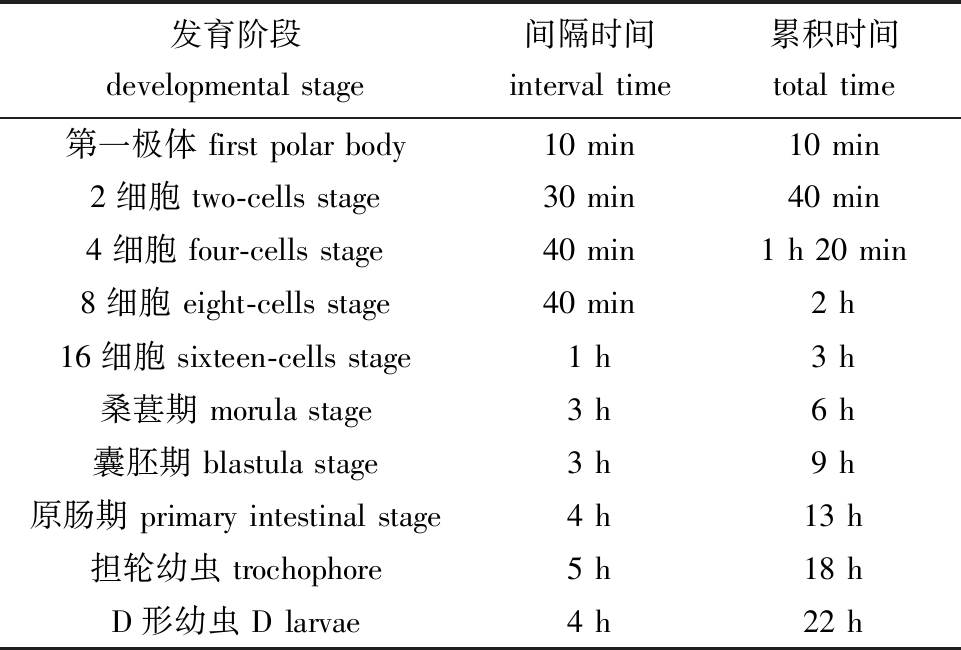
发育阶段developmental stage间隔时间interval time累积时间total time第一极体 first polar body10 min10 min2细胞 two-cells stage30 min40 min4细胞 four-cells stage40 min1 h 20 min8细胞 eight-cells stage40 min2 h16细胞 sixteen-cells stage1 h3 h桑葚期 morula stage3 h6 h囊胚期 blastula stage3 h9 h原肠期 primary intestinal stage4 h13 h担轮幼虫 trochophore5 h18 hD形幼虫 D larvae4 h22 h
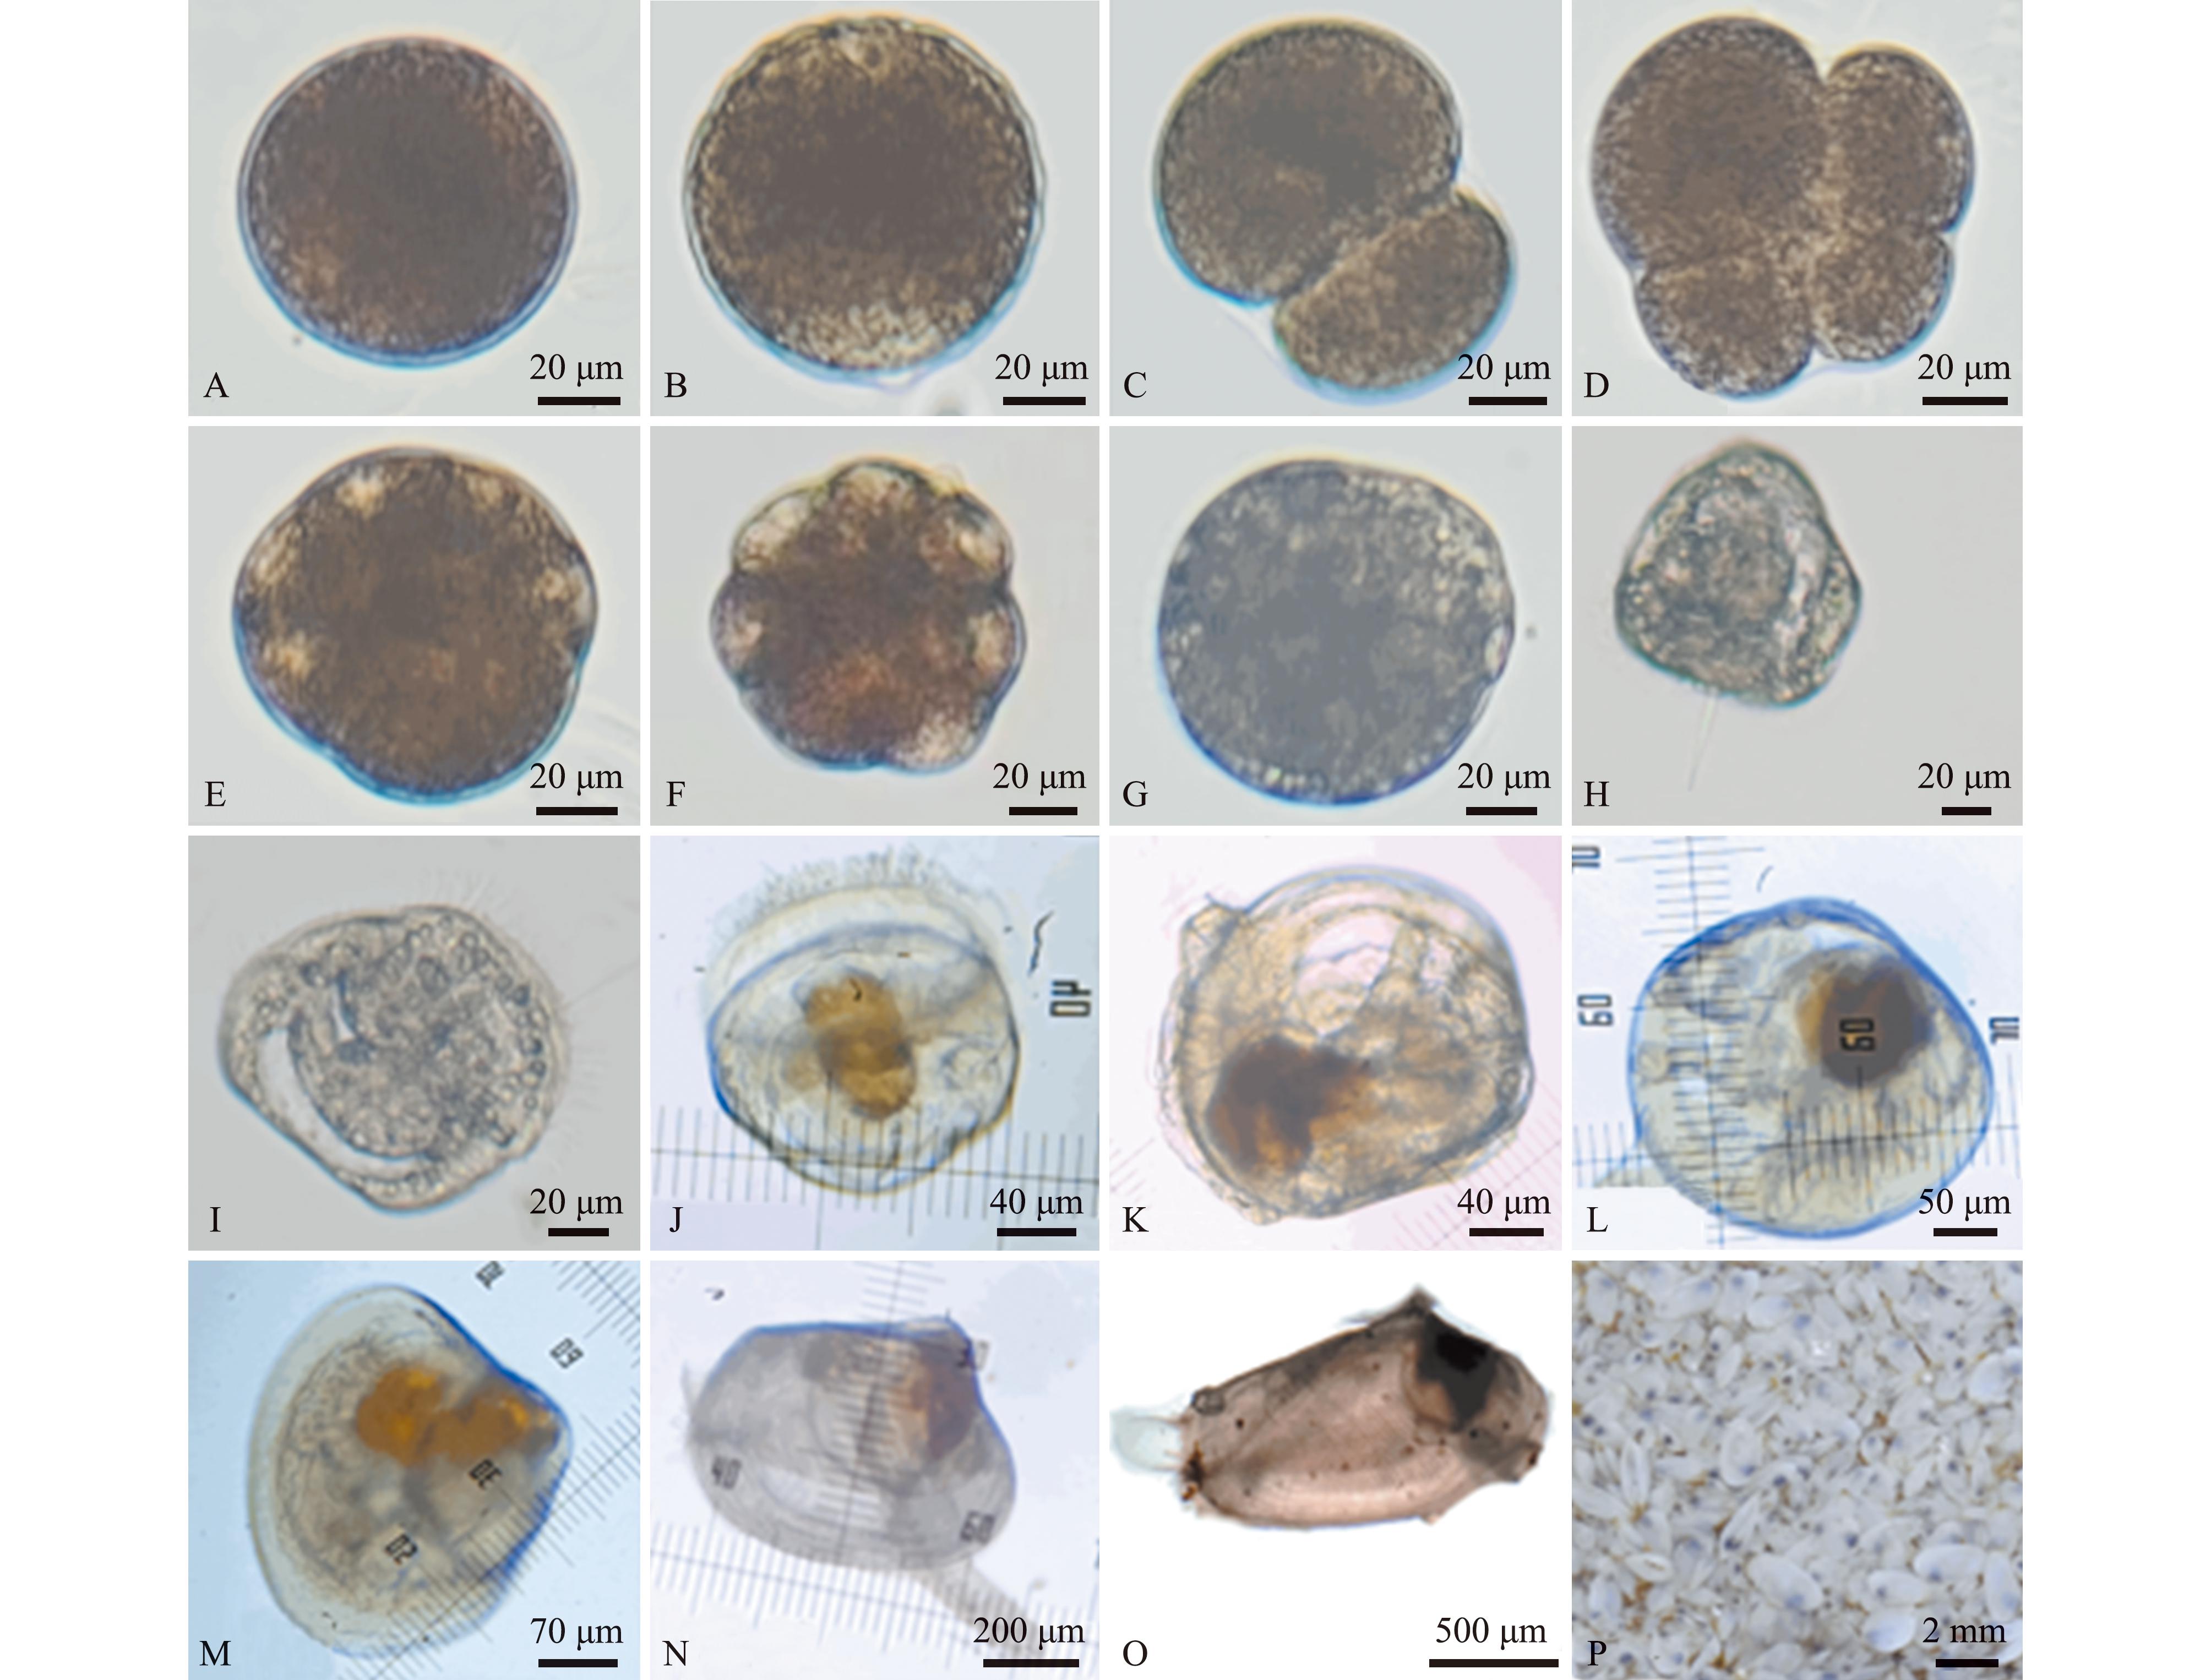
A—受精卵;B—第一极体;C—2细胞期;D—4细胞期;E—8细胞期;F—桑葚期;G—囊胚期;H—担轮幼虫;I—D形幼虫;J—壳顶幼虫;K—足面盘幼虫;L—附着变态期幼虫;M—刚完成附着长出次生壳稚贝;N—附着后具有水管稚贝;O—埋栖状态的稚贝;P—幼贝。
A—fertilized egg;B—first polar body;C—two-cells stage;D—four-cells stage;E—eight-cells stage;F—morula stage;G—blastula stage;H—trochophore larva;I—D-shaped larva;J—umbo-larvae;K—pediveliger larvae;L—settlement and metamorphosis larvae;M—juveniles with newly attached and grown into secondary shell;N—veliger larva;O—juvenile bivalves in burrowing stage;P—juveniles.
图4 日本海螂胚胎发育
Fig.4 Embryonic development of Mya japonica
日本海螂早期生长发育时序进程见表2,从表2可见,受精卵经过22 h后,胚壳绞合部平直,面盘发达(平均壳长为101.86 μm±3.61 μm),健壮的面盘幼虫在水池中上层浮游生活,投喂金藻后幼虫胃呈淡金黄色,指示幼虫摄食和消化良好。6日龄时,随着幼虫生长壳顶向上突出,发育出足原基,平衡囊在足原基底部形成,消化盲囊颜色加深呈黄褐色(壳长为156.20 μm±7.20 μm)。幼虫发育至10日龄,背部壳顶隆起,出现鳃原基,足原基由圆球状发育为靴状,幼虫长时间通过面盘在水中浮游运动,也可用靴状足匍匐爬行(壳长生长至209.63 μm±11.11 μm)。幼虫发育至20日龄后,面盘萎缩,浮游运动能力减弱,靴状足延伸呈带状,具有伸缩功能,长时间进行匍匐移动,平衡囊增大,鳃原基逐渐发育为完整的鳃丝,在日本海螂幼虫变态阶段并未观察到眼点幼虫阶段(壳长生长至285.13 μm±15.99 μm)。25 d时,幼虫靴状足分泌足丝营固着生活,鳃丝明显,可见初期水管雏形,外部形成短小的膜状管,膜状管缓慢生长,随着爬行有节奏地伸缩运动,可见次生壳,幼虫完成附着变态发育为稚贝(平均壳长为312.56 μm±21.34 μm)。40日龄时,水管伸长,可伸出次生壳,膜状管增长,此时期稚贝通过靴状足在爬行,次生壳快速增长(平均壳长为706.48 μm±87.10 μm)。50日龄时,水管外伸加长,膜状管消失,稚贝埋栖于泥沙中,通过水管伸出沉积物滤食(平均壳长为1 417.16 μm±253.20 μm)。经61 d培育,胚胎发育为幼贝(平均壳长为3 319.23 μm±576.83 μm)。
表2 日本海螂早期生长发育
Tab.2 Early growth and development of Mya japonica
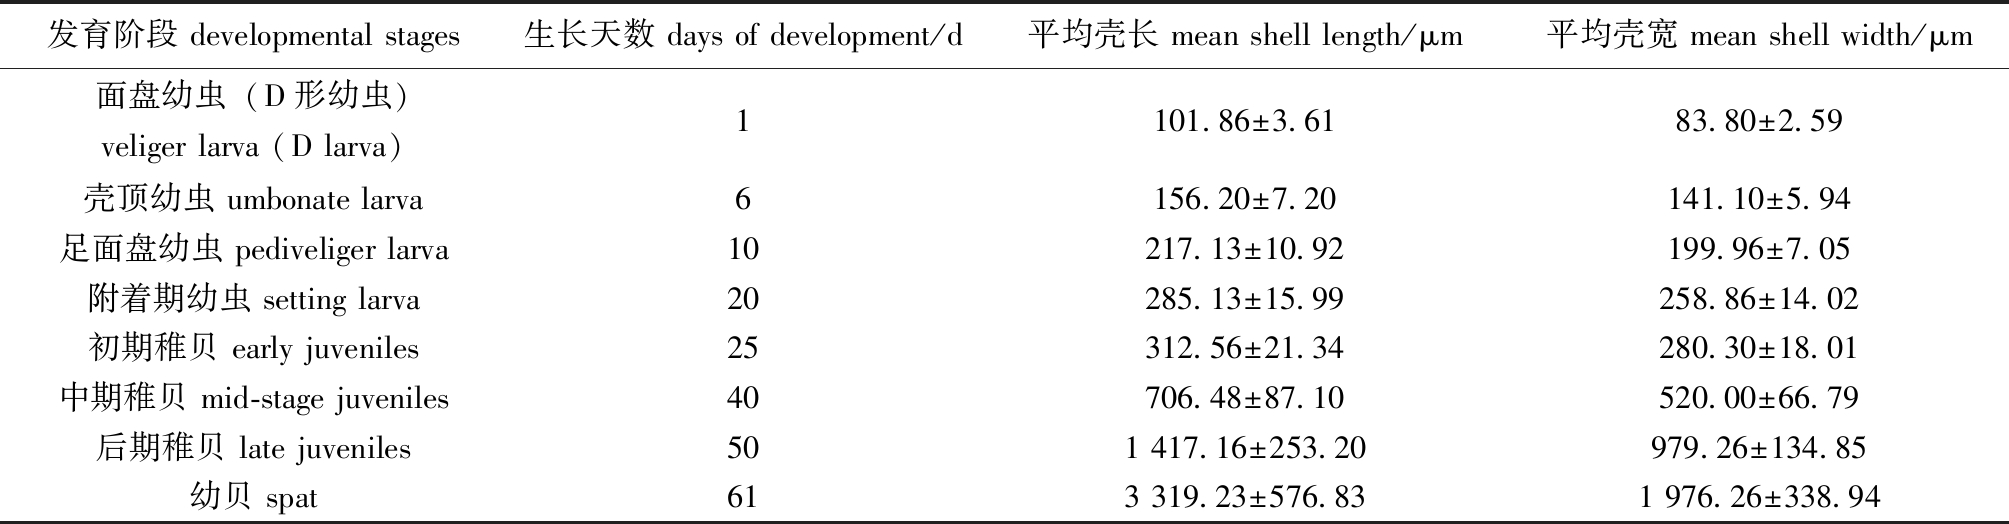
发育阶段 developmental stages生长天数 days of development/d平均壳长 mean shell length/μm平均壳宽 mean shell width/μm面盘幼虫(D形幼虫)veliger larva (D larva)1101.86±3.6183.80±2.59壳顶幼虫 umbonate larva6156.20±7.20141.10±5.94足面盘幼虫 pediveliger larva10217.13±10.92199.96±7.05附着期幼虫 setting larva20285.13±15.99258.86±14.02初期稚贝 early juveniles25312.56±21.34280.30±18.01中期稚贝 mid-stage juveniles40706.48±87.10520.00±66.79后期稚贝 late juveniles501 417.16±253.20979.26±134.85幼贝 spat613 319.23±576.831 976.26±338.94
日本海螂幼虫培育阶段生长快速,壳长及壳高的平均日生长为6~15 μm,此时期幼虫摄食饵料积累营养快速生长。至附着变态期幼虫生长缓慢,此时期幼虫储存营养用于幼虫附着变态,壳长及壳高的生长速率仅为4~7 μm/d。日本海螂幼虫附着变态后生长速度非常快,平均壳长日生长约为20 μm/d,生长至40日龄到达中期稚贝,后期稚贝阶段壳长生长为 58 μm/d。经过61 d的培育,日本海螂稚贝壳长生长为129 μm/d,本次苗种培育获得出库稚贝1.2亿粒。
2.4 中间培育
对日本海螂幼虫进行室内中间培育与自然海区中间培育两种方法,进行平行对比。结果如图5所示,经过60 d培育,室内中间培育存活率(58.42%±14.33%)显著大于自然海区中间育成(36.28%±9.60%)(P<0.05)。室内培育幼贝开始时壳长为(1.33±0.47)mm,结束时壳长为(3.50±0.60)mm,自然海区培育幼虫开始时壳长为(3.16±0.44)mm,结束时壳长为(8.20±0.67)mm,平均日生长为自然海区(83.92±13.77) μm/d、室内(37.85±13.95) μm/d,室内中间培育的幼虫日生长显著低于自然海区中间培养(P<0.05)。室内中间培养幼虫存活率显著高于自然海区中间培养(P<0.05)。
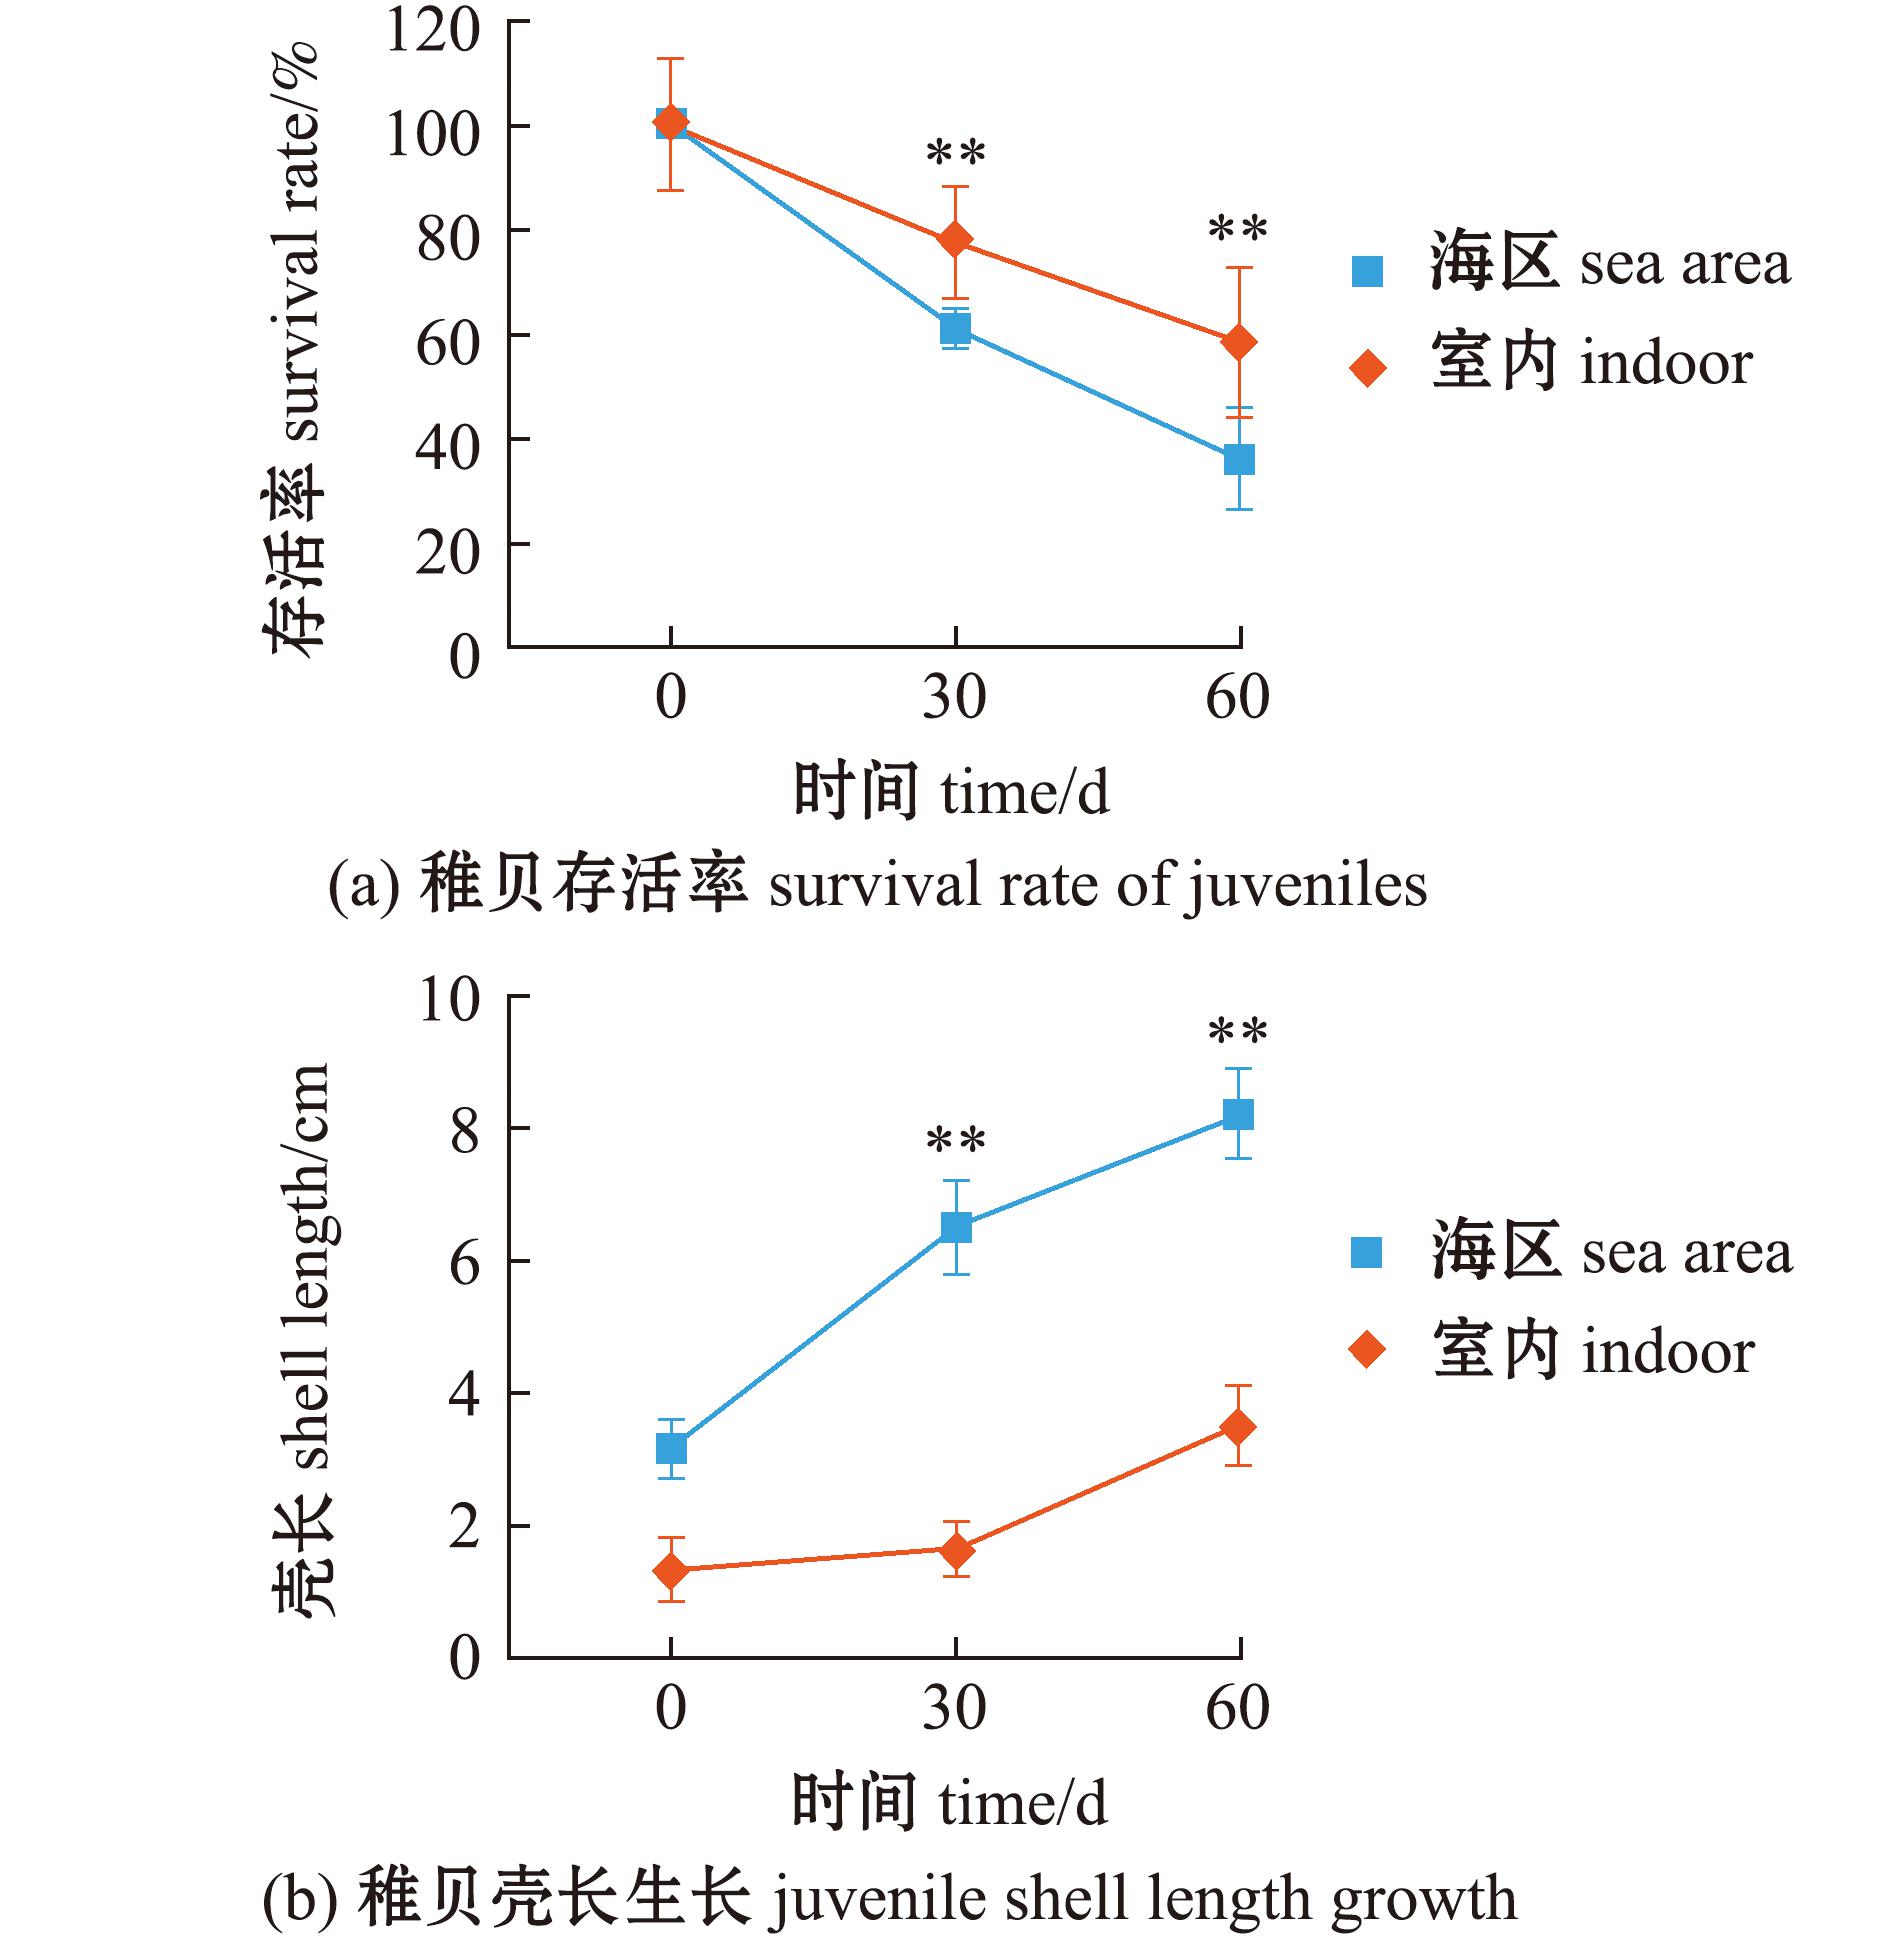
*表示有显著性影响(P<0.05),**表示有极显著性影响(P<0.01)
*means significant effect(P<0.05),** means very significant effect(P<0.01)
图5 中间培育稚贝生长和存活率
Fig.5 Growth and survival rates of juvenile shellfish during nursery culture
3 讨论
3.1 胶州湾日本海螂繁殖周期特征
中国常见的经济双壳贝类包括牡蛎、扇贝、蛤仔等,自然繁殖盛期因种类而异。如长牡蛎(Crassostrea gigas)[10]为7—8月,青蛤(Cyclina sinensis)[11]为7月下旬—8月中旬,引进种风信标扇贝(Patinopecten caurinus)[12]的繁殖盛期为4月。本研究表明,日本海螂在胶州湾的繁殖盛期有两个,为每年的4—5月和9月,水温为12.82 ℃和24.00 ℃。水温是调控贝类生殖发育的核心环境因子[13-14],日本海螂性腺指数、肥满度和条件指数的周年变化与海区水温呈现显著相关性,这与邵艳卿等[15]对人工蓄养斧文蛤(Meretrix lamarkii)的研究结论相符,性成熟率随着水温升高而增多。水温超越生物学零度是水生生物性腺发育启动的必要条件[16-17],高于生物学零度有效积温的积累使性腺不断发育成熟。物种繁殖周期不同可能与其性腺发育生物学零度的差异有关,虾夷扇贝(Patinopecten yessoensis)[16]性腺发育生物学零度为3.90 ℃,海湾扇贝(Argopecten Irradians )[18]的生物学零度为6.60 ℃,大连菲律宾蛤仔(Ruditapes philippinarum)[19]生物学零度为6.77 ℃,根据本文对日本海螂周年取样期间的性腺饱满度观察,推测性腺发育的生物学零度可能与虾夷扇贝相近,后续将开展进一步试验证实。
大部分海洋双壳贝类性腺发育可划分为增殖期、生长期、成熟期、排放期和休止期5个典型阶段,日本海螂也符合该周年繁殖特征。在生长期的雌性性腺中观察到与青蛤[20]类似卵母细胞的卵柄与卵泡壁相连的现象。与栉江珧(Atrina pectinata)[21]对比成熟期的生殖腺,虽然雄性个体中的精细胞都呈辐射状排列,但雌性个体中略有不同,日本海螂的滤泡壁上仍有少量与之相连的未成熟卵细胞,而栉江珧的卵细胞因挤压呈不规则形态。日本海螂排放期时生殖细胞分多次排放,6月成熟精、卵细胞排放完成后,不进入休止期,7月一部分个体性腺进行第二次发育,经过一段时间的能量和影响积累还可以再次排放,四角蛤蜊[22]也有类似现象。休止期性腺退化至最低状态,且是下一轮生殖周期的起点[23],该时期长短与种群恢复力有关,并可能受上一轮排放强度和温度等因素影响[24]。
随着水温的降低,日本海螂在12月—次年1月性腺处于休止期,性腺指数和条件指数升高,核心驱动机制在于其繁殖后能量分配策略的转变及与环境的适配[25]。繁殖盛期日本海螂通过大量排放精卵完成繁殖使命,体内储能物质被大量消耗,导致性腺指数和条件指数降至全年最低。进入休止期后,其核心生理目标从配子发生与排放转变为能量积累与机体修复,能量分配重心由生殖代谢转向生长与储能代谢[26]。此时性腺虽停止配子发育,但性腺组织进入修复与物质积累阶段,未成熟的生殖细胞开始缓慢增殖,能量积累推动性腺指数缓慢回升和条件指数显著上升,为下一轮性腺发育周期的启动储备物质基础[9,25]。
3.2 日本海螂胚胎发育时序进程及关键影响因素
大部分海产双壳贝类的早期生长发育经历受精卵、2 细胞期、4 细胞期、8 细胞期、桑葚期、囊胚期、原肠期、担轮幼虫期、D 形幼虫期,如菲律宾蛤仔[27]、虾夷扇贝[28]、钝缀锦蛤(Tapes dorsatus)[29]和长牡蛎[30]。日本海螂的早期生长发育也不例外,遵循以上典型模式。在本试验水温(20 ℃左右)和盐度(30)条件下,日本海螂受精卵发育至 D 形幼虫需22 h,较斧文蛤[15]的孵化时间略长,较日本海神蛤(Panopea japonica)[31]的孵化时间略短(表3),这种发育速率的差异关键与种间差异及卵径大小、胚胎能量储备相关。
表3 不同贝类在适宜温度下幼虫的发育时间
Tab.3 Effect of water temperature on larval development of the different shellfish species
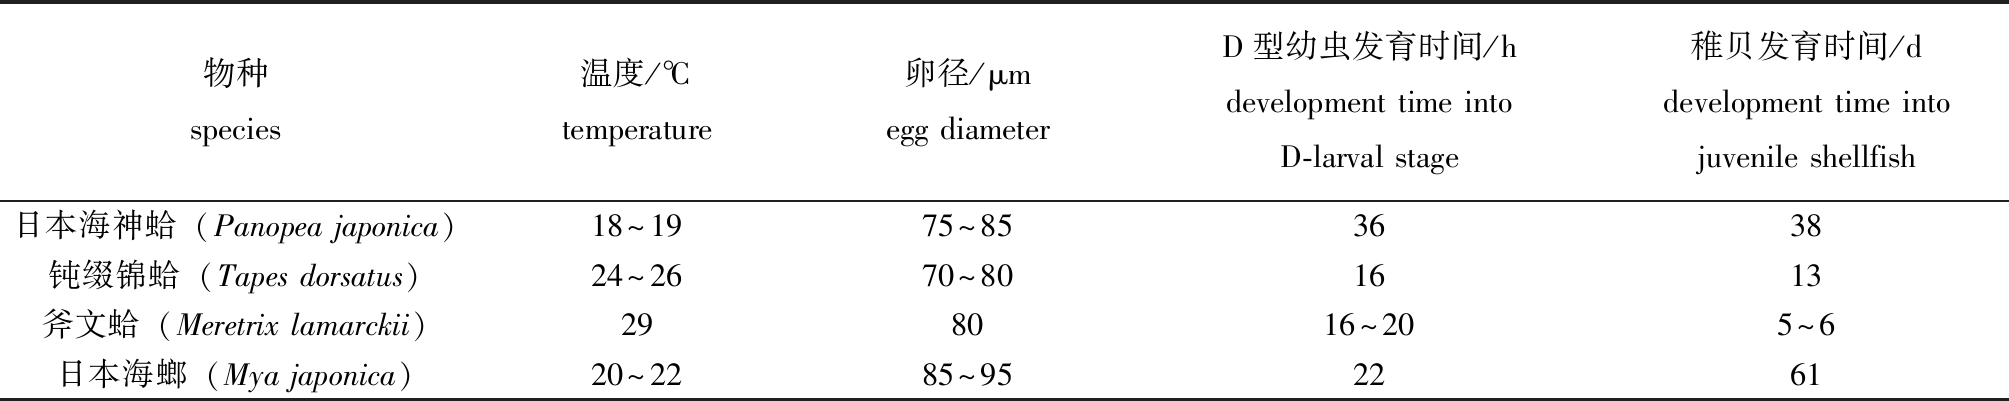
物种species温度/℃temperature 卵径/μmegg diameterD型幼虫发育时间/hdevelopment time into D-larval stage稚贝发育时间/ddevelopment time into juvenile shellfish日本海神蛤(Panopea japonica)18~1975~853638钝缀锦蛤(Tapes dorsatus)24~2670~801613斧文蛤(Meretrix lamarckii)298016~205~6日本海螂(Mya japonica)20~2285~952261
在双壳贝类幼虫发育中,“眼点”位于幼虫足部附近的一个色素点,是幼虫从浮游生活向底栖匍匐生活转变(附着变态前)的一个重要可辨识形态标志。与其他大部分双壳贝类不同,日本海螂幼虫附着变态过程中并未观察到眼点幼虫阶段,这与日本海神蛤、青蛤、紫石房蛤等变态期幼虫一致[7,31]。眼点幼虫在多数双壳贝类具足面盘幼体期均会出现,如扇贝、贻贝、牡蛎等[30,32-33]。在无脊椎动物中,眼点主要功能是感知光线强弱和方向等[34]。感光细胞是眼点的重要组成结构,徐敏慧[35]发现,光照会影响厚壳贻贝(Mytilus coruscus)眼点发育的关键基因和视蛋白基因的表达,从而影响眼点发育进程。在日本海螂和日本海神蛤的变态期幼虫均未发现眼点,可能与种类变态后成体的埋栖生活习性相关。Hadfield[36]指出,有些双壳类幼虫附着和变态机制并非视觉依赖性,而受特殊生物信息素诱导,如细菌生物膜代谢产物就在许多海洋无脊椎动物幼虫定居中起着关键作用。日本海螂作为一种埋栖型双壳类,成体下潜深度可以达到50 cm,且日本海螂成体的足退化严重,不像中国蛤蜊(Mactra chinensis Philippi)和文蛤等有跑滩(爬出洞穴,更改栖息地)行为[37-38],由于足退化,成年之后无挖掘下潜能力,故日本海螂一生只完成一次下潜。本研究中未观察到日本海螂幼虫的眼点,可能与上述变态过程依赖化学感受等因素,成体对光照依赖性降低,在进化过程中幼虫眼点结构逐渐退化有关。
3.3 日本海螂中间培育
贝类幼虫经过附着变态发育成稚贝后,由于稚贝相对比较脆弱,如果直接入海进行养殖往往成活率非常低,需经过一段时间中间培育,提高幼贝规格后方可转入养殖海域开展成贝养殖。本试验的中间培育采取海上和室内育苗室分别进行,在日本海螂幼虫在中间培育过程中,发现当前的海区中间培养和室内中间培养对幼虫的养殖效益均不理想。
传统的扇贝、魁蚶稚贝养殖采用浅海筏架中间培育模式,但对日本海螂来说并不适合,日本海螂成体为潜泥/沙生活,成体生长方向为壳长方向,在海上浮筏中间育成时,幼贝的壳长方向反复被摩擦,导致增厚、生长受阻,同时死亡率较高(图6)。室内育苗池进行中间培育的幼贝,虽成活率较高,但是由于饵料不如天然环境多样性高,补充不及时,生长较为缓慢。后期将借鉴其他埋栖型贝类,如缢蛏平面流等中间培育形式[39],打通日本海螂育苗产业化的最后环节。本课题组已研发了日本海螂性腺发育和苗种培育技术,并进行了小规模底播增殖放流,成活率较高,可为胶州湾海域日本海螂的规模化有序增养殖提供技术支撑。
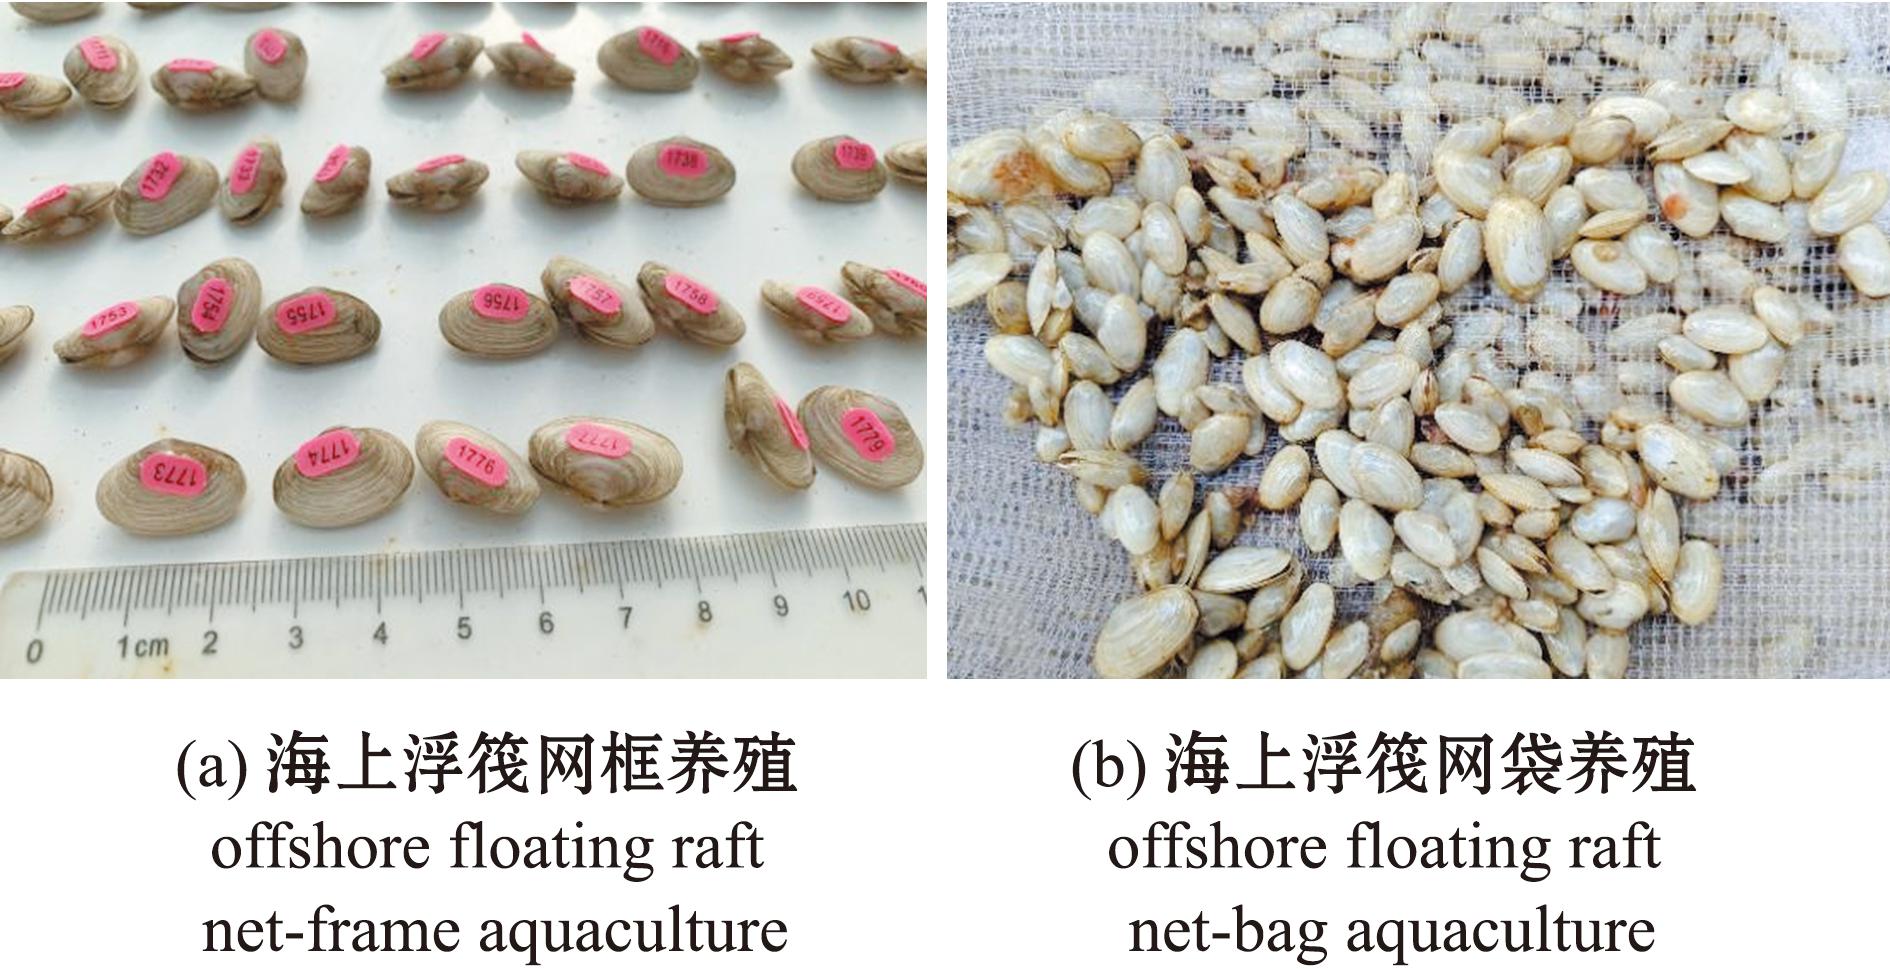
生长活动受囿于养殖设施与养殖生物的摩擦等,导致生长纹粗壮、明显。
The growth lines are robust and distinct,with growth activities constrained by friction between the aquaculture gear and the cultured organisms.
图6 海上浮筏中间培育的日本海螂
Fig.6 Intermediate cultivation of Mya japonica in offshore floating rafts
4 结论
1)胶州湾日本海螂性腺发育分为增殖期、生长期、成熟期、排放期和休止期,并与水温密切相关。在胶州湾每年有两个繁殖盛期,分别为4—5月和9月。
2)日本海螂早期生长发育与其他埋栖型双壳类典型发育模式一致,经历浮游幼虫期、附着变态期和底栖稚贝,幼虫发育过程无眼点幼虫阶段,可能是物种特化适应环境的表现。
3)日本海螂两种中间培育模式均不甚理想,未来将探寻饵料丰度高的室外池塘开展中间培育。
[1] ZHANG J L,YURCHENKO O V,LUTAENKO K A,et al.A tale of two soft-shell clams:an integrative taxonomic analysis confirms Mya japonica as a valid species distinct from Mya arenaria (Bivalvia:Myidae)[J].Zoological Journal of the Linnean Society,2018,184(3):605-622.
[2] 王宁.山东沿海重要渔业水域环境质量评价与管理对策[D].南京:南京农业大学,2019.WANG N.Environmental quality assessment and management countermeasure of important fishery waters in the coastal areas of Shandong Province[D].Nanjing:Nanjing Agricultural University,2019.(in Chinese)
[3] 王丽,丛玉婷,卢亚楠,等.砂海螂群体表型性状和重量性状的相关及通径分析[J].渔业研究,2018,40(1):35-41.WANG L,CONG Y T,LU Y N,et al.Correlation and path analysis of Mya arenaria group phenotypic traits and weight traits[J].Journal of Fisheries Research,2018,40(1):35-41.(in Chinese)
[4] 代梦迪.中国黄渤海潮间带日本砂海螂遗传多样性及线粒体基因组特征研究[D].天津:天津农学院,2024.DAI M D.Genetic diversity and mitochondrial genomic of Mya jponica in the intertidal zone of the yellow Bohai Sea,China[D].Tianjin:Tianjin Agricultural University,2024.(in Chinese)
[5] 徐筱琰,杜美荣,王庭豪,等.繁殖期日本海螂的壳尺寸性状对重量性状的通径分析[J].渔业科学进展,2025,46(1):127-135.XU X Y,DU M R,WANG T H,et al.Path analysis of morphological traits on weight traits of breeding Mya japonica[J].Progress in Fishery Sciences,2025,46(1):127-135.(in Chinese)
[6] 张明亮,王娥叶.芝罘湾砂海螂的性腺发育和生殖周期[J].烟台教育学院学报,2003(1):66-68.ZHANG M L,WANG E Y.Sex gonad development and repreductive cycle of Mya arenaria in Zhifu Bay[J].Journal of Yantai College of Education,2003(1):66-68.(in Chinese)
[7] 宋志乐,赵玉山,薛永兴,等.砂海螂(Mya arenaria linnaens)幼体与稚贝发育的初步研究[J].烟台大学学报(自然科学与工程版),1993,6(2):26-34.SONG Z L,ZHAO Y S,XUE Y X,et al.Larval and post-larval development of the clam,Mya arenaria linnaens[J].Journal of Yantai University (Natural Science and Engineering Edition),1993,6(2):26-34.(in Chinese)
[8] MICHAUD E,DESROSIERS G,MERMILLOD-BLONDIN F,et al.The functional group approach to bioturbation:The effects of biodiffusers and gallery-diffusers of the Macoma balthica community on sediment oxygen uptake[J].Journal of Experimental Marine Biology and Ecology,2005,326(1):77-88.
[9] MICHAUD E,DESROSIERS G,MERMILLOD-BLONDIN F,et al.The functional group approach to bioturbation:Ⅱ.The effects of the Macoma balthica community on fluxes of nutrients and dissolved organic carbon across the sediment-water interface[J].Journal of Experimental Marine Biology and Ecology,2006,337(2):178-189.
[10] 吕敏,李琪.山东田横岛海域长牡蛎性腺发育及生化成分周年变化[J].中国海洋大学学报(自然科学版),2022,52(2):33-40.LÜ M,LI Q.Seasonal variations of gonadal development and biochemical components of Crassostrea gigas in Tianheng Island Sea area,Shandong[J].Periodical of Ocean University of China(Natural Science Edition),2022,52(2):33-40.(in Chinese)
[11] 白胡木吉力图,马汝河,高悦勉,等.大连海区青蛤的性腺发育和生殖周期[J].大连水产学院学报,2008,23(3):196-199.BAI H,MA R H,GAO Y M,et al.The gonadal development and reproductive cycle of clam Cyclina sinensis in coastal Dalian[J].Journal of Dalian Fisheries University,2008,23(3):196-199.(in Chinese)
[12] 朱星海,孙红振,杨祖晶,等.风信标扇贝的性腺发育与繁殖周期规律研究[J].中国海洋大学学报(自然科学版),2019,49(2):52-58.ZHU X H,SUN H Z,YANG Z J,et al.Studies on gonadal development and the reproductive cycle of Patinopecten caurinus[J].Periodical of Ocean University of China(Natural Science Edition),2019,49(2):52-58.(in Chinese)
[13] LAZO C S,PITA I M.Effect of temperature on survival,growth and development of Mytilus galloprovincialis larvae[J].Aquaculture Research,2012,43(8):1127-1133.
[14] CHENG G,LIANG Y X,ZHANG H N,et al.Effects of temperature and salinity on the larval early development,growth,and settlement of the diploid,triploid,and tetraploid Pacific oyster “Haida No.2” strain[J].Aquaculture International,2024,32(5):6097-6113.
[15] 邵艳卿,张炯明,方军,等.人工蓄养斧文蛤的生殖周期及早期发育[J].中国水产科学,2017,24(1):82-90.SHAO Y Q,ZHANG J M,FANG J,et al.Reproductive cycle and early development of Meretrix lamarkii(Veneroida:Veneridae) under artificial conditions[J].Journal of Fishery Sciences of China,2017,24(1):82-90.(in Chinese)
[16] 田斌,王璐.虾夷扇贝性腺发育的生物学零度与有效积温研究[J].中国水产,2018(5):93-96.TIAN B,WANG L.The zero point temperature and the effective accumulative temperature for the biology of the gonad development of Patinopecten yessoensis[J].China Fisheries,2018(5):93-96.(in Chinese)
[17] 赵雯,车宗豪,刘括,等.日本海神蛤(Panopea japonica)性腺发育生物学零度及有效积温研究[J].海洋科学,2022,46(10):78-84.ZHAO W,CHE Z H,LIU K,et al.Biological zero degree and effective accumulated temperature of the geoduck clam Panopea japonica[J].Marine Sciences,2022,46(10):78-84.(in Chinese)
[18] 田传远,梁英,王如才.海湾扇贝性腺发育的生物学零度[J].青岛海洋大学学报,1995(1):56-58.TIAN C Y,LIANG Y,WANG R C.Study on the biological zero of gonad development of bay scallop agropecten irradians[J].Journal of Ocean University of Qingdao,1995(1):56-58.(in Chinese)
[19] 梁峻,闫喜武,李霞,等.菲律宾蛤仔性腺发育生物学零度的研究[J].海洋科学,2007,31(9):67-72.LIANG J,YAN X W,LI X,et al.Biological zero point of gonad development of Ruditapes philippinarum[J].Marine Sciences,2007,31(9):67-72.(in Chinese)
[20] 廖晓婷,闫素素,柳梅梅,等.青蛤幼贝生长及性腺组织学研究[J].水产学杂志,2025,38(2):49-56.LIAO X T,YAN S S,LIU M M,et al.Growth and gonadal histological observation of juvenile Venus clam Cyclina sinensis[J].Chinese Journal of Fisheries,2025,38(2):49-56.(in Chinese)
[21] 杨陆飞,栾淼,魏聪,等.栉江珧性腺发育过程中脂肪及脂肪酸组成分析[J].海洋通报,2025,44(4):516-524.YANG L F,LUAN M,WEI C,et al.Analysis of lipids and fatty acid composition during gonadal development of Atrina pectinata[J].Marine Science Bulletin,2025,44(4):516-524.(in Chinese)
[22] 刘项峰,谢玺,陈微,等.辽河口四角蛤蜊繁殖周期研究[J].水产科学,2021,40(6):883-888.LIU X F,XIE X,CHEN W,et al.Reproduction of surf clam Mactra veneriformis inhabiting the Liaohe Estuary[J].Fisheries Science,2021,40(6):883-888.(in Chinese)
[23] SASTRY A N.Reproductive cycles of bivalves: a review[J].American Zoologist,1979,19(2):395-408.
[24] ANGEL P REZ C,SERRANO GUZM
 N S J,ANGEL AHUMADA SEMPOAL M.Ciclo reproductivo del molusco Atrina maura (Pterioidea:Pinnidae) en un sistema lagunar costero,al sur del Pacífico tropical mexicano[J].Revista de Biología Tropical,2007,55(3/4):839-852.
[25] DRIDI S,ROMDHANE M S,ELCAFSI M.Seasonal variation in weight and biochemical composition of the Pacific oyster,Crassostrea gigas in relation to the gametogenic cycle and environmental conditions of the Bizert lagoon,Tunisia[J].Aquaculture,2007,263(1/2/3/4):238-248.
[26] 王如才,王昭萍.海水贝类养殖学[M].青岛:中国海洋大学出版社,2008.WANG R C,WANG Z P.Science of marine shellfish culture[M].Qingdao:China Ocean University Press,2008.(in Chinese)
[27] 吴磊.菲律宾蛤仔人工催产及早期生长发育研究[D].连云港:江苏海洋大学,2022.WU L.Study on artificial induction and early growth of Ruditapes philippinarum clam[D].Lianyungang:Jiangsu Ocean University,2022.(in Chinese)
[28] 张凯,杨蓓蓓,张振华,等.黄河三角洲区域虾夷扇贝苗种繁育技术初探[J].中国水产,2023(8):59-61.ZHANG K,YANG B B,ZHANG Z H,et al.Preliminary study on breeding techniques of scallop (Chlamys yessoensis) in the Yellow River Delta region[J].China Fisheries,2023(8):59-61.(in Chinese)
[29] 张柯馨,罗泽鑫,张元,等.钝缀锦蛤规模化人工育苗技术研究[J].南方水产科学,2023,19(3):51-59.ZHANG K X,LUO Z X,ZHANG Y,et al.Study on large-scale artificial seedling breeding technology of Tapes dorsatus[J].South China Fisheries Science,2023,19(3):51-59.(in Chinese)
[30] 赵乃乾,肖述,刘浩翔,等.盐度对牡蛎“华南1号”早期发育与生长的影响[J].中国海洋大学学报(自然科学版),2020,50(8):53-64.ZHAO N Q,XIAO S,LIU H X,et al.Effect of salinity on early development and growth of oyster “South China No.1”[J].Periodical of Ocean University of China(Natural Science Edition),2020,50(8):53-64.(in Chinese)
[31] 霍忠明,赵雯,肖友翔,等.日本海神蛤人工繁殖及早期生长发育[J].水产学报,2021,45(2):235-245.HUO Z M,ZHAO W,XIAO Y X,et al.Artificial breeding,early growth and development of Panopea japonica[J].Journal of Fisheries of China,2021,45(2):235-245.(in Chinese)
[32] 刘洋,于瑞海,张哲,等.不同pH对海湾扇贝胚胎发育及幼虫生长发育的影响[J].渔业科学进展,2020,41(6):108-114.LIU Y,YU R H,ZHANG Z,et al.Effects of different pH on embryo development and larval growth of bay scallop (Argopecten irradia)[J].Progress in Fishery Sciences,2020,41(6):108-114.(in Chinese)
[33] 常抗美,吴剑锋.厚壳贻贝人工繁殖技术的研究[J].南方水产,2007(3):26-30.CHANG K M,WU J F.Study on artificial propagation of mussel Mytilus coruscus[J].South China Fisheries Science,2007(3):26-30.(in Chinese)
[34] LAND M F,NILSSON D E.Animal eyes[M].New York:Oxford University Press,2012.
[35] 徐敏慧.厚壳贻贝视觉功能与昼夜节律调控机制初探[D].舟山:浙江海洋大学,2024.XU M H.Preliminary exploration on visual function and circadian rhythm regulation mechanism of Mytilus coruscus[D].Zhoushan:Zhejiang Ocean University,2024.(in Chinese)
[36] HADFIELD M G.Biofilms and marine invertebrate larvae:what bacteria produce that larvae use to choose settlement sites[J].Annual Review of Marine Science,2011,3:453-470.
[37] 李金泽,胡志,王晓龙,等.中国蛤蜊Mactra chinensis Philippi稚贝运动行为学初步研究[J].海洋科学,2023,47(12):63-68.LI J Z,HU Z,WANG X L,et al.Preliminary study on the behavior of Mactra chinensis Philippi[J].Marine Sciences,2023,47(12):63-68.(in Chinese)
[38] 刘绿叶,孙国铭,姚国兴,等.文蛤增养殖区主要环境因子变化规律研究[J].水产养殖,2006,27(6):12-15.LIU L Y,SUN G M,YAO G X,et al.Season and site variations of the main environmental factors in main Meretrix meretrix culture areas[J].Journal of Aquaculture,2006,27(6):12-15.(in Chinese)
[39] 林兴管,张翔,滕爽爽,等.不同流速和苗种规格对缢蛏平面流中间培育效果的影响[J].海洋科学,2020,44(4):103-110.LIN X G,ZHANG X,TENG S S,et al.Effect of different flow rates and sizes on the growth and survival of Sinonovacula constricta juveniles in the circulatory raceway system[J].Marine Sciences,2020,44(4):103-110.(in Chinese)