青海湖裸鲤(Gymnocypris przewalskii)属鲤科(Cyprinidae)裂腹鱼亚科(Schizothoracinae)裸鲤属(Gymnocypris)[1],作为青海湖独有的经济鱼类,在青海湖生态系统中占据核心地位[2]。青海湖是中国最大的内陆咸水湖,具有典型的高盐碱水环境特征,碳酸盐碱度为26~32 mg/L,pH为9.1~9.5[3]。生活在其中的青海湖裸鲤长期面临高盐碱等多重环境胁迫,在长期进化过程中发展出了独特的生理适应机制[4]。在盐碱水体环境中,除盐度本身外,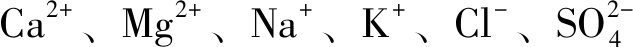 及
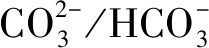 (碳酸盐碱度,CA)和OH-(pH)等主要离子,都以不同机制影响水生动物的渗透压调节、酸碱平衡、酶活性和能量代谢,进而影响其生长速度与存活率[4]。其中,由
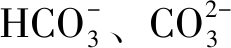 组成的碳酸盐碱度胁迫是最为关键的胁迫因素之一[5]。碱度胁迫在养殖水生动物中很常见,被认为是鱼类转移到盐碱水域时的主要胁迫因素之一[6],这也是鱼类在盐碱水域转移时面临的主要胁迫[7]。国内外学者对鱼类盐碱胁迫下的生理响应机制已有广泛研究,主要集中在渗透压调节、离子平衡维持以及抗氧化防御系统的应答等方面[8-9]。
近年来,国内学者针对青海湖裸鲤开展了一系列研究[10-11]。刘济源[12]等采用急性毒理试验的方法,对青海湖裸鲤幼鱼进行了急性盐度和碳酸盐碱度胁迫试验。试验结果表明,青海湖裸鲤幼鱼对盐度24、48、72、96 h的半致死浓度(LC50)分别为21.15、18.85、18.32、18.20 mmol/L,对盐度18 mmol/L较为敏感;而对碳酸盐碱度的LC50分别为165.02、158.13、153.53、150.18 mmol/L,显示青海湖裸鲤具有较强的碳酸盐碱度耐受能力。这些研究初步揭示了青海湖裸鲤对盐碱胁迫的耐受阈值,但对其内在的代谢适应机制仍缺乏系统认识。
肝脏作为鱼类重要的代谢器官,在维持机体内环境稳态、解毒代谢和能量调节方面发挥关键作用[13]。如高碱度环境可能导致氧化应激水平升高,激活肝脏中的抗氧化酶系统(如SOD、CAT)以应对ROS积累[14];同时也会影响糖原储备与脂质代谢过程,引起能量分配策略的转变[15]。此外,碱胁迫可调控肝脏中与渗透调节及氮代谢相关关键基因的表达,进一步证实了肝脏在鱼类盐碱适应中的核心地位[16]。
近年来,中国高度重视盐碱地等后备资源的开发利用。2023年中央一号文件明确提出挖掘盐碱地潜力,为相关研究提供了重要的政策支撑[17]。深入研究青海湖裸鲤等本土盐碱水域特有鱼类对高盐碱胁迫的独特适应机制,不仅具有重要的生态学意义,也为未来科学利用广阔盐碱水域资源、拓展水产养殖空间、培育耐盐碱水产品种提供了理论依据和种质资源支撑,高度契合国家保障粮食安全与食物供给多样化的重大需求[18]。
本研究中旨在深入探讨急性碱度胁迫对青海湖裸鲤肝脏代谢的影响,从代谢水平上揭示其适应高碱环境的生理机制。这不仅有助于丰富鱼类生理生态学理论,也为理解生物体如何应对极端环境提供了重要参考。
1 材料与方法
1.1 材料
试验用鱼为健康的青海湖裸鲤幼鱼,体长为(15±5 )cm,体质量为(10±5 )g,采自青海湖裸鲤救护中心。试验开始前,将鱼在自来水中进行为期2周的预养。预养期间保持连续充氧,每日投喂一次基础饲料,投喂量为鱼体质量的3%~5%。试验用水为经过滤循环系统过滤的自来水,水质条件如下:溶解氧≥7 mg/L,pH为6.7~7.4,养殖水温维持在17 ℃±1 ℃,以保证鱼种状态相对稳定。试验使用Na2CO3和NaHCO3按比例(NaHCO3∶Na2CO3=9∶1)配制成浓度为64 mmol/L的碱水,用于试验组处理。对照组使用经过滤循环系统过滤的自来水饲养。
1.2 方法
1.2.1 试验设计 将预养两周后的青海湖裸鲤随机选取健康、大小相近的幼鱼240尾,平均分配到6个缸中,分别记为对照组(SAC)和试验组(AL64),每组设置3个重复,每个重复放置40尾鱼。对照组使用过滤自来水饲养,试验组饲养于上述配制的64 mmol/L碱水中。急性碱度胁迫试验持续7 d。试验结束后,从试验组和对照组各随机选取6尾鱼,经MS-222麻醉后解剖,取其肝脏组织,液氮速冻后转移至-80 ℃保存备用。
1.2.2 代谢物提取 取100 mg经液氮研磨的肝脏组织样本置于1.5 mL EP管中,加入500 μL预冷的80%甲醇水溶液(体积浓度),涡旋充分混合;冰浴静置5 min后,于4 ℃、15 000 g离心20 min,分离固液两相;定量移取适量上清液,加入质谱级水稀释,将甲醇终浓度调节至53%(体积浓度);再次在相同条件(15 000 g、4 ℃、20 min)下离心,收集最终上清液用于LC-MS分析。
1.2.3 样品测定 使用高效液相色谱仪,通过Hypersil Gold column(C18)液相色谱柱对目标肝脏样本进行色谱分离。色谱条件,液相色谱A相为0.1%甲酸,B相为甲醇;柱温,4 ℃;流速,0.2 mL/min。在该色谱条件下,利用HPLC的控制软件,设置起始流动相比例A相98%,B相2%,同时设置梯度时间,根据样品的性质和分离目标,设置梯度程序为0~1.5 min,A相为98%、B相为2%;1.5~3.0 min,A相为15%、B相为85%;3~10 min,A相为0%、B相为100%;10.0~10.1 min,A相为98%、B相为2%;10.1~11.0 min,A相为98%、B相为2%;11~12 min,A相为98%、B相为2%。质谱条件:质量扫描范围为m/z 100~1 500,数据采集模式为正负离子双模式交替扫描(Positive/Negative)。电喷雾离子源(ESI)的关键参数如下:喷雾电压(spray voltage),3.5 kV(优化离子化效率);鞘气流速(sheath gas flow rate),35 psi(稳定喷雾形成);辅助气流速(Aux gas flow rate),10 L/min(加速离子传输);辅助气加热器温度(Aux gas heater temp),350 ℃(降低溶剂残留干扰);离子传输毛细管温度(capillary temp),320 ℃(平衡离子化效率与热稳定性);离子导入射频电平(S-lens RF level),60;极性(Polarity),positive,negative(优化离子束聚焦路径);数据依赖性扫描(data-dependent scans)为MS/MS二级扫描。
1.3 数据处理
1.3.1 代谢物鉴定 将质谱仪采集的原始数据(.raw格式)导入Compound Discoverer 3.3分析平台,首先基于保留时间(RT)和质荷比(m/z)对代谢物进行初级筛选。采用首针质控样本(QC1)的峰面积作为基准进行全局校正,以减少系统误差对检测结果的影响。设定严格的质量控制参数,包括质量数偏差阈值±5 mg/L、信号强度变异允许范围≤30%、最低信号强度阈值及特定加合离子类型(如[M+H]4/[M-H]-)。通过上述参数执行自动峰提取,同步完成目标离子整合及峰面积定量。然后基于高分辨质谱提供的精确分子量及特征碎片离子信息,结合三重数据库验证策略——包括mzCloud高精度碎片谱库、mzVault本地自定义数据库及Masslist代谢物标准品数据库进行物质比对。引入blank样本扣除环境背景干扰离子,提升鉴定特异性。通过样本代谢物定量总值与QC1定量总值的比值计算相对峰面积(标准化公式;相对峰面积=样本原始值/QC1总值)。对QC样本进行严格质控,剔除相对峰面积变异系数(CV)>30%的代谢物特征峰,确保代谢物的差异据重现性。经上述多维度数据清洗与验证后,获得包含代谢物的鉴定及标准化相对定量结果。
1.3.2 统计分析 采用代谢组学技术对试验组与对照组肝脏代谢物的动态变化进行系统性比较,数据经过metaX处理软件标准化处理,分别运用主成分分析(PCA)和偏最小二乘法辨别分析(PLS-DA)进行分析并构建模型,进而得到各代谢物VIP值。结合多维统计分析结果对肝脏代谢物数据的动态变化进行对比分析,系统揭示两组样本间代谢物的差异。采用独立样本t检验来评估代谢物在试验组与对照组间的统计学显著性差异(P值),同步计算代谢物在两组间的差异倍数(Fold Change,FC)。差异代谢物筛选的默认标准为VIP>1,P<0.05,且FC≥2或FC≤0.5。使用R软件对差异代谢物进行KEGG通路注释分析,P<0.05为显著富集的信号通路。
2 结果与分析
2.1 非靶代谢物分析
通过非靶代谢组学技术对青海湖裸鲤肝脏样本进行鉴定并分析,各处理负离子(1 030)与正离子(1 557)模式下共鉴定出2 587个代谢物,所有代谢物可区分为负离子11类。各类物质百分含量占比如(图1(a))所示,脂质和脂质样分子 (35.73%)、有机酸及其衍生物 (28.15%)、有机杂环化合物 (11.81%)、有机氧化合物 (7.78%)、苯并类化合物 (5.91%)、苯丙烷类和聚酮类 (4.82%)、核苷、核苷酸及其类似物 (2.85%)、生物碱及其衍生物 (1.97%)、有机硫化合物 (0.49%)、有机氮化合物 (0.39%)及有机卤化物 (0.10%);正离子16类。各类物质百分含量占比如(图1b) 所示,脂质和类脂分子(32.84%)、有机酸及其衍生物(29.34%)、有机杂环化合物(14.70%)、苯系物(7.97%)、有机氧化合物(5.44%)、有机氮化合物(2.78%)、苯丙素类与聚酮类(2.53%)、生物碱及其衍生物(1.94%)、核苷、核苷酸及其类似物(1.55%)、碳氢化合物(0.52%)有机硫化合物(0.19%)、木脂素、新木脂素及相关化合物(0.13%)及有机磷化合物(0.06%)。
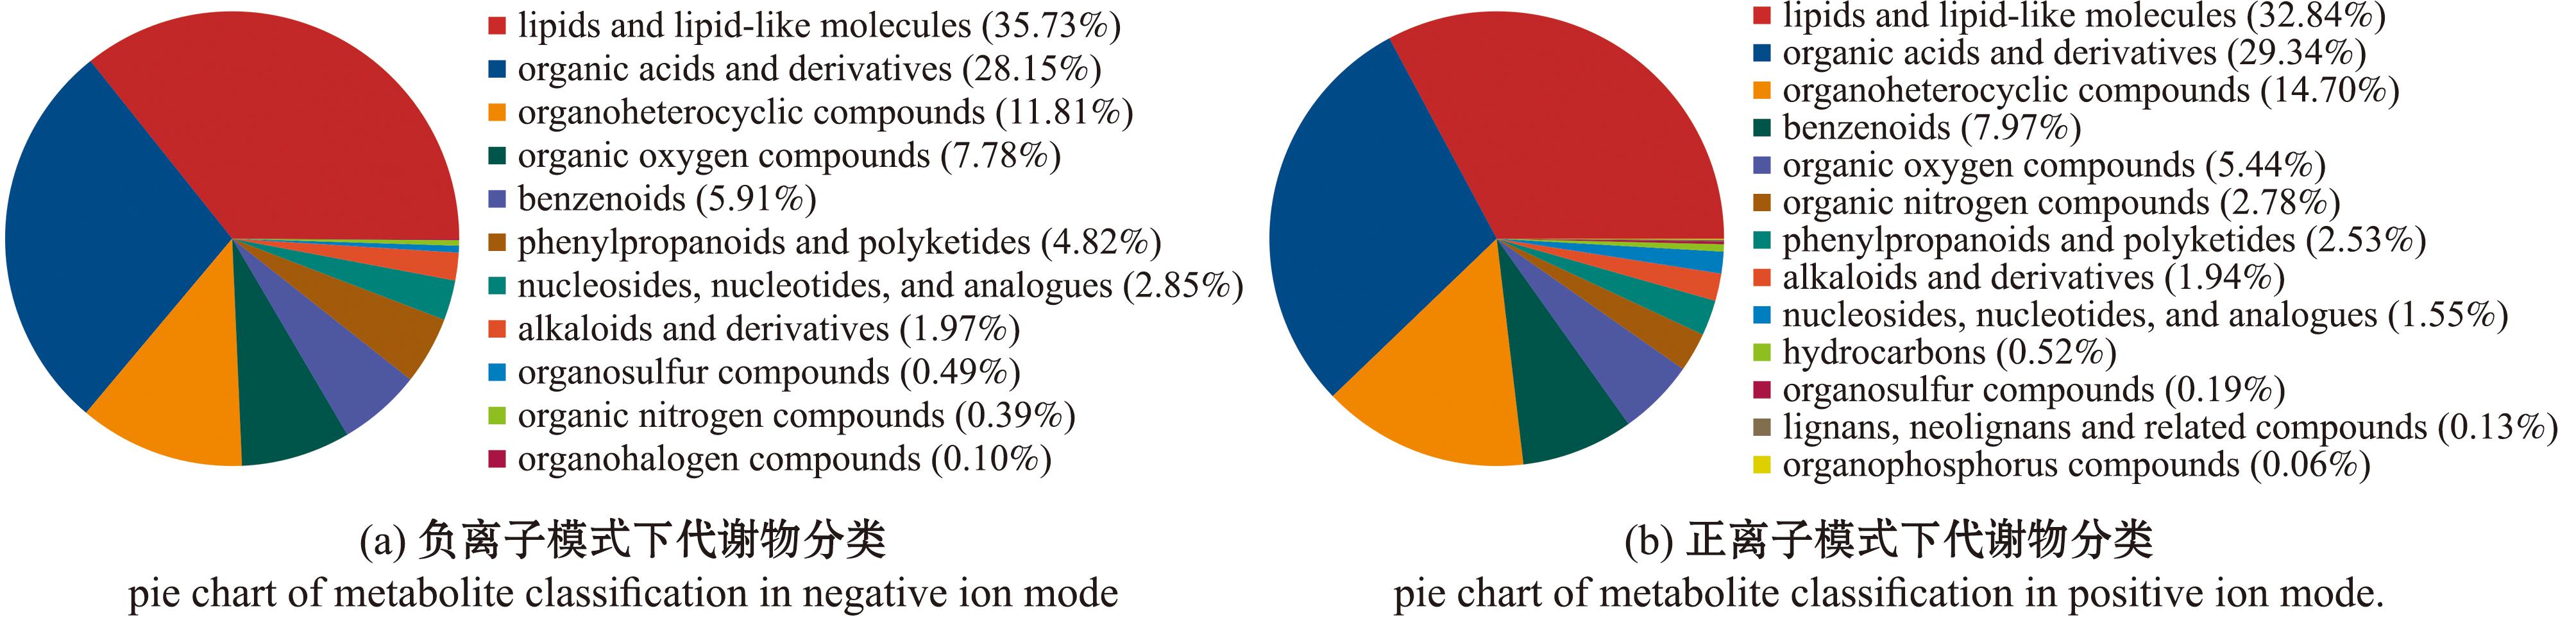
图1 青海湖裸鲤肝脏代谢物分类
Fig.1 Pie chart of classified liver metabolites of Gymnocypris przewalskii
2.2 主成分分析
试验中检测到代谢物生成所有样品的PCA(图2),为了识别AL64和SAC之间代谢物的显著差异,本试验进行了多元统计分析。主成分分析(PCA)显示,在正离子模式(图2(a))下PC1解释了28.65%总方差变量,PC2解释了18.99%总方差变量.在负离子模式(图2(b))下PC1解释23.97%总方差变量,PC2解释了17.11%总方差变量.PCA图显示AL64组与SAC组之间存在明显分离,各组内样本紧密聚类,表明组内代谢物一致性高且组间代谢物组成存在显著差异。
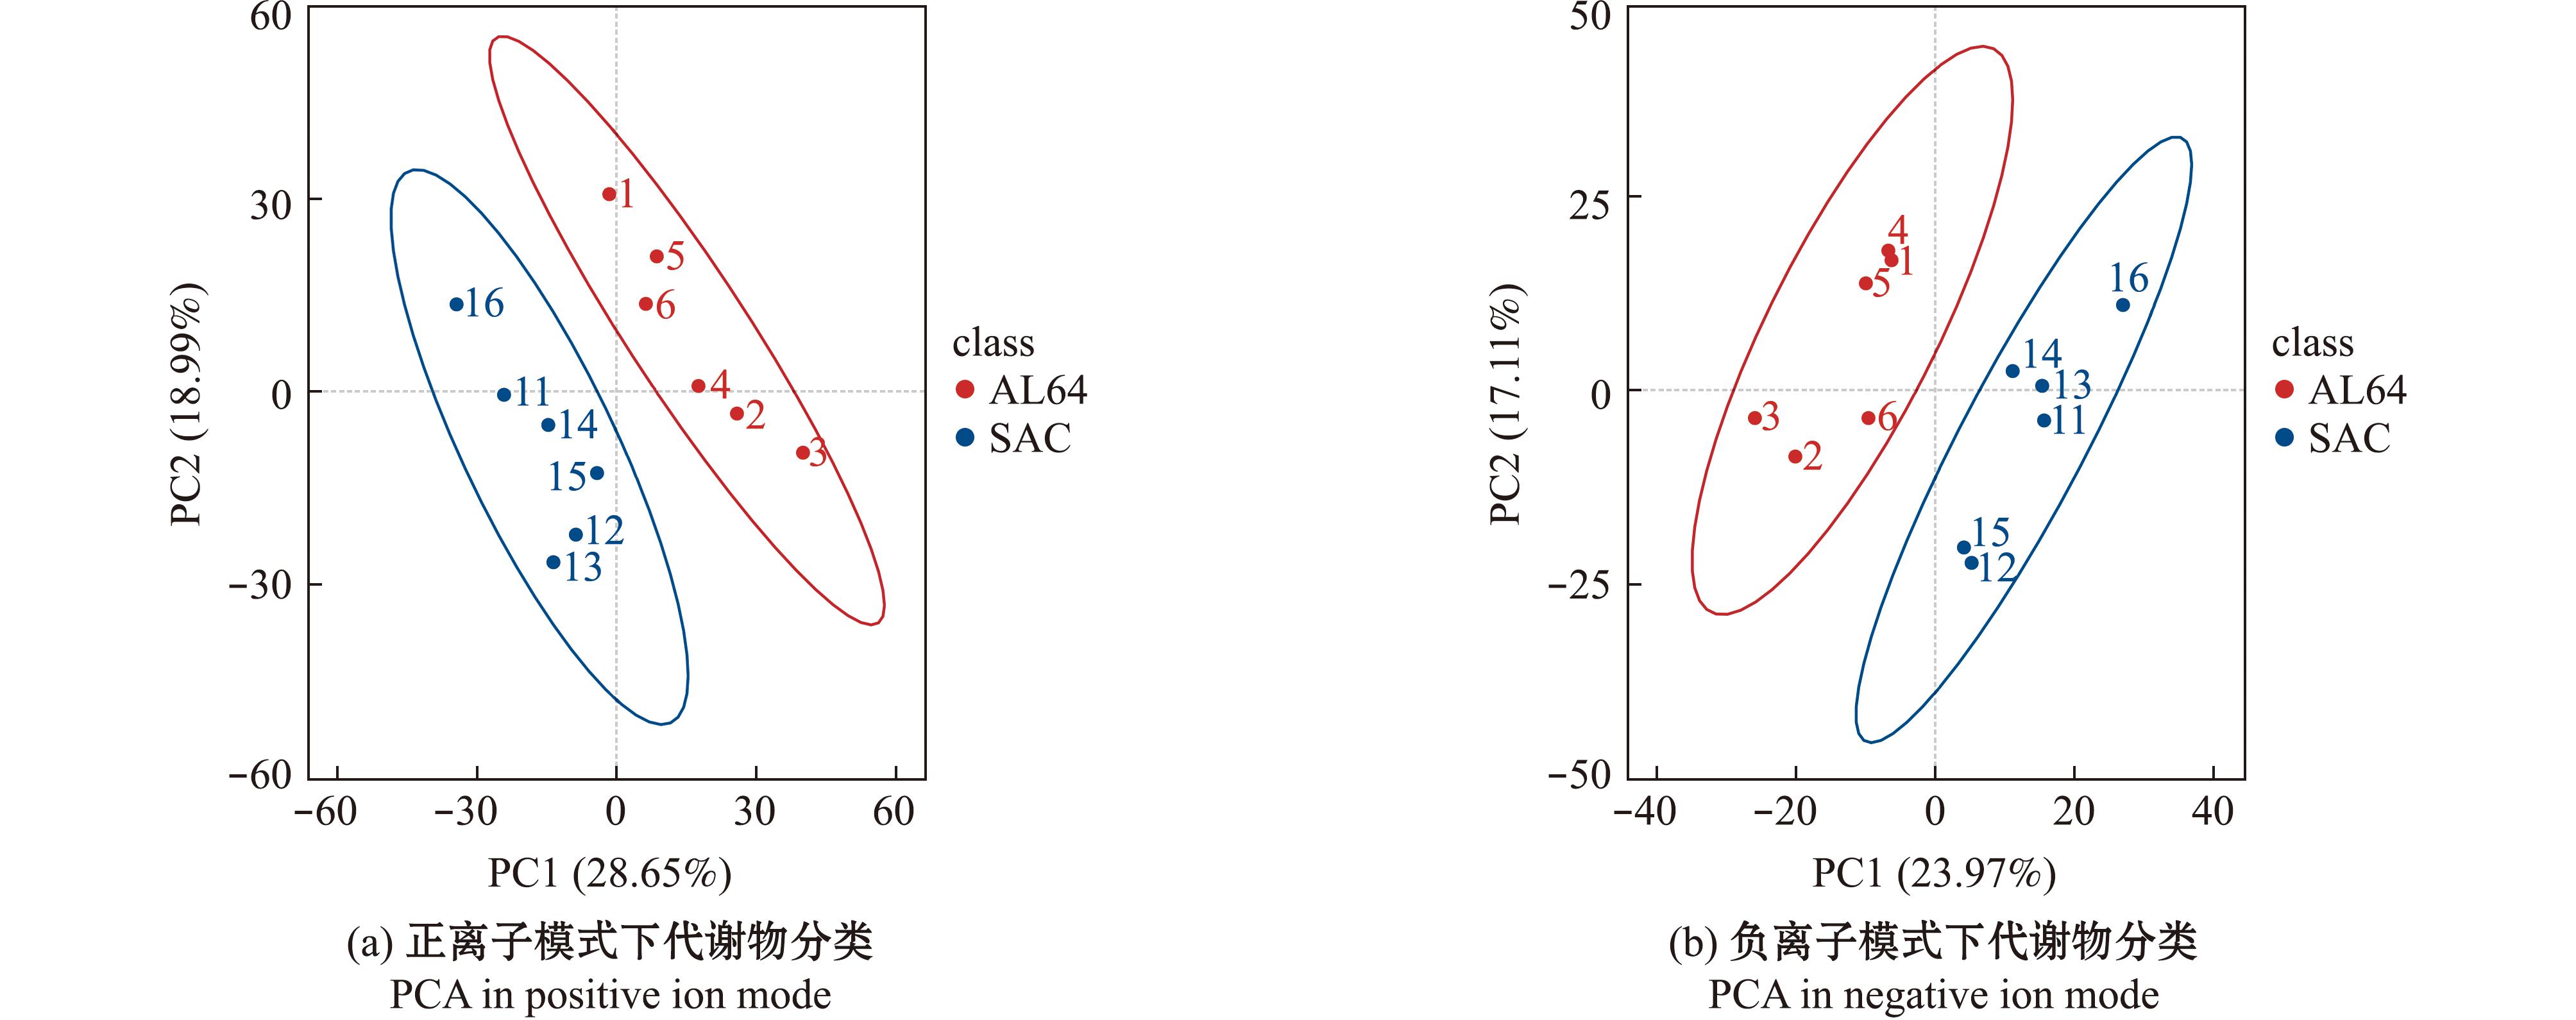
图2 青海湖裸鲤肝脏代谢物主成分分析(PCA)
Fig.2 Principal component analysis(PCA)plot of liver metabolites of Gymnocypris przewalskii
2.3 偏最小二乘法判别分析
为进一步探讨AL64样本与SAC样本组间的差异,使用有监督的PLS-DA采用7次循环交互验证以观察样本中代谢物的整体代谢轮廓差异。在正离子模式下R2Y为0.98(图3(a)),负离子模式下R2Y为0.86(图3(b)),均接近1,且Q22Y在正负离子模式下分别为0.99和0.87,也同样接近1,说明模型建立良好,数据可靠。
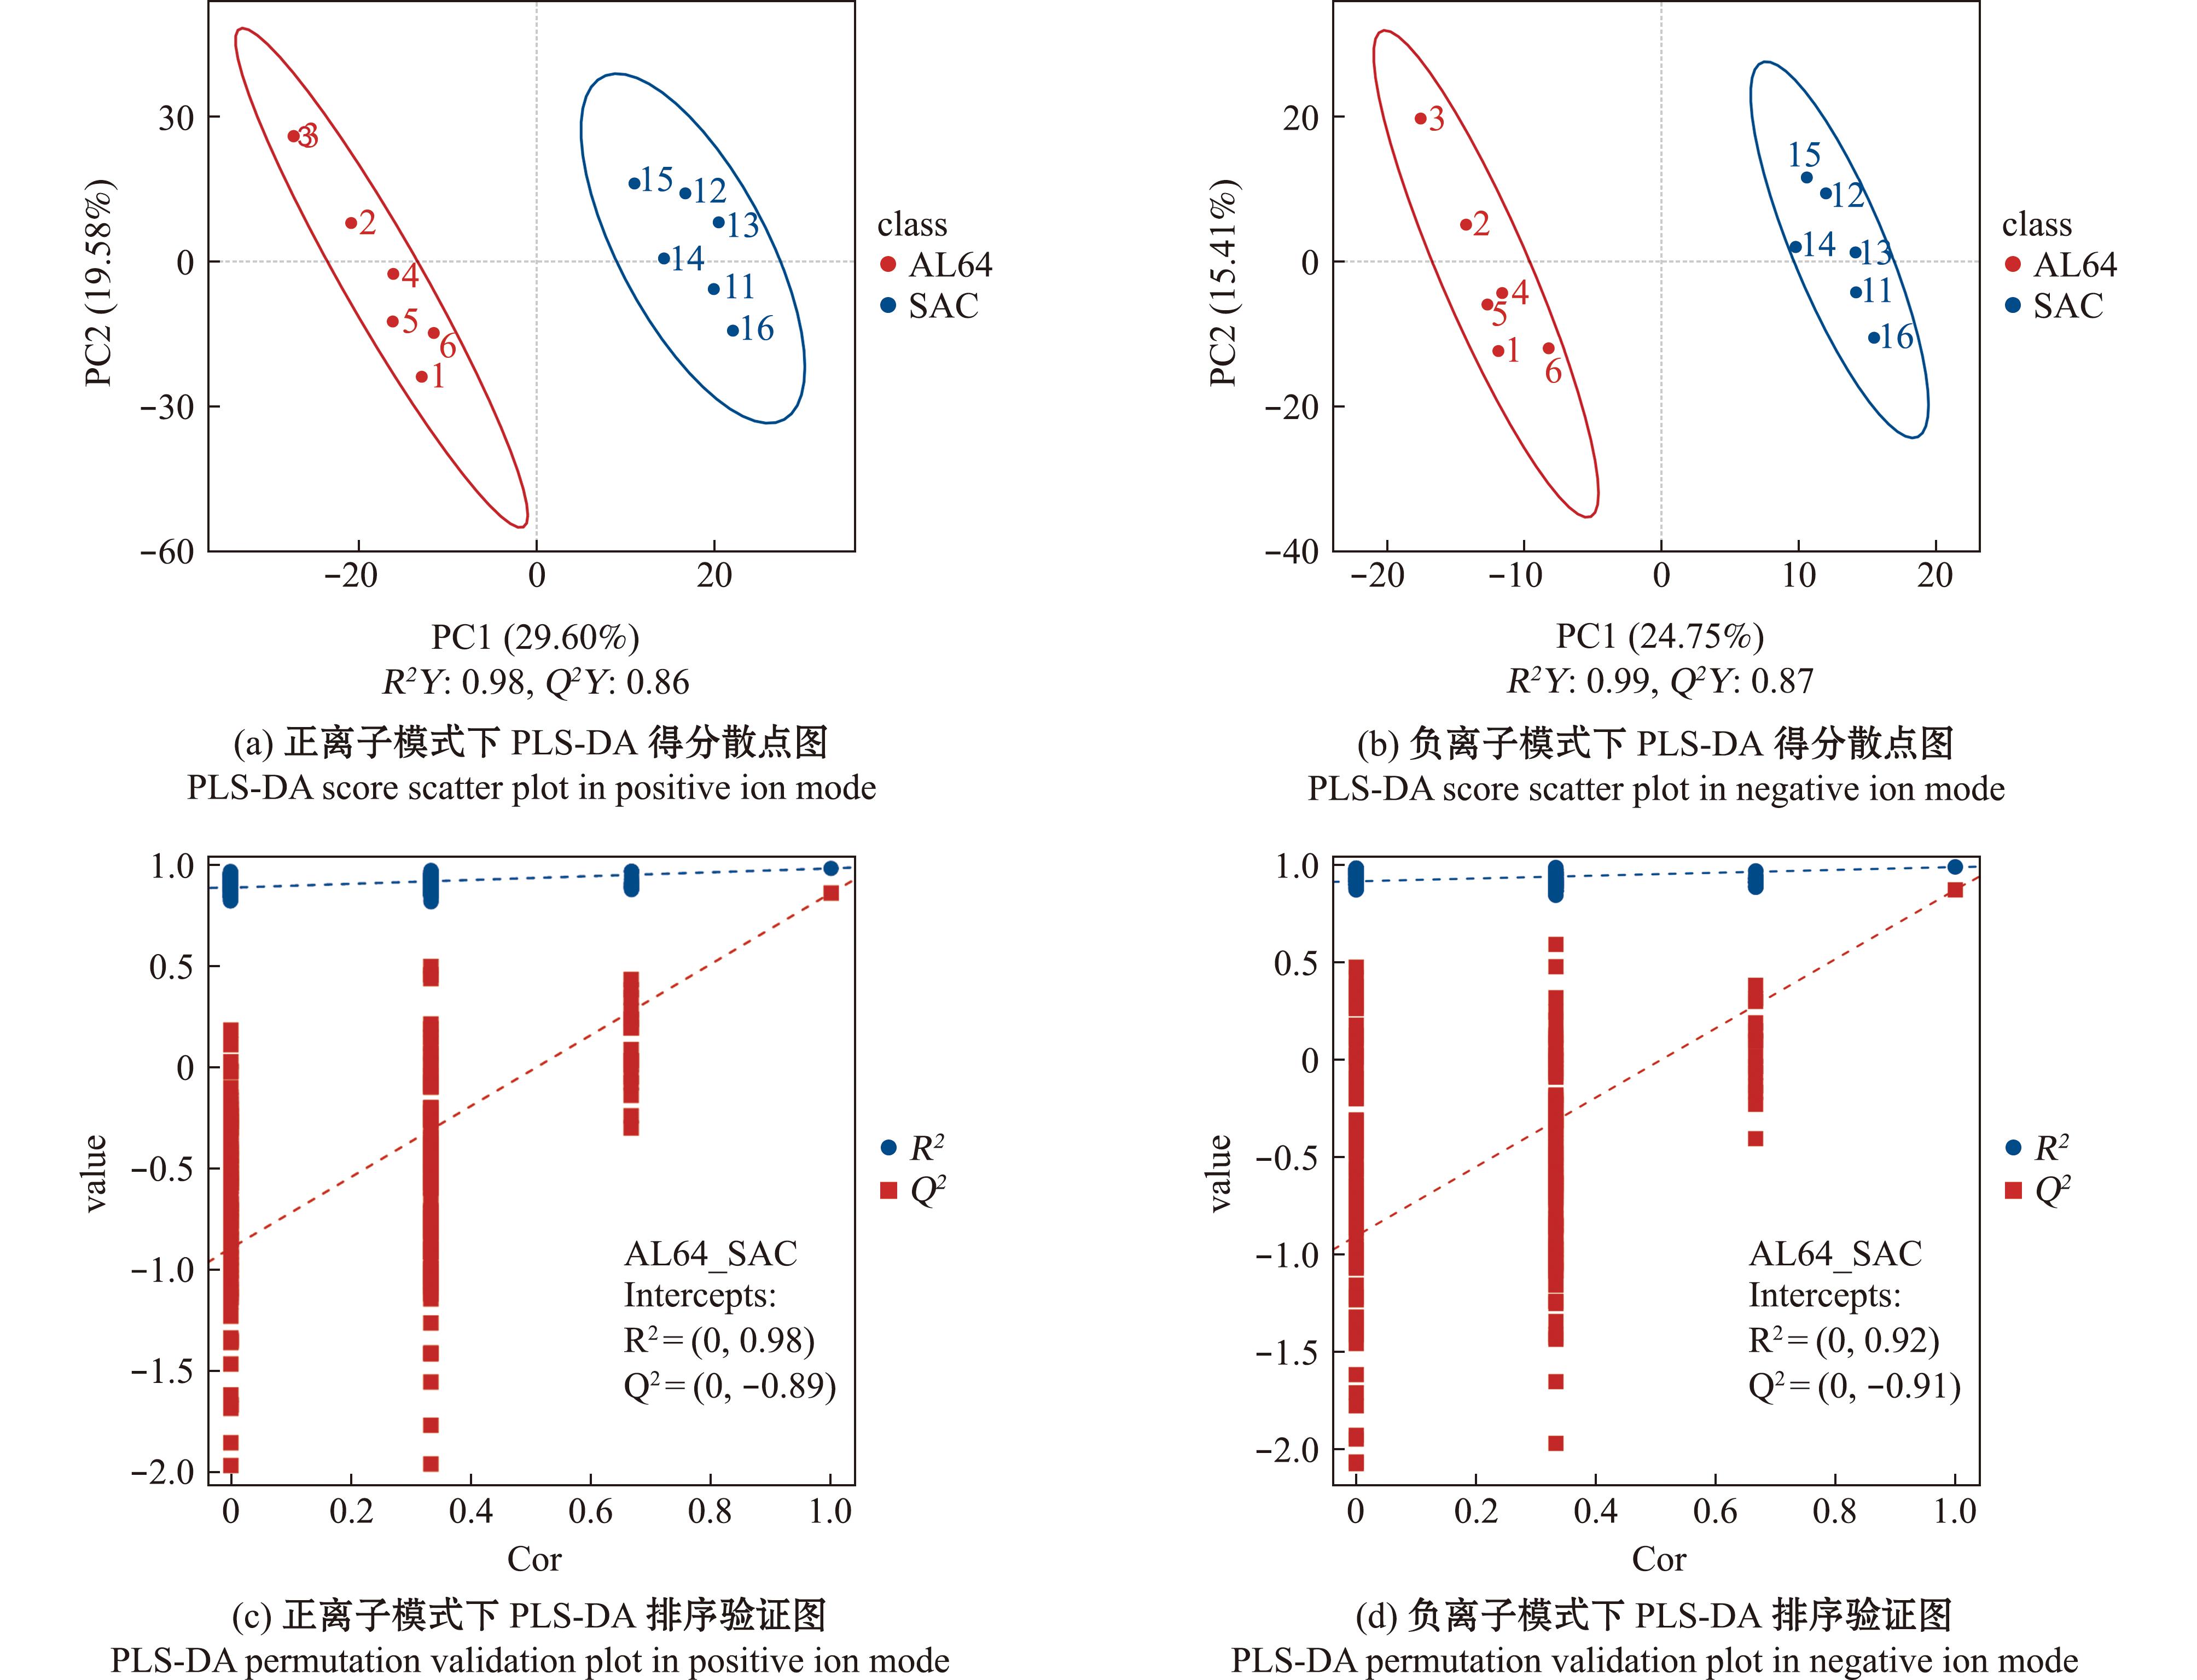
图3 青海湖裸鲤肝脏代谢物PLS-DA 得分散点图和排序验证图
Fig.3 PLS-DA score plot and PLS-DA permutation validation plot for liver metabolites of Gymnocypris przewalskii
为了判别该模型质量是否合格,进一步对该模型进行排序验证,横坐标表示样本在第一主成分上的得分,纵坐标表示样本在第二主成分上的得分,且在正离子模式下R2为0.89(图3(c)),负离子模式下R2为0.92(图3(d)),均接近1,而Q2在正负离子模式下分别为-0.89和-0.91,均小于0。在正负离子两种模式下R2均大于Q2,且Q2均小于0,说明PLS-DA模型不存在过拟合,同时表明肝脏代谢物AL64样本与对照组SAC样本相比差异显著。
2.4 差异代谢物的筛选与鉴定
根据VIP>1,P<0.05,且FC≥2或FC≤0.5筛选组间显著差异代谢物,以评估急性碱度胁迫对青海湖裸鲤肝脏代谢的影响。正离子模式下AL64和SAC共筛选出383个差异代谢物(上调代谢物为241,下调代谢物为142个)(图4(a))。负离子模式下AL64和SAC共筛选出234个差异代谢物(上调代谢物为120,下调代谢物为114个)(图4(b))。与对照组SAC相比,试验组AL64都出现更多显著上调差异代谢物。
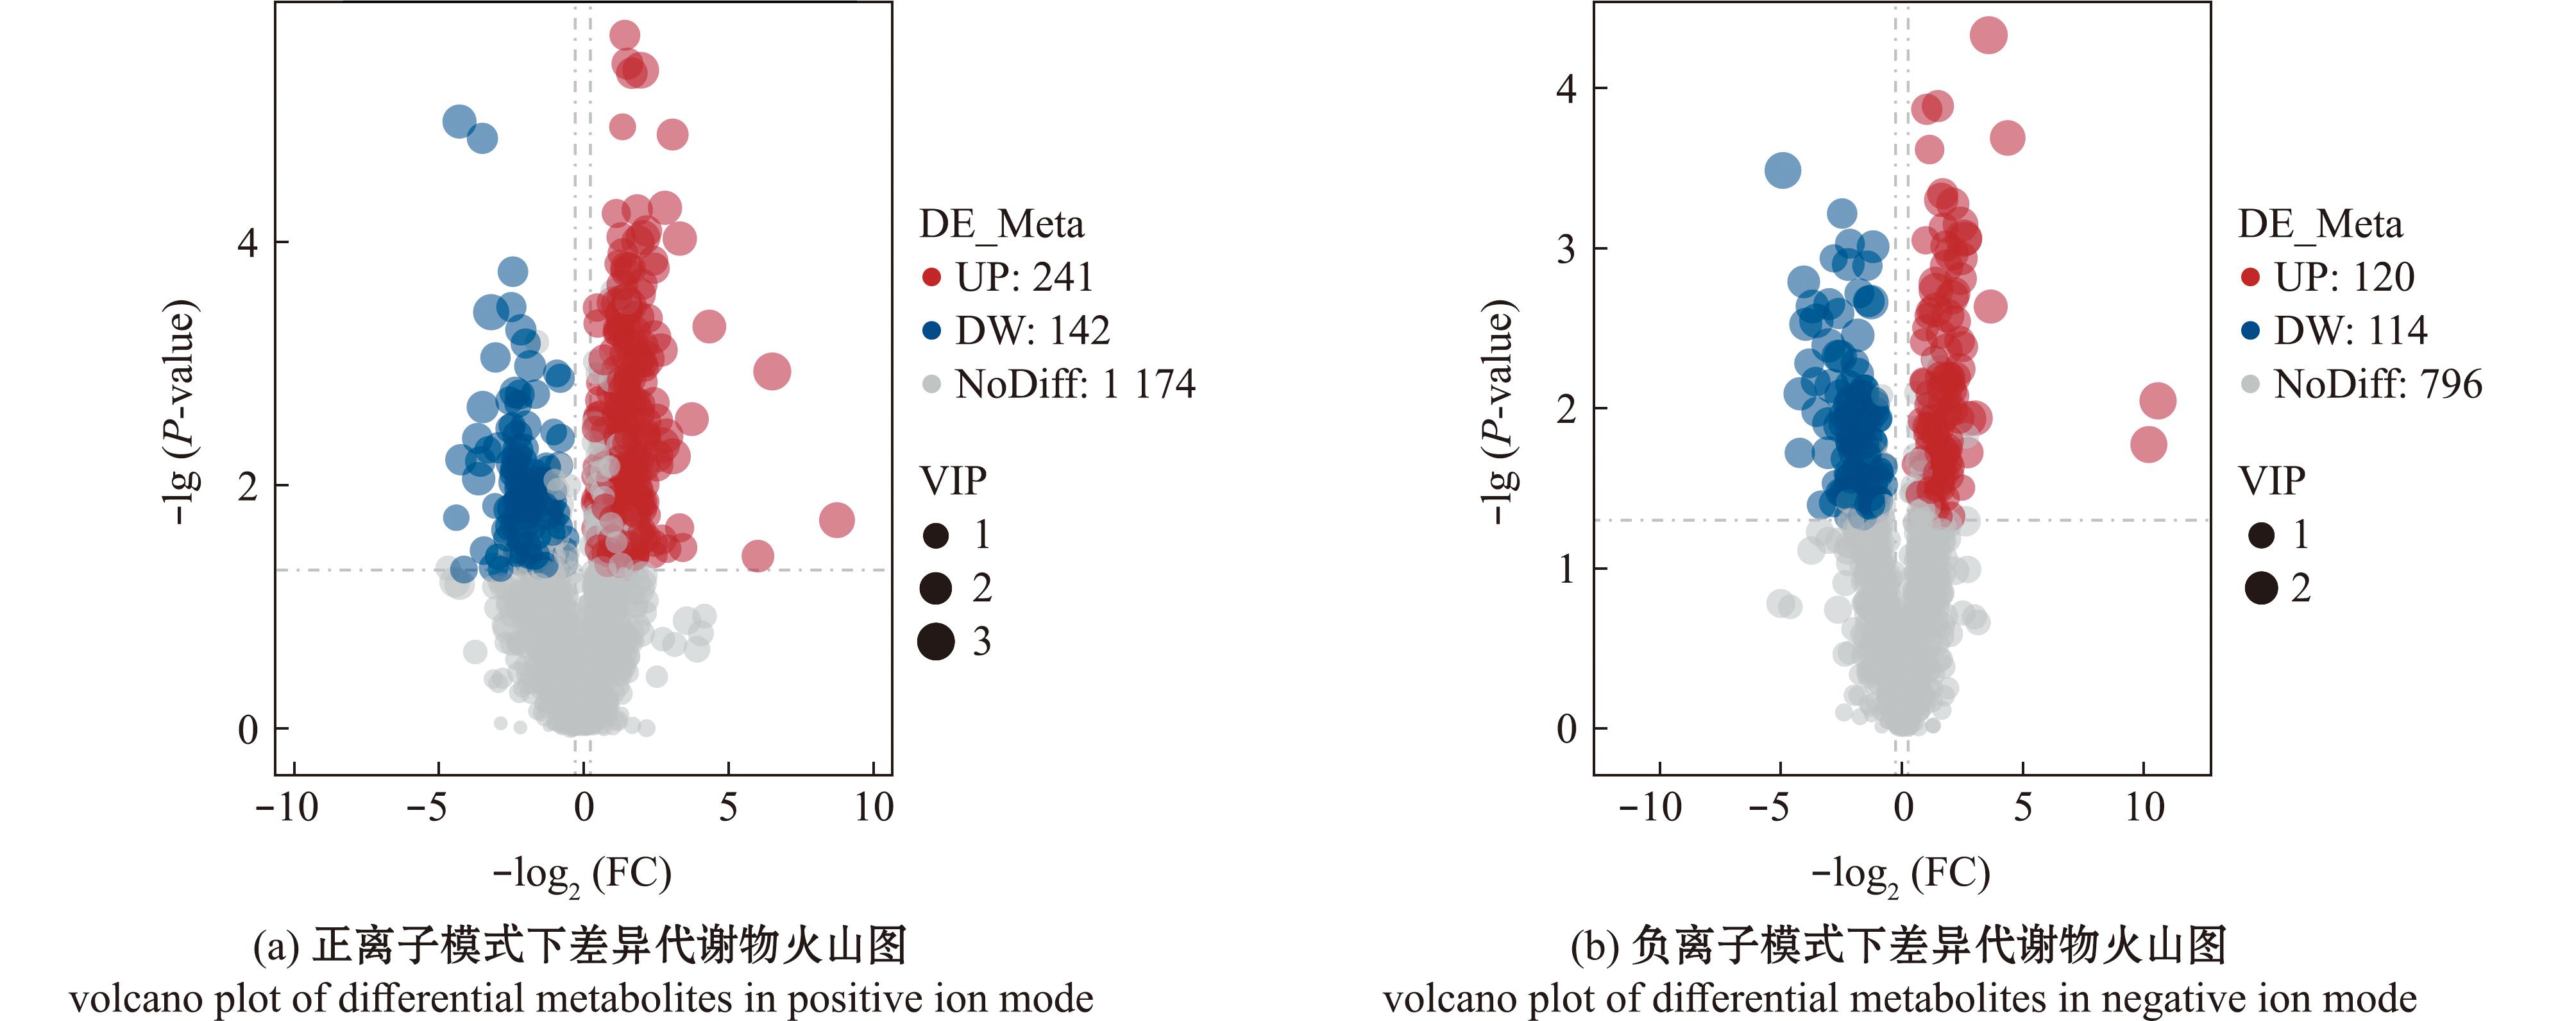
图4 青海湖裸鲤肝脏差异代谢物火山图
Fig.4 Volcano plot of differentially abundant liver metabolites of Gymnocypris przewalskii
2.5 差异代谢物的功能注释和通路分析
根据KEGG通路注释的结果进行分类,在正离子模式下,AL64 vs SAC组中的差异代谢物主要注释到氨基酸代谢通路,亚油酸、花生四烯酸、鞘脂等脂质代谢通路,蛋白质的消化和吸收、胆汁分泌等消化系统通路,以及信号分子相互作用等信号转导途径上(图5(a))。在负离子模式下,AL64 vs SAC组中的差异代谢物主要注释到氨基酸通路,蛋白质的消化和吸收等消化系统通路,脂质代谢、碳水化合物代谢等代谢通路,以及膜转运等环境信息处理途径上(图5(b))。
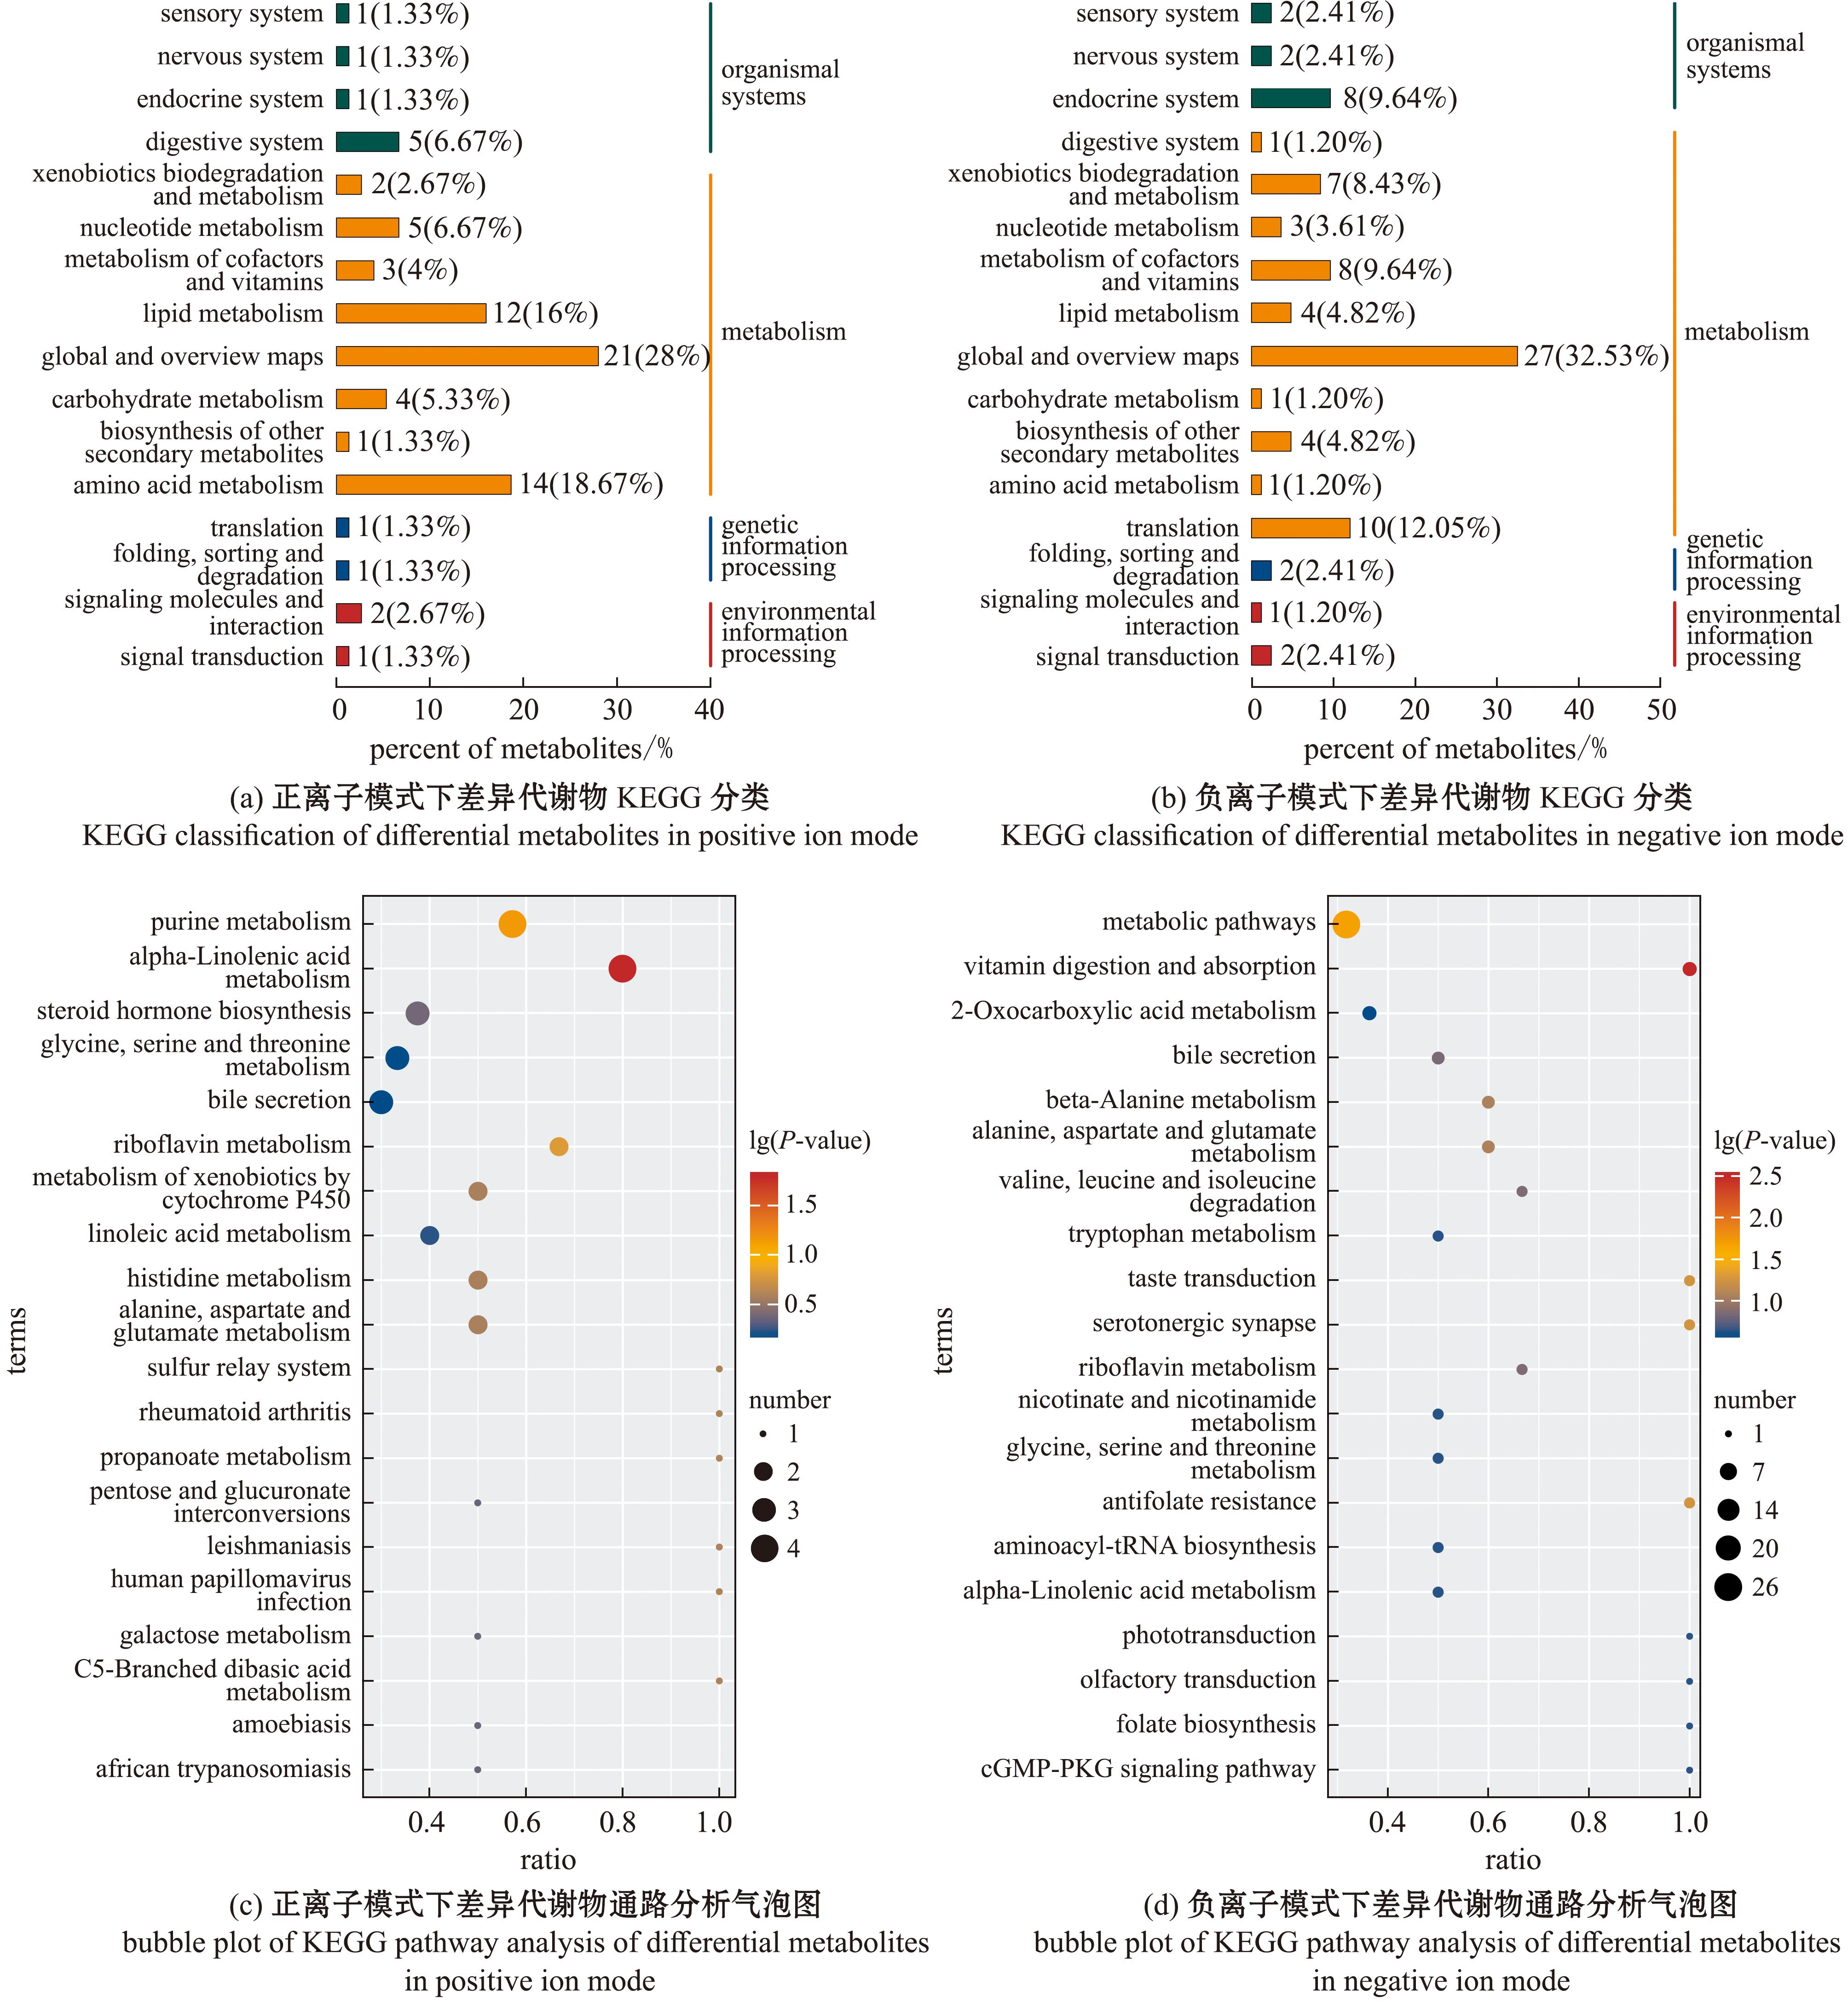
图5 青海湖裸鲤肝脏差异代谢物KEGG分类图与通路分析气泡图
Fig.5 KEGG classification diagram and pathway analysis bubble chart of differential metabolites in liver tissue of Gymnocypris przewalskii
在上述KEGG注释结果基础上,对AL64 vs SAC组差异代谢物进行KEGG富集分析,在正离子模式下鉴定出383个差异代谢物,共注释到24个信号通路上(图5(c)),在“α-亚麻酸代谢”(alpha-linolenic acid metabolism)这一通路上显著富集(P<0.05),差异代谢物包括十七碳三烯醛(Heptadecatrienal)、硬脂四烯酸(Stearidonic acid)、茉莉酸甲酯(Methyl 2-(3-oxo-2-(pent-2-en-1-yl)cyclopentyl)acetate)和α-亚麻酸(Alpha-Linolenic acid),有4种代谢物均上调,其中,十七碳三烯醛在AL64组中上调了2.2倍,硬脂四烯酸在AL64组中上调了3.5倍,硬脂四烯酸在AL64组中上调了1.8倍;在负离子模式下鉴定出234个差异代谢物,共注释到42个信号通路上(图5(d)),在“维生素的消化和吸收”(vitamin digestion and absorption)这一通路上显著富集(P<0.05),差异代谢物包括核黄素单核苷酸(flavin mononucleotide)、维生素B5(vitamin B5)、D-生物素(biotin)和黄素腺嘌呤二核苷酸(flavin adenine dinucleotide),4种代谢物均上调,其中,D-生物素在AL64组中上调了3.7倍,黄素单核苷酸在AL64组中上调了3.2倍。这些差异代谢物可能在青海湖裸鲤响应急性碱度胁迫过程中发挥着重要功能。
3 讨论
3.1 急性碱胁迫引发青海湖裸鲤肝脏代谢重编程
根据相关文献报道,青海湖裸鲤对碱性环境具有较强的耐受能力。研究表明,青海湖水体碱度通常在20~40 mmol/L间波动[19],而青海湖裸鲤在自然环境中能够适应较高的碱度变化。衣晓飞等[20]在试验中将碱度设置为64 mmol/L,观察到裸鲤在氮废物排泄及相关基因表达方面出现显著应激响应,表明该浓度已足以引发其明显的生理调节机制;高子韩等[21]在慢性碱胁迫研究中也指出,裸鲤在相近碱度条件下出现糖代谢相关应答变化。上述研究均提示,64 mmol/L这一浓度能够在试验条件下有效激发裸鲤的生理与代谢适应反应,具有较好的试验可操作性与生物学意义。因此,本试验选择64 mmol/L作为碱度胁迫浓度。
本研究中通过非靶向代谢组学证实,64 mmol/L急性碱度胁迫显著扰动了青海湖裸鲤肝脏代谢稳态。PCA与PLS-DA模型显示胁迫组(AL64)与对照组(SAC)代谢谱呈显著分离(PC1解释方差28.65%,PLS-DA模型R2Y>0.86,Q2Y<-0.89),表明代谢重编程是裸鲤应对高碱环境的核心策略。这一现象与鱼类在盐碱胁迫下的共性响应一致。刘济源[3]发现,青海湖裸鲤对碳酸盐碱度的96 h-LC50高达150.18 mmol/L,远超多数淡水鱼类,暗示其肝脏代谢具备强可塑性。赵静等[22]在盐度胁迫研究中观察到裸鲤肝脏中应激基因(Mn-SOD、Hmox1)呈现动态表达模式,与本研究中代谢物时序性变化规律相呼应。
基于非靶向代谢组学技术对青海湖裸鲤肝脏样本进行分析,在正离子(POS,1 557个)和负离子(NEG,1 030个)模式下共鉴定出2 587种代谢物。差异代谢物分析显示,急性碱度胁迫组(AL64)中上调代谢物数量显著高于下调代谢物(POS模式;241个 vs 142个;NEG模式;120个 vs 114个)。KEGG通路富集分析表明,差异代谢物在正离子模式下显著富集于α-亚麻酸代谢通路,在负离子模式下显著富集于维生素消化与吸收通路。
3.2 α-亚麻酸代谢通路的激活及其生物学意义
在正离子模式下,α-亚麻酸代谢通路显著富集(P<0.05),其中,α-亚麻酸、硬脂四烯酸和十七碳三烯醛的显著上调揭示了青海湖裸鲤独特的脂质代谢适应策略。α-亚麻酸作为必需脂肪酸,是合成EPA和DHA的关键前体物质,在机体内,α-亚麻酸通过一系列去饱和酶和延长酶的作用,依次转化为EPA和DHA,进而参与构成细胞膜磷脂,能够调节细胞膜上离子通道和转运蛋白的活性,特别是Na+/K+-ATPase和V-type ATPase等关键渗透压调节酶的活性[23]。研究表明,α-亚麻酸能够通过调节炎症因子的产生和释放,抑制促炎性细胞因子如TNF-α、IL-1β和IL-6的表达,从而平衡机体免疫反应[24]。在罗非鱼(Oreochromis niloticus)的盐碱胁迫研究中,Su等[25]通过转录组分析发现,急性高碳酸盐碱度胁迫(40~60 mmol/L)下,罗非鱼鳃、肾脏和肝脏组织中脂质代谢相关基因(涉及信号转导)、解毒和免疫相关基因显著上调,其中,α-亚麻酸代谢、亚油酸代谢和醚脂代谢三条脂质代谢通路在盐度胁迫组显著富集。这与本研究中青海湖裸鲤的α-亚麻酸代谢通路激活结果高度一致,表明α-亚麻酸代谢是鱼类应对盐碱胁迫的保守性适应机制。进一步研究显示,罗非鱼在长期盐碱胁迫(盐度16 mmol/L,碱度35 mmol/L,50 d)下,高脂饮食组相比高碳水化合物组表现出更优的生长性能和更低的肝脏体指数,且脂质代谢相关基因表达水平显著升高[26]。这提示在慢性盐碱胁迫下,通过调控脂质代谢可有效改善鱼类的耐受性。
3.3 关键脂质代谢物的功能解析
α-亚麻酸的抗炎机制不仅依赖于其代谢产物EPA和DHA作为竞争性抑制剂减少花生四烯酸来源的促炎类二十烷酸(如2系列前列腺素和4系列白三烯)的生成[27],还涉及通过激活PPAR-γ核受体途径,抑制NF-κB信号通路的活化,进而下调炎症相关基因的转录[28]。
作为EPA生物合成的优质前体,硬脂四烯酸比α-亚麻酸更有效地促进EPA的生成,能够显著提高体内长链omega-3脂肪酸水平[29]。Walker等[30]研究发现,硬脂四烯酸通过抑制NF-κB和MAP激酶信号通路发挥强效抗炎作用,能够有效调节脂多糖诱导的炎症反应。在碱性环境胁迫下,硬脂四烯酸的上调可能是青海湖裸鲤增强抗炎防御和维持代谢稳态的关键机制。
十七碳三烯醛作为一种具有生物活性的醛类化合物,展现出显著的抗炎和抗氧化双重功能。研究表明,十七碳三烯醛具有调节NF-κB信号通路的能力,可以下调促炎基因如COX-2、iNOS的表达,并能够减轻氧化应激引起的炎症反应,抗氧化功能主要通过清除自由基实现,能够有效保护细胞免受氧化损伤,改善多种氧化应激相关疾病[31]。肖黄璇等[32]在草鱼碳酸氢钠碱度胁迫研究中也发现,抗氧化防御系统的激活是鱼类应对碱胁迫的重要机制,这与本研究结果相吻合。
3.4 维生素代谢的重编程与能量稳态维持
本研究中在负离子模式下,维生素消化和吸收通路显著富集(P<0.05),D-生物素和黄素单核苷酸的显著上调反映了碱胁迫下能量代谢和基础代谢的深度重编程。本研究中D-生物素的大幅上调可能通过多种机制优化线粒体能量代谢。首先,生物素依赖性丙酮酸羧化酶(PC)催化丙酮酸转化为草酰乙酸,这是三羧酸循环(TCA循环)的关键回补反应,可维持TCA循环中间产物的充足供应,确保能量产生的持续性[33]。Jitrapakdee等[34]研究表明,PC活性的增强可显著提高线粒体氧化代谢能力,这在能量需求增加的应激状态下尤为重要。在碱胁迫条件下,D-生物素的上调可能通过优化ACC活性,实现脂肪酸合成与氧化的动态平衡,为机体提供稳定的能量来源[35]。因此,D-生物素的上调可能是机体为维持碱胁迫下的基础代谢、增强线粒体能量产生效率和保障免疫功能而做出的代偿性调节。
黄素单核苷酸(FMN)作为核黄素(维生素B2)的活性形式,是多种氧化还原酶的关键辅因子。FMN在线粒体中含量特别丰富,参与氧化磷酸化过程,是ATP合成所需质子驱动力产生的关键因子[36]。FMN通过作为线粒体电子传递链复合体Ⅰ(NADH脱氢酶)和复合体Ⅱ(琥珀酸脱氢酶)的辅基,直接参与电子传递过程[37]。在碱胁迫条件下,能量需求增加,FMN的上调可能通过增强线粒体呼吸链效率,确保高效的能量产生和细胞功能维持。此外,FMN的抗氧化特性对于保护线粒体免受氧化损伤也至关重要。一方面,FMN作为谷胱甘肽还原酶(GR)和硫氧还蛋白还原酶(TrxR)的必需辅因子,通过催化NADPH依赖性还原反应,维持谷胱甘肽(GSH)和硫氧还蛋白系统的还原状态,这两个系统是细胞内最重要的抗氧化防御网络[38]。另一方面,FMN依赖性的NADPH氧化酶在调控活性氧(ROS)信号传导中发挥重要作用,适度的ROS水平可激活抗氧化酶的表达和氧化还原敏感性转录因子(如Nrf2),启动细胞保护性应答[39]。
研究表明,急性碱度胁迫通过重塑青海湖裸鲤肝脏的代谢网络(脂质和维生素代谢通路)调控其应对环境压力的适应性机制。具体而言,上调的脂质代谢物(α-亚麻酸、硬脂四烯酸、十七碳三烯醛)主要通过增强抗炎与抗氧化功能保护肝脏,而维生素相关代谢物(D-生物素与黄素单核苷酸)则通过优化能量代谢与基础代谢过程维持细胞稳态。这种“防御增强-代谢优化”的双重策略,使青海湖裸鲤能够在极端碱性环境中维持肝脏功能的相对稳定并提升整体适应能力。未来研究可结合转录组学与蛋白质组学技术,进一步阐明上述代谢变化与基因表达调控之间的关联,从而系统解析其分子适应机制,为盐碱水域鱼类资源保护、可持续利用及耐盐碱水产新品种的选育提供理论支撑。
4 结论
1) 本研究中基于非靶向代谢组学技术,系统解析了青海湖裸鲤在64 mmol/L急性碱度胁迫下的肝脏代谢响应。结果表明,急性碱度胁迫显著改变了青海湖裸鲤肝脏的代谢轮廓。共鉴定出2 587种代谢物,其中617个差异代谢物在胁迫组与对照组间表现出显著变化,表明肝脏代谢重编程是其适应高碱环境的重要策略。
2)在正离子模式下,α-亚麻酸代谢通路被显著激活,α-亚麻酸、硬脂四烯酸和十七碳三烯醛等关键脂质代谢物协同上调。这一变化有利于增强机体的抗炎与抗氧化能力,构成碱胁迫下肝脏的“防御增强”机制。在负离子模式下,维生素消化与吸收通路显著富集,D-生物素与黄素单核苷酸(FMN)显著上调。这些变化有助于优化线粒体能量代谢、维持三羧酸循环通量及细胞氧化还原稳态,体现了“代谢优化”适应策略。
3)综上,青海湖裸鲤在急性碱度胁迫下形成了以“防御增强-代谢优化”为核心的双重代谢适应策略。本研究从代谢层面揭示了其耐受高碱环境的潜在机制,为高原鱼类逆境生理学研究提供了新的代谢证据,也为盐碱水域渔业资源保护与抗逆品种选育提供了理论依据和潜在分子标记。
[1] 赵凯,段子渊,杨公社,等.青海湖裸鲤的起源和花斑裸鲤的种群演化[J].自然科学进展,2007,17(3):320-328.ZHAO K,DUAN Z Y,YANG G S,et al.The origin of naked carp in Qinghai Lake and the population evolution of naked carp in spotted area[J].Progress in Natural Science,2007,17(3):320-328.(in Chinese)
[2] 赵凯.青海湖裸鲤与鲤、鲫、草鱼的随机扩增多态DNA分析[J].淡水渔业,2001,31(5):49-51.ZHAO K.Genetic relationship of Naked carp in Qinghai Lake,Carp,Goldfish and Grass carp by RAPD[J].Freshwater Fisheries,2001,31(5):49-51.(in Chinese)
[3] 刘济源.盐碱胁迫对青海湖裸鲤呼吸耗氧、渗透和离子调节的影响[D].上海:上海海洋大学,2012.LIU J Y.Effect of saline-alkali stress on oxygen consumption,osmoregulation and ionic regulation of Przewalski’s naked carp,Gymnocypris przewalskii[D].Shanghai:Shanghai Ocean University,2012.(in Chinese)
[4] 郭若晨,闫丽婷,罗颖,等.不同开口饵料对青海湖裸鲤水花鱼苗生长影响研究[J].科学养鱼,2024(9):76-77.GUO R C,YAN L T,LUO Y,et al.Effects of different open diets on the growth of naked carp fry in Qinghai Lake[J].Scientific Fish Farming,2024(9):76-77.(in Chinese)
[5] 党云飞,徐伟,耿龙武,等.盐碱和pH对鱼类生长和发育的影响[J].水产学杂志,2012,25(2):62-64.DANG Y F,XU W,GENG L W,et al.A review of effects of saline-alkalinity and pH on growth and development in fish[J].Chinese Journal of Fisheries,2012,25(2):62-64.(in Chinese)
[6] 杨建.盐碱胁迫下5种鱼类的耐受性和免疫应激反应[D].上海:上海海洋大学,2014.YANG J.Tolerance and immune stress response of five fish species under saline-alkali stress[D].Shanghai:Shanghai Ocean University,2014.(in Chinese)
[7] 陈克忠,李雪梅,祁洪芳,等.青海湖裸鲤耐盐碱生理机制研究进展[J].淡水渔业,2020,50(2);23-31.CHEN K Z,LI X M,QI H F,et al.Research progress on physiological mechanisms of saline-alkali tolerance in Gymnocypris przewalskii[J].Freshwater Fisheries,2020,50(2):23-31.(in Chinese)
[8] 张明华,李春光,赵永锋,等.盐碱胁迫下青海湖裸鲤肝脏抗氧化酶活性变化[J].中国水产科学,2021,28(5); 890-899.ZHANG M H,LI C G,ZHAO Y F,et al.Changes in hepatic antioxidant enzyme activities of Gymnocypris przewalskii under saline-alkaline stress[J].Journal of Fishery Sciences of China,2021,28(5):890-899.(in Chinese)
[9] 史建全,田照辉,曹文宣.青海湖裸鲤适应高原盐湖环境的分子机制研究[J].科学通报,2018,63(15); 1456-1465.SHI J Q,TIAN Z H,CAO W X.Molecular mechanisms of Gymnocypris przewalskii adaptation to the plateau saline lake environment[J].Chinese Science Bulletin,2018,63(15):1456-1465.(in Chinese)
[10] 中共中央,国务院.中共中央国务院关于做好2023年全面推进乡村振兴重点工作的意见[N].人民日报,2023-02-14(001).Central Committee of the Communist Party of China,State Council.Opinions of the Central Committee of the Communist Party of China and the State Council on comprehensively promoting the key work of rural revitalization in 2023[N].People’s Daily,2023-02-14(001).(in Chinese)
[11] 农业农村部渔业渔政管理局.全国盐碱地渔业开发利用规划(2021-2030年)[R].北京:农业农村部,2021.Bureau of Fisheries,Ministry of Agriculture and Rural Affairs.National plan for fishery development and utilization of saline-alkaline land (2021-2030)[R].Beijing:Ministry of Agriculture and Rural Affairs,2021.(in Chinese)
[12] 李建光,王志勇,陈超.盐碱胁迫对鱼类渗透压调节的影响机制研究进展[J].海洋渔业,2020,42(4);445-456.LI J G,WANG Z Y,CHEN C.Research progress on the mechanism of saline-alkaline stress on fish osmoregulation[J].Marine Fisheries,2020,42(4):445-456.(in Chinese)
[13] 张晓东,刘永士,马恒甲,等.盐碱环境下鱼类离子调节和酸碱平衡机制[J].中国水产科学,2019,26(6);1123-1134.ZHANG X D,LIU Y S,MA H J,et al.Mechanisms of ion regulation and acid-base balance in fish under saline-alkaline environment[J].Journal of Fishery Sciences of China,2019,26(6):1123-1134.(in Chinese)
[14] 刘济源,田照辉,史建全,等.青海湖裸鲤幼鱼对急性盐度和碳酸盐碱度胁迫的耐受性研究[J].水产学报,2018,42(11);1678-1687.LIU J Y,TIAN Z H,SHI J Q,et al.Tolerance of juvenile Gymnocypris przewalskii to acute salinity and carbonate alkalinity stress[J].Journal of Fisheries of China,2018,42(11):1678-1687.(in Chinese)
[15] 李明华,张志强,王小丽.鱼类肝脏代谢功能及其调节机制研究进展[J].水产学报,2018,42(3);456-467.LI M H,ZHANG Z Q,WANG X L.Research progress on liver metabolic functions and regulatory mechanisms in fish[J].Journal of Fisheries of China,2018,42(3):456-467.(in Chinese)
[16] 杨方,魏杰,任永丽.高碱度胁迫对瓦氏雅罗鱼肝脏抗氧化状态及细胞结构的影响[J].水生生物学报,2020,44(3);567-575.YANG F,WEI J,REN Y L.Effects of high alkalinity stress on hepatic antioxidant status and cellular structure in Amur ide (Leuciscus waleckii)[J].Acta Hydrobiologica Sinica,2020,44(3):567-575.(in Chinese)
[17] 侯诒然,胡斌,李学军,等.碳酸盐碱度胁迫对吉富罗非鱼幼鱼肝脏糖代谢的影响[J].渔业科学进展,2021,42(6);148-157.HOU Y R,HU B,LI X J,et al.Effects of carbonate alkalinity stress on hepatic glucose metabolism in juvenile GIFT tilapia (Oreochromis niloticus)[J].Progress in Fishery Sciences,2021,42(6):148-157.(in Chinese)
[18] 赵帅兵,史建全,祁洪芳,等.急性碱胁迫对青海湖裸鲤肝脏应激基因表达及血浆离子水平的影响[J].水产学报,2023,47(2);45-56.ZHAO S B,SHI J Q,QI H F,et al.Effects of acute alkalinity stress on hepatic stress-related gene expression and plasma ion levels in Gymnocypris przewalskii[J].Journal of Fisheries of China,2023,47(2):45-56.(in Chinese)
[19] 刘智琦,潘保柱,韩谞,等.青藏高原湖泊水环境特征及水质评价[J].环境科学,2022,43(11):5073-5083.LIU Z Q,PAN B Z,HAN X,et al.Water environmental characteristics and water quality assessment of lakes in Tibetan Plateau[J].Environmental Science,2022,43(11):5073-5083.(in Chinese)
[20] 衣晓飞,来琦芳,史建全,等.高碱环境下青海湖裸鲤氮废物排泄及相关基因的表达规律[J].中国水产科学,2017,24(4):681-689.YI X F,LAI Q F,SHI J Q,et al.Nitrogenous waste excretion and gene expression of nitrogen trans-porter in Gymnocypris przewalskii in high alkaline environment[J].Journal of Fishery Sciences of China,2017,24(4):681-689.(in Chinese)
[21] 高子韩,卫唯,岳苗,等.慢性碱胁迫下青海湖裸鲤的糖代谢相关应答[J].大连海洋大学学报,2025,40(1):65-75.GAO Z H,WEI W,YUE M,et al.Glucose metabolism and relevant response of Gymnocypris przewalskii exposed to chronic alkalinity stress[J].Journal of Dalian Fisheries University,2025,40(1):65-75.(in Chinese)
[22] 赵静,李长忠,王蓉,等.盐度胁迫后青海湖裸鲤Grp78及其相关基因的应答表达[J].中国水产科学,2024,31(1):70-81.ZHAO J,LI C Z,WANG R,et al.Response expression of Grp78 and its related genes in Gymnocypris przewalskii after salinity stress[J].Journal of Fishery Sciences of China,2024,31(1):70-81.(in Chinese)
[23] HULBERT A J,TURNER N,STORLIEN L H,et al.Dietary fats and membrane function:implications for metabolism and disease[J].Biological Reviews of the Cambridge Philosophical Society,2005,80(1):155-169.
[24] 王海燕,李春涛,赵金良.α-亚麻酸的抗炎作用及其分子机制研究进展[J].中国油脂,2021,46(3);67-72.WANG H Y,LI C T,ZHAO J L.Research progress on the anti-inflammatory effects of α-linolenic acid and its molecular mechanisms[J].China Oils and Fats,2021,46(3):67-72.(in Chinese)
[25] SU H H,MA D M,ZHU H P,et al.Transcriptomic response to three osmotic stresses in gills of hybrid tilapia (Oreochromis mossambicus female × O.Urolepis hornorum male)[J].BMC Genomics,2020,21(1):110.
[26] LIU W,LI E C,XU C,et al.Effects of diets with different carbohydrate to lipid ratios on the growth performance,ion transport,and carbohydrate,lipid and ammonia metabolism of Nile tilapia (Oreochromis niloticus) under long-term saline-alkali stress[J].Aquaculture Nutrition,2024,2024(1):9388755.
[27] WADA M,DELONG C J,HONG Y H,et al.Enzymes and receptors of prostaglandin pathways with arachidonic acid-derived versus eicosapentaenoic acid-derived substrates and products[J].Journal of Biological Chemistry,2007,282(31):22254-22266.
[28] KUMAR A,TAKADA Y,BORIEK A M,et al.Nuclear factor-κB:its role in health and disease[J].Journal of Molecular Medicine,2004,82(7):434-448.
[29] JAMES M J,URSIN V M,CLELAND L G.Metabolism of stearidonic acid in human subjects:comparison with the metabolism of other n-3 fatty acids[J].The American Journal of Clinical Nutrition,2003,77(5):1140-1145.
[30] WALKER C G,JEBB S A,CALDER P C.Stearidonic acid as a supplemental source of ω-3 polyunsaturated fatty acids to enhance status for improved human health[J].Nutrition,2013,29(2):363-369.
[31] 陈晓明,张丽华,刘建国.十七碳三烯醛的生物活性及其在氧化应激中的作用[J].生物化学与生物物理进展,2022,49(8);1456-1467.CHEN X M,ZHANG L H,LIU J G.Biological activity of heptadecatrienal and its role in oxidative stress[J].Progress in Biochemistry and Biophysics,2022,49(8):1456-1467.(in Chinese)
[32] 肖黄璇,刘天奇,鲁翠云,等.急性碳酸氢钠碱度胁迫对草鱼存活及相关酶活性的影响[J].广东海洋大学学报,2024,44(6):1-9.XIAO H X,LIU T Q,LU C Y,et al.Effects of acute sodium bicarbonate carbonate alkalinity stress on survival and related enzyme activity of grass carp[J].Journal of Guangdong Ocean University,2024,44(6):1-9.(in Chinese)
[33] RODR GUEZ-ZAVALA J S,ALLALI-HASSANI A,WEINER H.Characterization of E.coli tetrameric aldehyde dehydrogenases with atypical properties compared to other aldehyde dehydrogenases[J].Protein Science,2006,15(6):1387-1396.
[34] JITRAPAKDEE S,ST MAURICE M,RAYMENT I,et al.Structure,mechanism and regulation of pyruvate carboxylase[J].The Biochemical Journal,2008,413(3):369-387.
[35] WAKIL S J,STOOPS J K,JOSHI V C.Fatty acid synthesis and its regulation[J].Annual Review of Biochemistry,1983,52:537-579.
[36] 刘晓燕,王志刚,陈明.核黄素辅因子在线粒体能量代谢中的核心作用[J].生理科学进展,2019,46(8);756-767.LIU X Y,WANG Z G,CHEN M.The central role of riboflavin cofactors in mitochondrial energy metabolism[J].Progress in Physiological Sciences,2019,46(8),756-767.
[37] ASHOORI M,SAEDISOMEOLIA A.Riboflavin (vitamin B2) and oxidative stress:a review[J].The British Journal of Nutrition,2014,111(11):1985-1991.
[38] COUTO N,WOOD J,BARBER J.The role of glutathione reductase and related enzymes on cellular redox homoeostasis network[J].Free Radical Biology& Medicine,2016,95:27-42.
[39] FORMAN H J,MAIORINO M,URSINI F.Signaling functions of reactive oxygen species[J].Biochemistry,2010,49(5):835-842.