由鲤疱疹病毒Ⅱ型(Cyprinid herpesvirus 2,CyHV-2)感染引起的鲫(Carassius auratus)造血器官坏死病是一种主要感染鲫、金鱼及其变种的病毒病[1]。该病临床表现为体表广泛充血、鳃丝水肿坏死等,具有发病快、死亡率高的特点,严重威胁中国鲫养殖业的健康发展[2-3]。CyHV-2隶属于疱疹病毒目疱疹病毒科鲤疱疹病毒属,其基因组为线性双链DNA,全长约290 304 bp,可编码154个开放阅读框[4-5]。其中ORF4编码了一种含病毒编码肿瘤坏死因子受体(vTNFR)结构域的非结构蛋白。ORF4蛋白的胞外配体结合域与宿主TNFR超家族的结构相似,被认为具有调控病毒增殖的作用[6]。Lu等[7]从CyHV-2中鉴定并表征了ORF4蛋白,发现ORF4蛋白可调控宿主的细胞凋亡,进而介导病毒实现免疫逃逸。然而,由于缺乏有效的研究工具,ORF4蛋白的具体功能及其作用机制仍未明确[8]。
单克隆抗体是由单个B淋巴细胞转化而来的浆细胞分泌的、针对一种特异性抗原决定簇的抗体,因其具有高特异性和靶向性的特点,是研究病毒蛋白功能与机制的重要工具[9-10]。目前,国内外学者已针对CyHV-2的编码蛋白开展了多个单抗制备的相关研究,为深入解析该病毒蛋白的功能与分子机制提供了重要工具[11]。Guo等[12]制备了针对CyHV-2 ORF66蛋白的单克隆抗体,成功从感染异育银鲫的脾脏组织中检测到病毒粒子。Wu等[13]制备了针对ORF25蛋白的单克隆抗体,证实该单抗具有体外中和病毒的特性,可用于CyHV-2的免疫学诊断和防控。目前,尽管针对CyHV-2 ORF4蛋白已开展了多抗的研究工作,但尚无针对ORF4蛋白的特异性单克隆抗体研究报道[14]。本文以CyHV-2感染异育银鲫的脾脏DNA为模板,通过PCR扩增ORF4基因,在大肠杆菌表达系统中进行ORF4蛋白的重组表达并纯化,进一步采用杂交瘤法制备抗ORF4蛋白的单克隆抗体,通过间接ELISA、Western blot和免疫荧光进行筛选和鉴定,并研究了ORF4蛋白在病毒感染过程中的分布及表达情况,以期为深入研究ORF4蛋白的功能及其机制提供工具。
1 材料与方法
1.1 材料
Ezup柱式动物基因组DNA抽提试剂盒、SDS-PAGE凝胶制备试剂盒、His亲和层析纯化柱购自生工生物工程(上海)股份有限公司,琼脂糖凝胶回收试剂盒购自北京索宝生物科技有限公司;Taq PCR Master Mix、EcoRⅠ、SalⅠ限制性内切酶、T4DNA连接酶购自宝生物工程(大连)有限公司,IPTG、弗氏完全佐剂、弗氏不完全佐剂购自Sigma公司,His标签单克隆抗体、FITC标记羊抗鼠IgG抗体、HRP标记羊抗鼠IgG抗体购自Abcam公司,大肠杆菌BL21(DE3)感受态细胞、pET-28a原核表达载体、SP2/0骨髓瘤细胞株由本实验室保存,其他化学试剂均为分析纯,购自国药集团化学试剂有限公司。
1.2 方法
1.2.1 ORF4基因的PCR扩增 选取Ezup柱式动物基因组DNA抽提试剂盒提取CyHV-2感染异育银鲫脾脏组织的基因组DNA,参照GenBank中CyHV-2 ORF4基因的碱基序列(登录号:KT387800.1)设计引物(上游CCGGAATTCCTGTTCTCCAGCGTCTC;下游GCGTCGACTGATGGAGTGGG TGCTG)。PCR反应体系(25 μL):模板DNA 1 μL,上、下游引物(10 μmol/L)各1 μL,2×Taq PCR Master Mix 12.5 μL,ddH2O 9.5 μL。反应参数设置为94 ℃下预变性5 min;94 ℃下变性1 min、54 ℃下退火1 min、72 ℃下延伸1 min,共进行35个循环;最后在72 ℃下再延伸10 min。经10 g/L琼脂糖凝胶电泳检测扩增产物后,采用凝胶回收试剂盒纯化回收目标片段。
1.2.2 重组质粒构建与鉴定 取纯化的ORF4基因片段与pET-28a载体,分别采用EcoR Ⅰ和Sal Ⅰ进行双酶切处理,37 ℃条件下孵育3 h;酶切产物经凝胶回收纯化后,加入T4 DNA连接酶并置于16 ℃金属浴中连接过夜。将连接产物转化至大肠杆菌DH5α感受态细胞,涂布于含50 μg/mL卡那霉素的LB固体培养基,37 ℃恒温培养 12~16 h。挑取单菌落接种至LB培养基中培养,提取重组质粒后通过双酶切方法进行鉴定,并将阳性克隆物送至生工生物工程(上海)股份有限公司测序,测序验证正确的重组质粒被命名为pET28a-ORF4。
1.2.3 ORF4蛋白的原核表达与纯化 将重组质粒pET28a-ORF4转化至大肠杆菌BL21 (DE3)感受态细胞,挑取阳性单菌落接种于50 μg/mL卡那霉素的LB液体培养基,37 ℃下以200 r/min 振荡培养至OD600 nm值达到0.6~0.8,加入IPTG使其终浓度为1 mmol/L,37 ℃条件下诱导表达5 h。以8 000 r/min离心10 min后收集菌体,用PBS缓冲液重悬后进行超声波破碎,12 000 r/min下离心30 min收集裂解上清液与沉淀,通过SDS-PAGE电泳分析重组ORF4蛋白的表达形式。参考杜国玉等[15]的方法,将表达产物超声破碎、洗涤溶解后,经尿素梯度透析复性,再通过亲和层析纯化目的蛋白,并用Western blot进行鉴定,大量诱导表达后离心收集菌体,经尿素变性与洗涤,采用His亲和层析柱纯化重组蛋白,经12% SDS-PAGE电泳检测产物纯度。一抗采用抗His单克隆抗体,二抗选用羊抗鼠IgG抗体,参考赵东岳等[16]的方法进行纯化产物的Western blot鉴定。
1.2.4 抗ORF4单克隆抗体的制备 以纯化的ORF4融合蛋白作为免疫原,免疫6周龄BALB/c小鼠。于末次免疫结束后第3天无菌摘取小鼠脾脏组织,将其与对数生长期的SP2/0骨髓瘤细胞按5∶1的比例混合,继而采用PEG介导法进行细胞融合。将融合后的细胞悬液接种于含HAT选择性培养基的96孔细胞培养板,置于37 ℃、5% CO2的恒温培养箱中培养。
1.2.5 抗ORF4单抗的效价分析 采用间接ELISA法测定抗ORF4单抗的效价,将ORF4融合蛋白包被酶标板,加入系列稀释(1∶2 000、1∶4 000、1∶8 000、1∶16 000、1∶32 000、1∶64 000、1∶128 000)的杂交瘤细胞培养上清,同时设置PBS空白对照,按照常规ELISA操作测定OD405 nm值,以P/N≥2.1对应的最高稀释倍数为抗体效价。
1.2.6 间接免疫荧光 将金鱼鳍条细胞(RyuF细胞)接种至铺有细胞爬片的6孔板,待细胞生长至70%汇合度时以MOI=1的浓度接种CyHV-2,感染48 h后获得CyHV-2感染的细胞爬片。经4%多聚甲醛固定30 min,0.1%TritonX-100通透15 min,5%脱脂奶封闭1 h。加入单抗1A6、6B5细胞培养上清液(1∶100)作为一抗,于37 ℃条件下孵育1 h,用PBS缓冲液洗涤3次;加入FITC标记羊抗鼠IgG抗体(1∶500),37 ℃孵育1 h,PBS 洗涤后,采用DAPI对细胞核进行5 min 的染色处理,荧光显微镜下观察荧光信号分布。
1.2.7 ORF4蛋白在感染鱼主要组织中的分布 将CyHV-2人工感染异育银鲫,感染7 d后取其肝、脾、肾、心脏等组织,置于OCT包埋剂中速冻后制作冰冻切片。经4%多聚甲醛固定、0.1%TritonX-100通透、5%脱脂奶封闭后,以单抗1A6培养上清(1∶100稀释)作为一抗,FITC标记羊抗鼠IgG为二抗,间接IFAT法观察CyHV-2感染鱼主要组织中ORF4蛋白的表达情况。
1.2.8 ORF4蛋白在感染鱼中的表达动态 在CyHV-2感染后第12、24、48、72、96 h的异育银鲫脾脏组织,按1∶8(w/v)加入含1×蛋白酶抑制剂的RIPA裂解液,冰浴、匀浆后超声破碎。4 ℃条件下,以12 000 g离心20 min,取上清。采用BCA蛋白定量试剂盒测定浓度后,通过ELISA 法测定其中ORF4蛋白的表达动态。具体方法如下:将提取的总蛋白用碳酸盐包被液(pH 9.6)调整至 10 μg/mL后,包被于96孔酶标板(100 μL/孔)。4 ℃过夜后用5% BSA封闭1 h,加入抗ORF4单抗后37 ℃孵育1 h,洗涤后加入HRP标记的羊抗小鼠IgG抗体,37 ℃孵育45 min,以TMB为底物避光显色,2 mol/L H2SO4终止反应,在OD450 nm处测定吸光度,计算其P/N值。
1.3 数据处理
试验数据以平均值±标准差(mean±S.D.)表示。采用SPSS 24.0软件对CyHV-2感染后ORF4蛋白的动态表达水平进行统计分析,运用单因素方差分析(one-way ANOVA)比较不同组间的差异,并采用Tukey HSD法进行组间多重比较,显著性差异设为0.05。
2 结果与分析
2.1 重组表达质粒的构建
以CyHV-2感染异育银鲫的脾脏DNA为模板,采用特异性引物进行PCR扩增后,经10 g/L琼脂糖凝胶电泳检测,获得一条清晰的特异性条带,其大小约为1 005 bp,与预期的片段长度一致,且无非特异性条带,表明PCR扩增效果良好。进一步将纯化后的PCR产物与pET-28a载体进行双酶切。如图1所示,酶切产物在约1 005 bp处出现明显的条带,与预期分子量大小一致,表明重组表达质粒pET28a-ORF4构建成功(图1)。
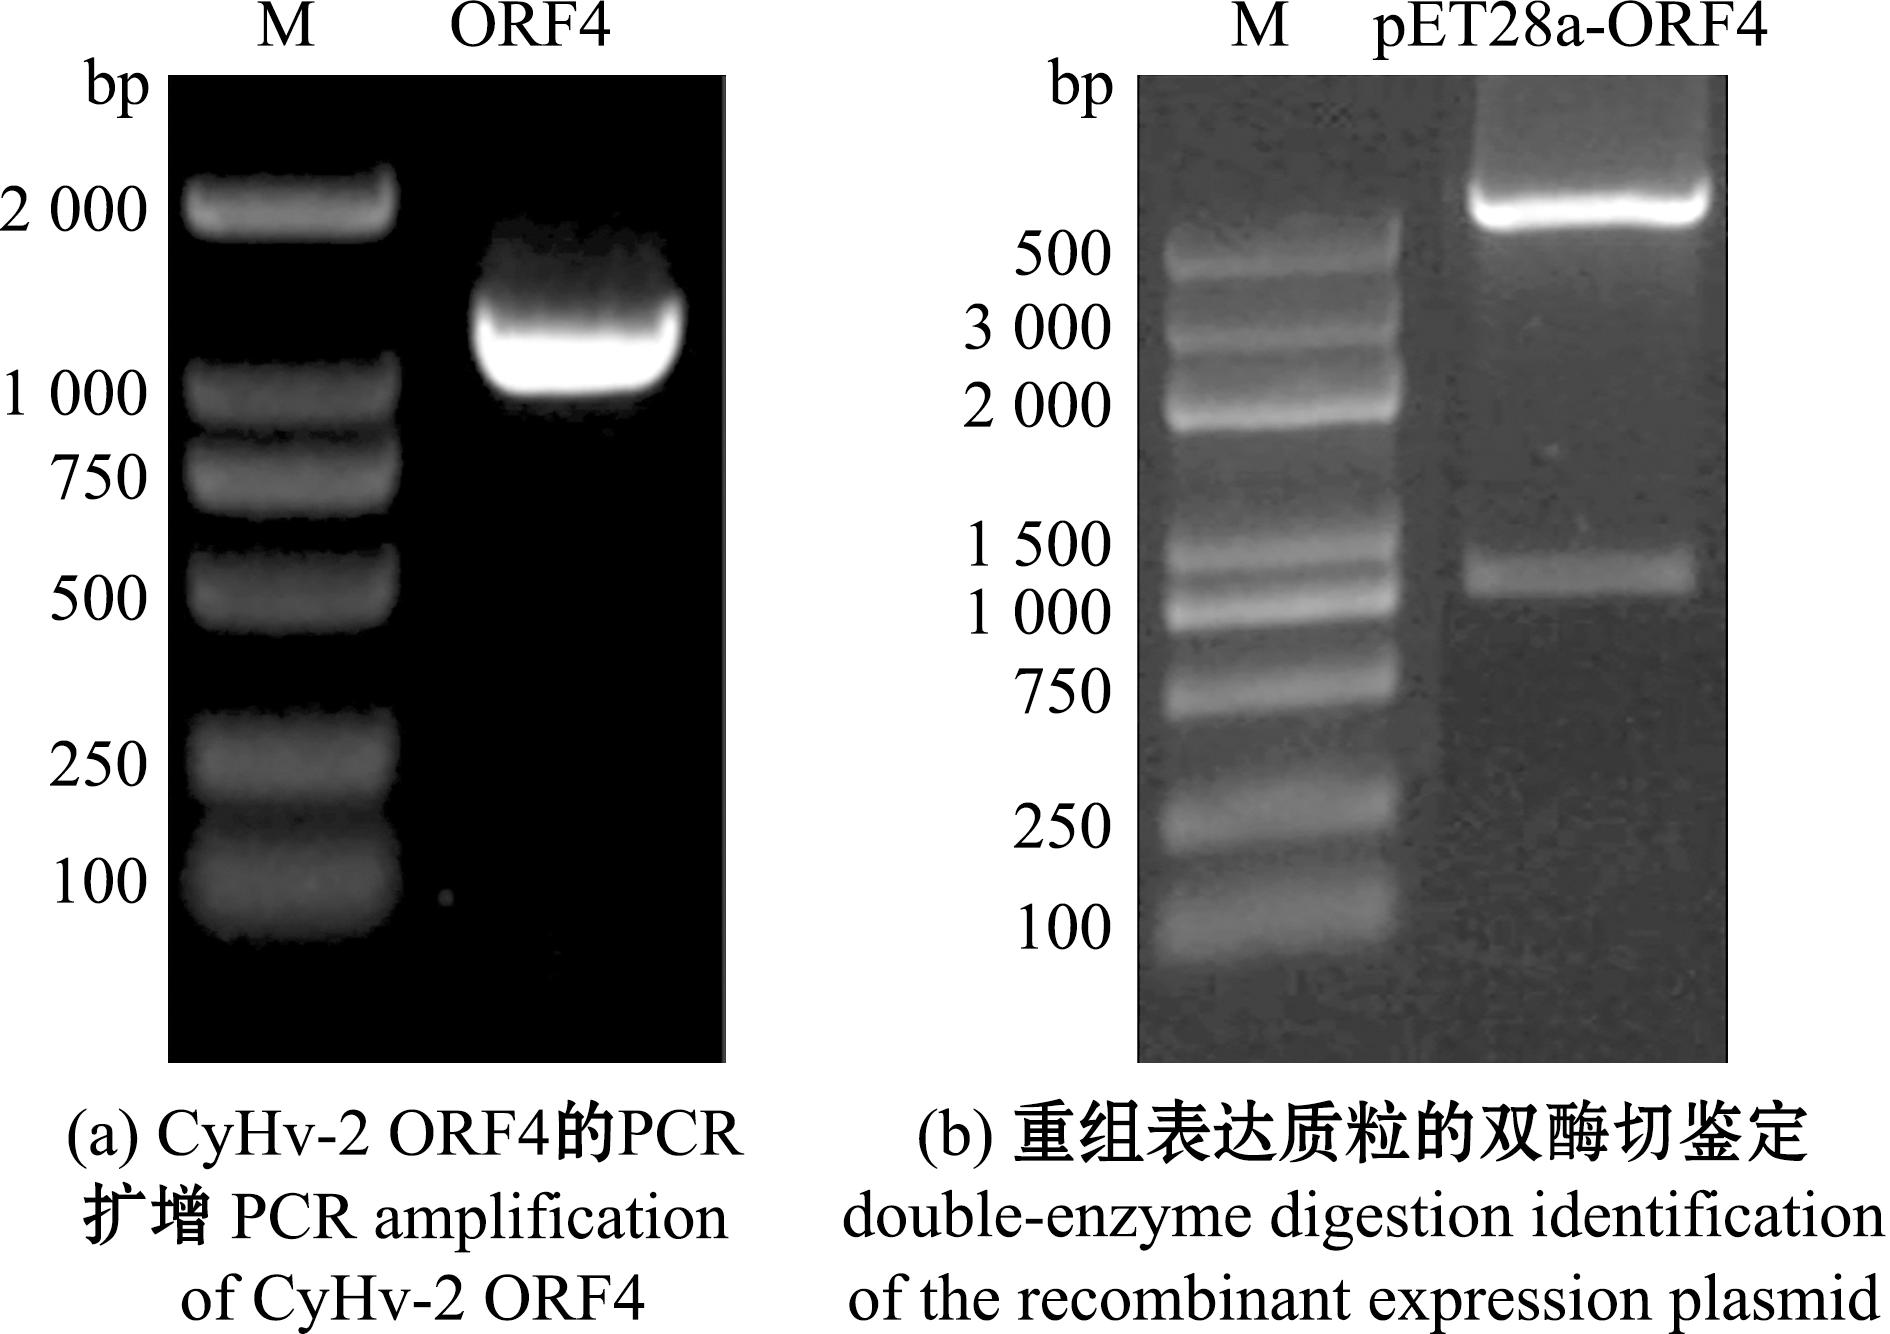
图1 重组表达质粒pET28a-ORF4的构建
Fig.1 Construction of the recombinant expression plasmid pET28a-ORF4
2.2 ORF4蛋白在大肠杆菌表达系统中的表达与鉴定
将构建成功的重组质粒pET28a-ORF4转化至大肠杆菌BL21(DE3)感受态细胞,经IPTG诱导表达后,收集菌液进行SDS-PAGE电泳分析。从图2可见,经IPTG诱导后,在相对分子质量约45 000处出现一条特异性蛋白条带,与预期分子量的大小一致,而未诱导组无该特异性条带,表明ORF4融合蛋白在大肠杆菌中成功表达。重组ORF4蛋白主要存在于沉淀中,而上清液中含量较少,表明重组ORF4蛋白以包涵体形式存在。采用His亲和层析柱对表达的融合蛋白进行纯化,经SDS-PAGE电泳验证,纯化后获得单一清晰的目的蛋白条带,无非特异性杂带,纯度达90%以上,满足后续试验要求。Western blot鉴定结果显示,纯化的融合蛋白可与抗His单抗发生特异性结合,在约45 000处出现明显的阳性杂交条带,进一步证实所纯化的蛋白为ORF4融合蛋白。
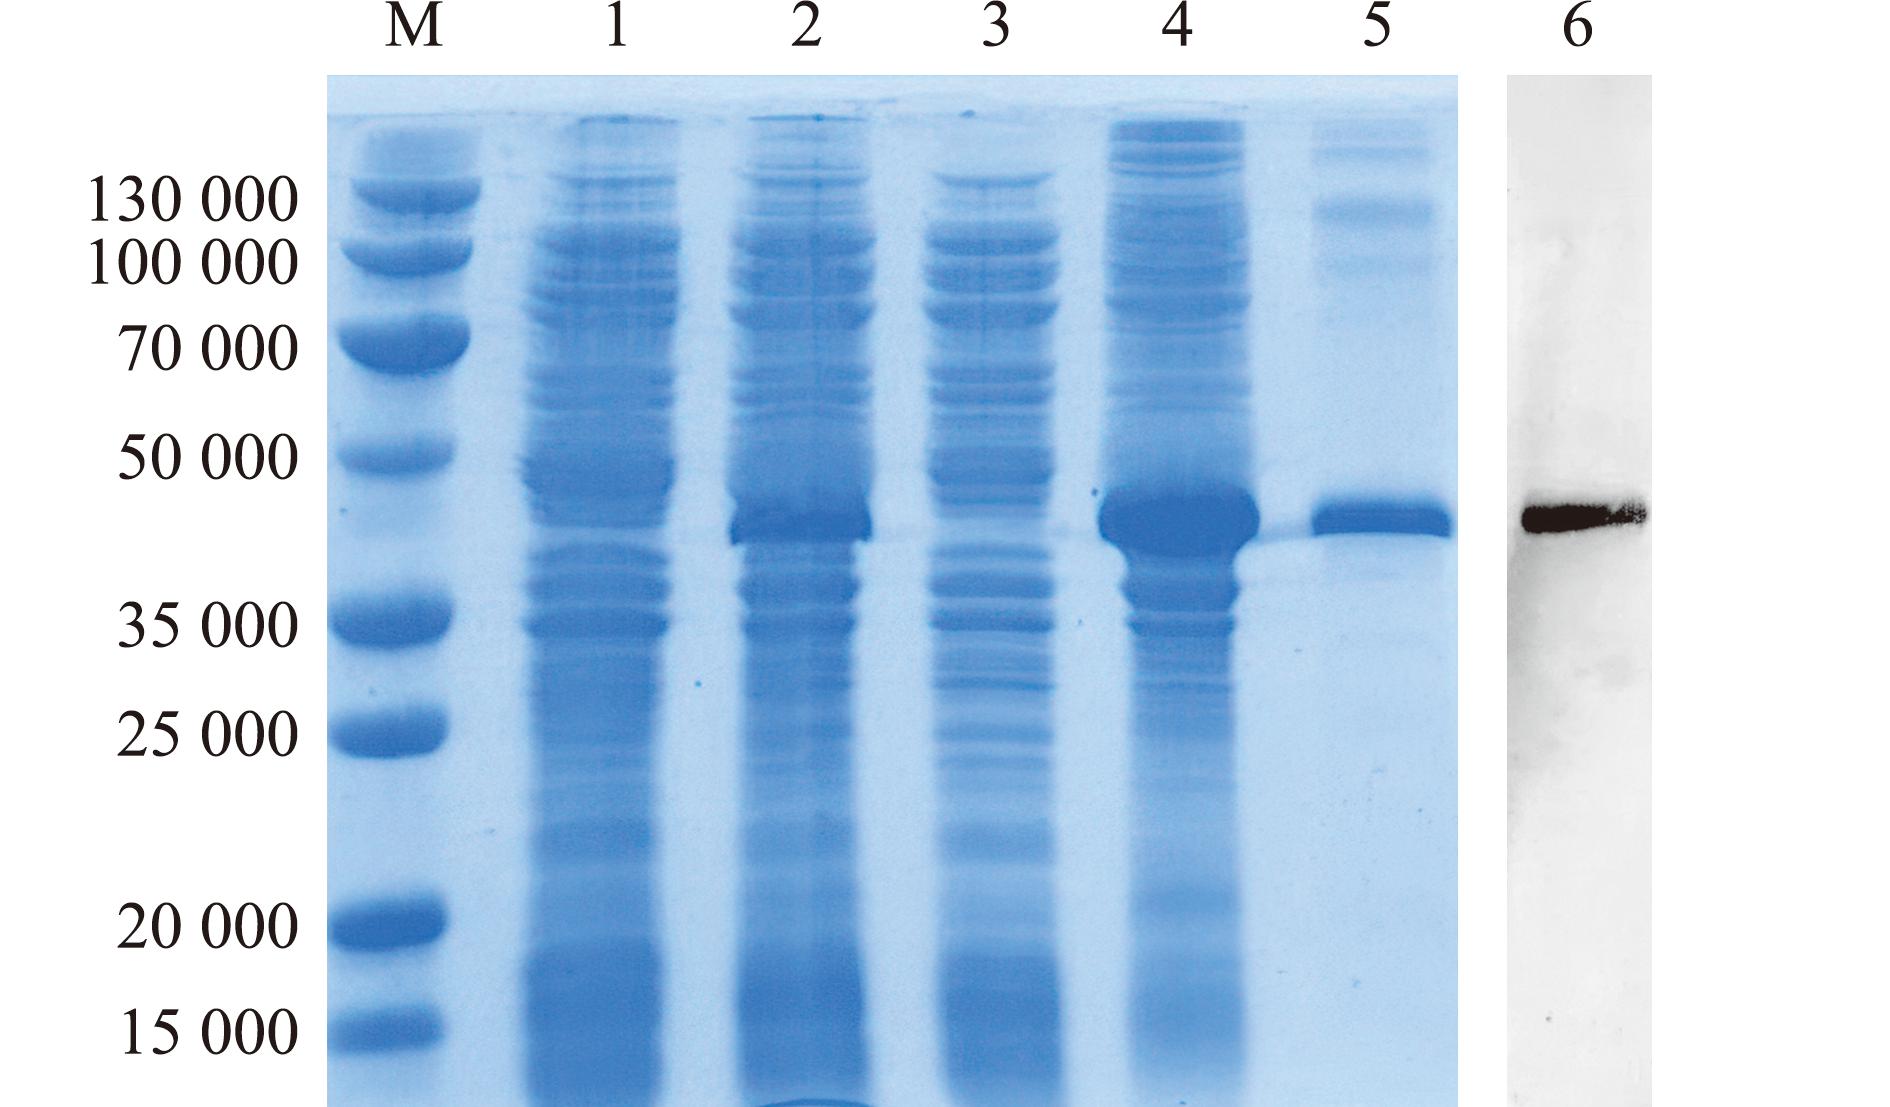
M—标准分子量;1—未诱导全菌;2—诱导全菌;3—诱导菌的裂解上清;4—诱导菌的裂解沉淀;5—纯化蛋白;6—免疫印记.
M—marker;1—uninduced whole bacterial cells;2—induced whole bacterial cells;3—lysate supernatant of induced bacterial cells;4—lysed precipitate of induced bacteria;5—purified protein;6—western blot.
图2 ORF4蛋白在大肠杆菌表达系统中的表达与鉴定
Fig.2 Expression and identification of ORF4 protein in Escherichia expression system
2.3 抗ORF4单抗的制备及筛选
以纯化的ORF4融合蛋白为免疫原免疫BALB/c小鼠,取免疫后小鼠脾脏淋巴细胞与SP2/0骨髓瘤细胞进行细胞融合,经HAT培养基选择性培养后,3~4 d开始形成小集落,7 d时明显可见细胞团(图3(a))。采用间接ELISA法对杂交瘤细胞培养上清进行筛选,结果显示,共筛选获得4株能稳定分泌抗ORF4蛋白单抗的杂交瘤细胞株,其ELISA检测P/N值均满足阳性判定要求,其中单抗1A6的P/N值最高,表明其抗体分泌水平最优(图3(b))。进一步通过ELISA测定了杂交瘤1A6细胞株的抗体效价,结果表明,其体外分泌抗体的效价可达1∶64 000,证实杂交瘤细胞株1A6能稳定分泌高活性特异性抗体(表1)。
表1 单抗1A6的效价分析
Tab.1 Titer analysis of mAb 1A6
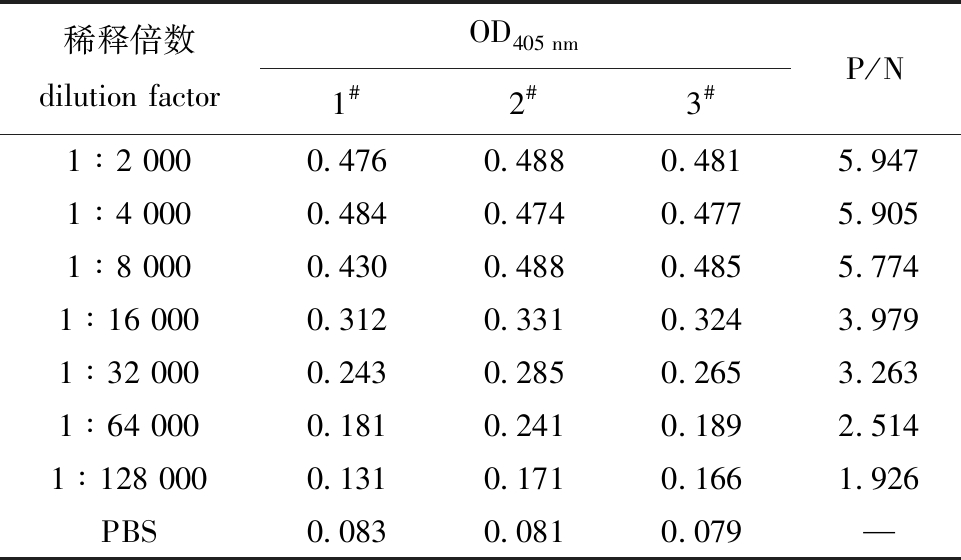
稀释倍数dilution factorOD405 nm1#2#3#P/N1∶2 0000.4760.4880.4815.9471∶4 0000.4840.4740.4775.9051∶8 0000.4300.4880.4855.7741∶16 0000.3120.3310.3243.9791∶32 0000.2430.2850.2653.2631∶64 0000.1810.2410.1892.5141∶128 0000.1310.1710.1661.926PBS0.0830.0810.079—
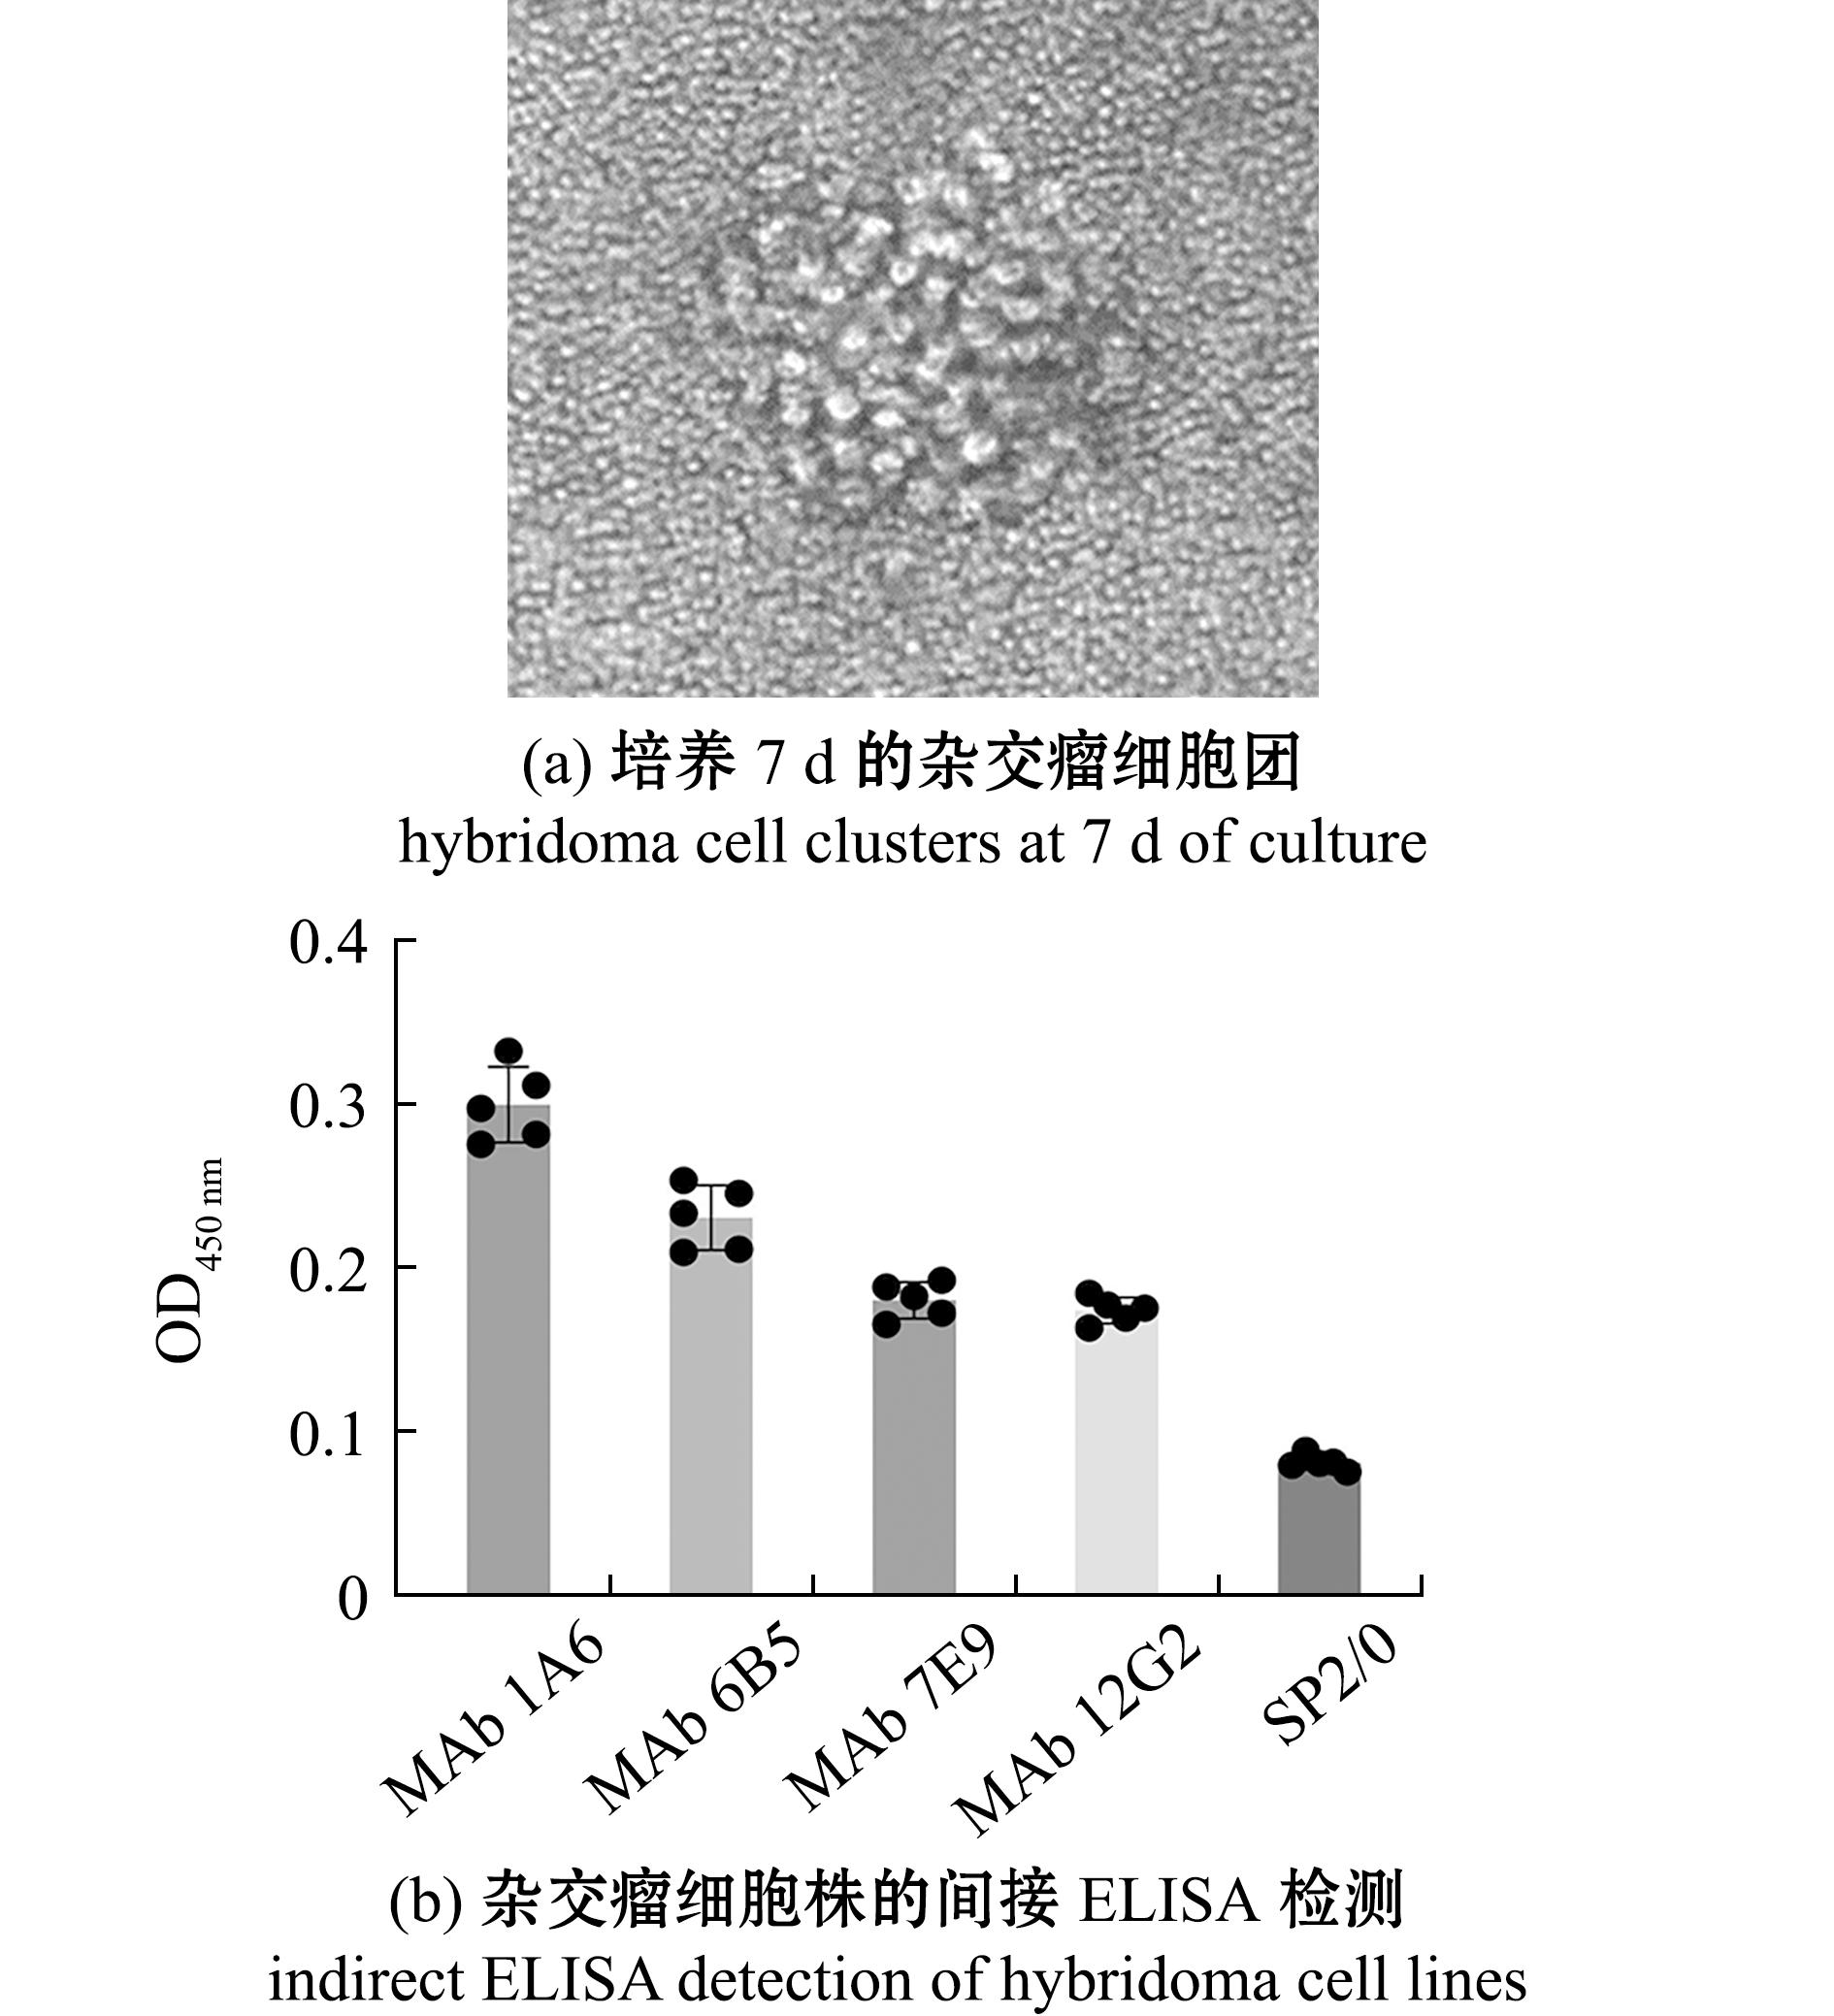
图3 抗ORF4单抗的制备及筛选
Fig.3 Preparation and screening of monoclonal antibodies against ORF4
2.4 间接免疫荧光鉴定
将感染CyHV-2病毒的细胞爬片经固定、通透处理后,分别以单抗1A6、6B5的细胞培养上清为一抗,进行间接IFAT检测。从图4可见,单抗1A6与6B5处理的感染细胞均出现零星且清晰的绿色荧光信号,且无明显非特异性背景荧光;进一步观察发现,绿色荧光信号主要定位于细胞的细胞核区域,而阴性对照组未观察到特异性荧光信号。
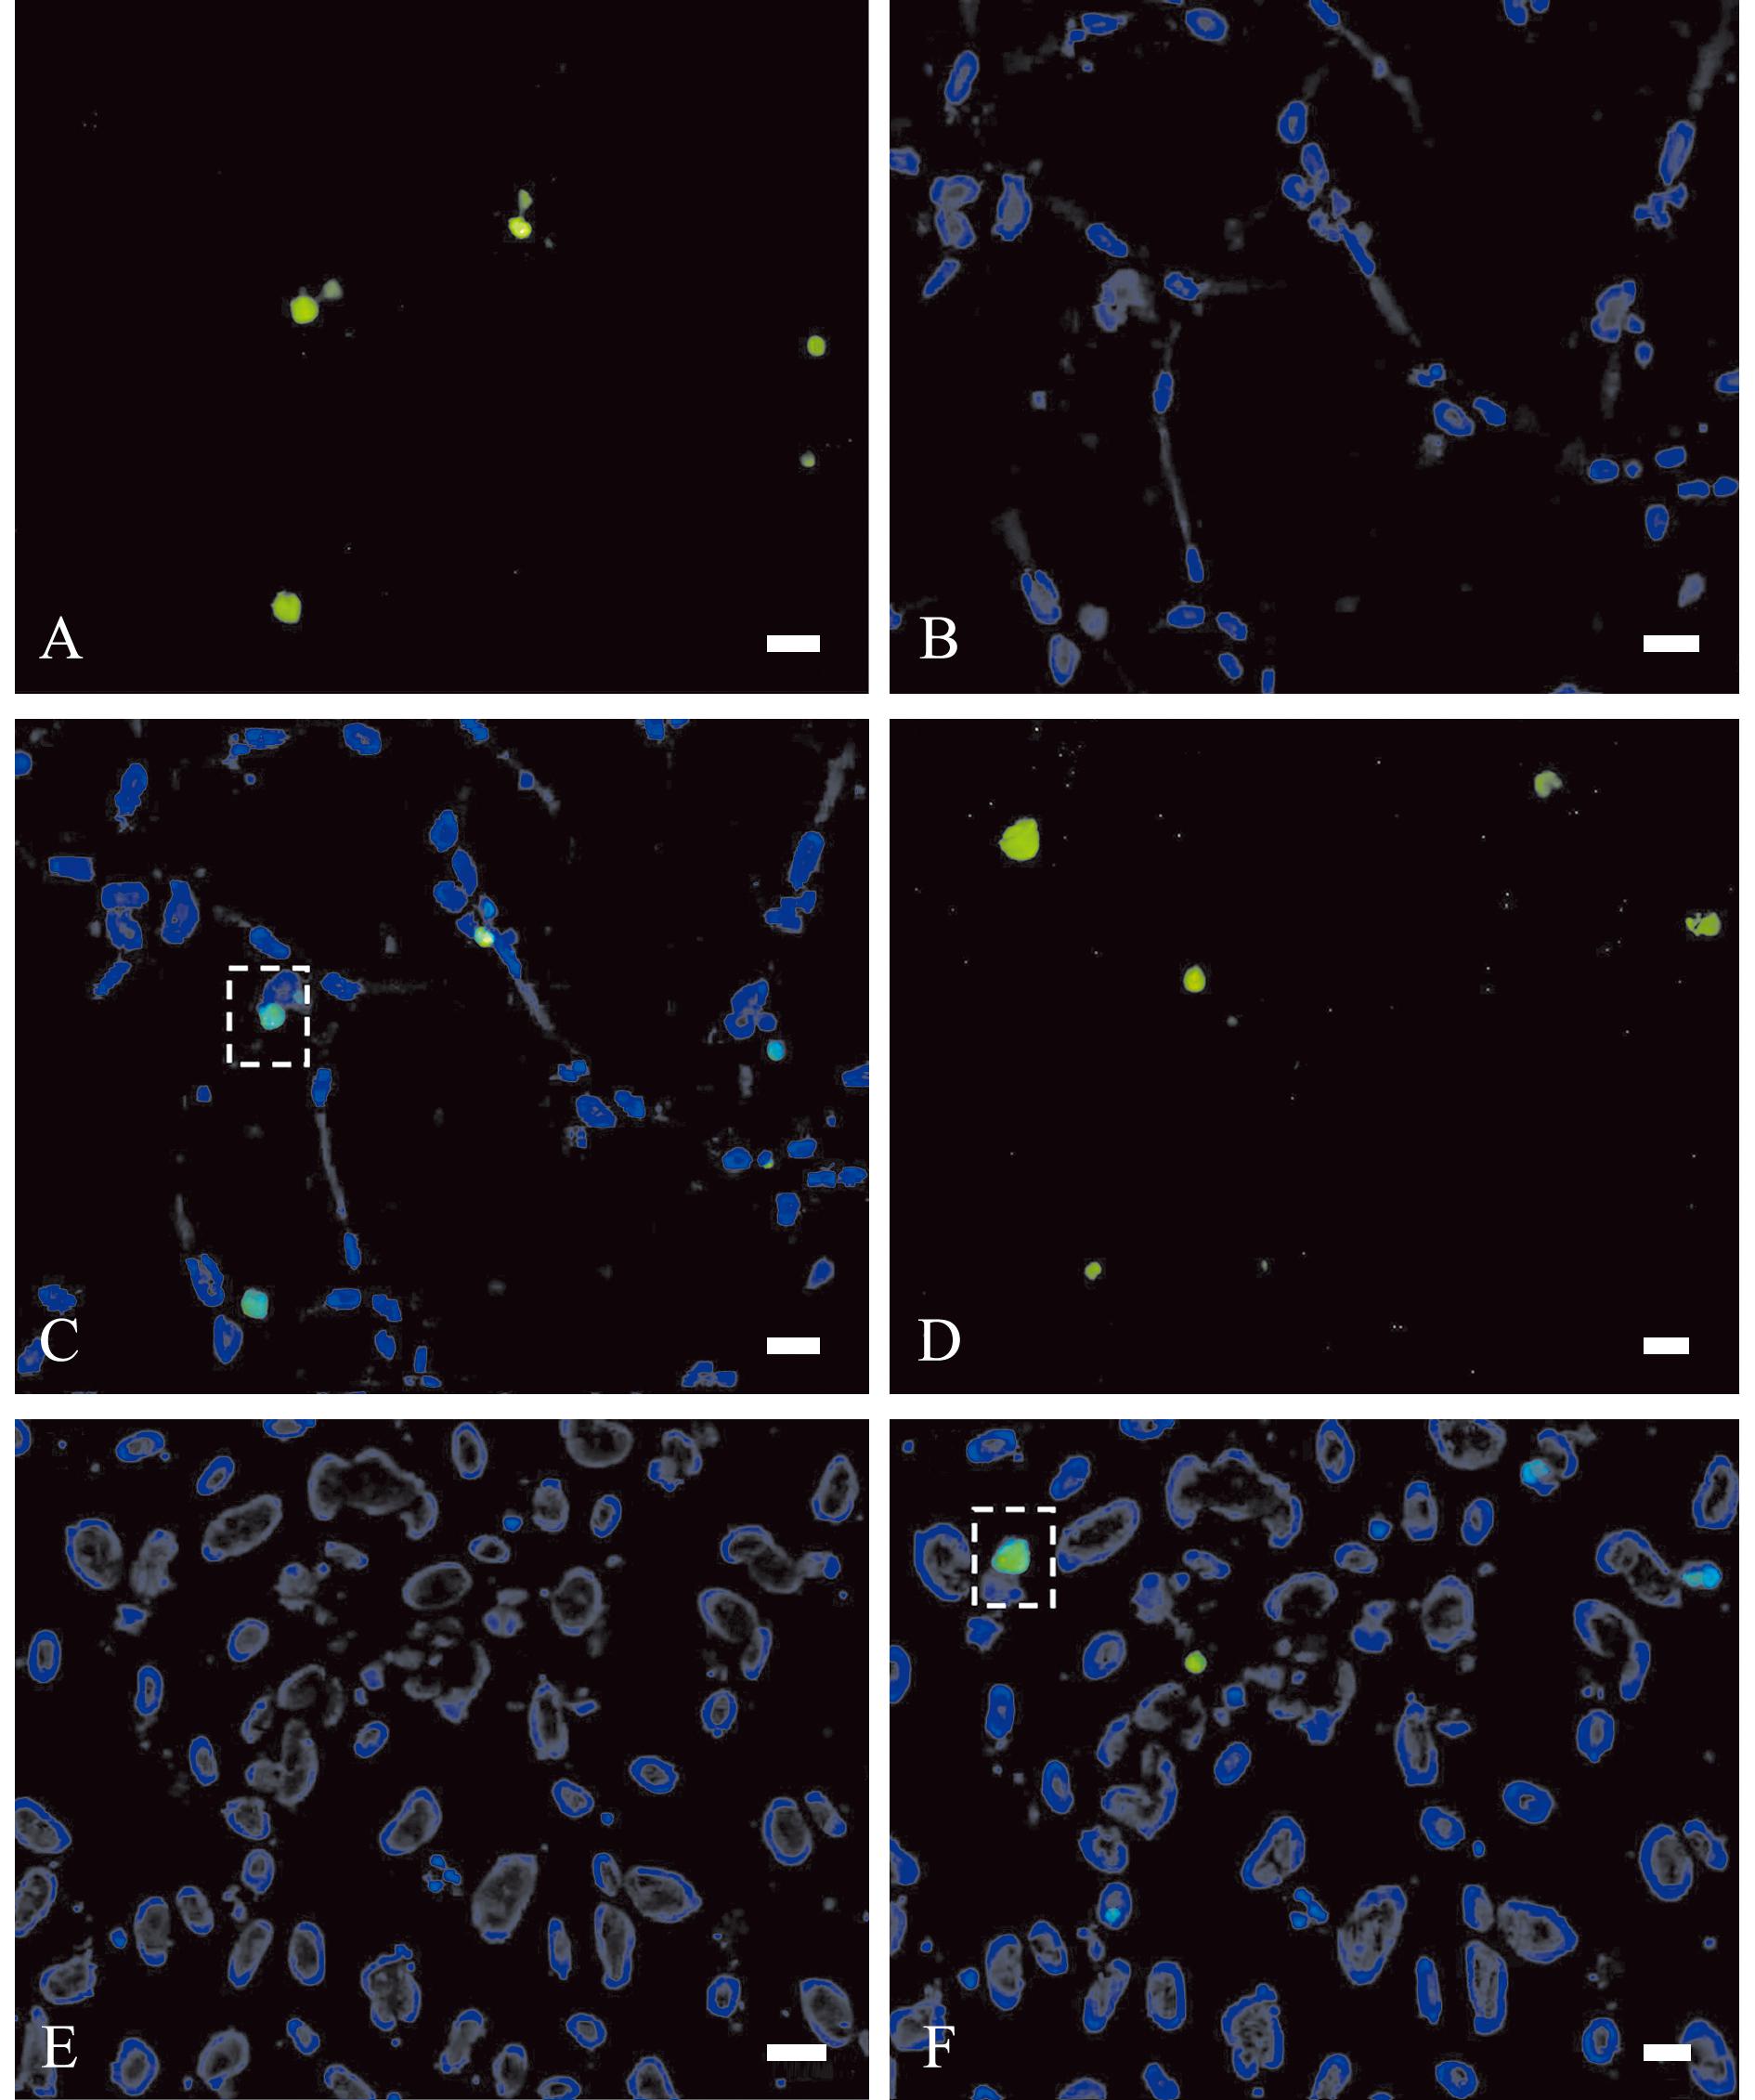
A—单抗1A6的FITC荧光染色;B—单抗1A6的DAPI染色;C—图A与图B的融合图;D—单抗6B5的FITC荧光染色;E—单抗6B5的DAPI染色;F—图D与图E的融合图;放大倍数为400倍。
A—FITC staining of mAb 1A6;B—DAPI staining of mAb 1A6;C—merged image of panels A and B;D—FITC staining of mAb 6B5;E—DAPI staining of mAb 6B5;F—merged image of panels D and E;Magnification ×400.
图4 抗ORF4单抗的间接免疫荧光分析
Fig.4 Indirect immunofluorescence analysis of mAb against ORF4
2.5 ORF4蛋白在病毒感染鱼主要组织中的表达
以单抗1A6为一抗,对CyHV-2感染后异育银鲫的肝、脾、肾、心脏4种主要组织的冰冻切片进行间接免疫荧光检测。从图5可见,ORF4蛋白在4种组织中均有表达,但存在明显的组织特异性差异。其中,肝、脾脏与肾脏组织切片中出现强阳性绿色荧光信号,荧光分布集中且亮度显著,而心脏组织中仅检测到微弱的绿色荧光信号,荧光强度明显弱于其他组织。
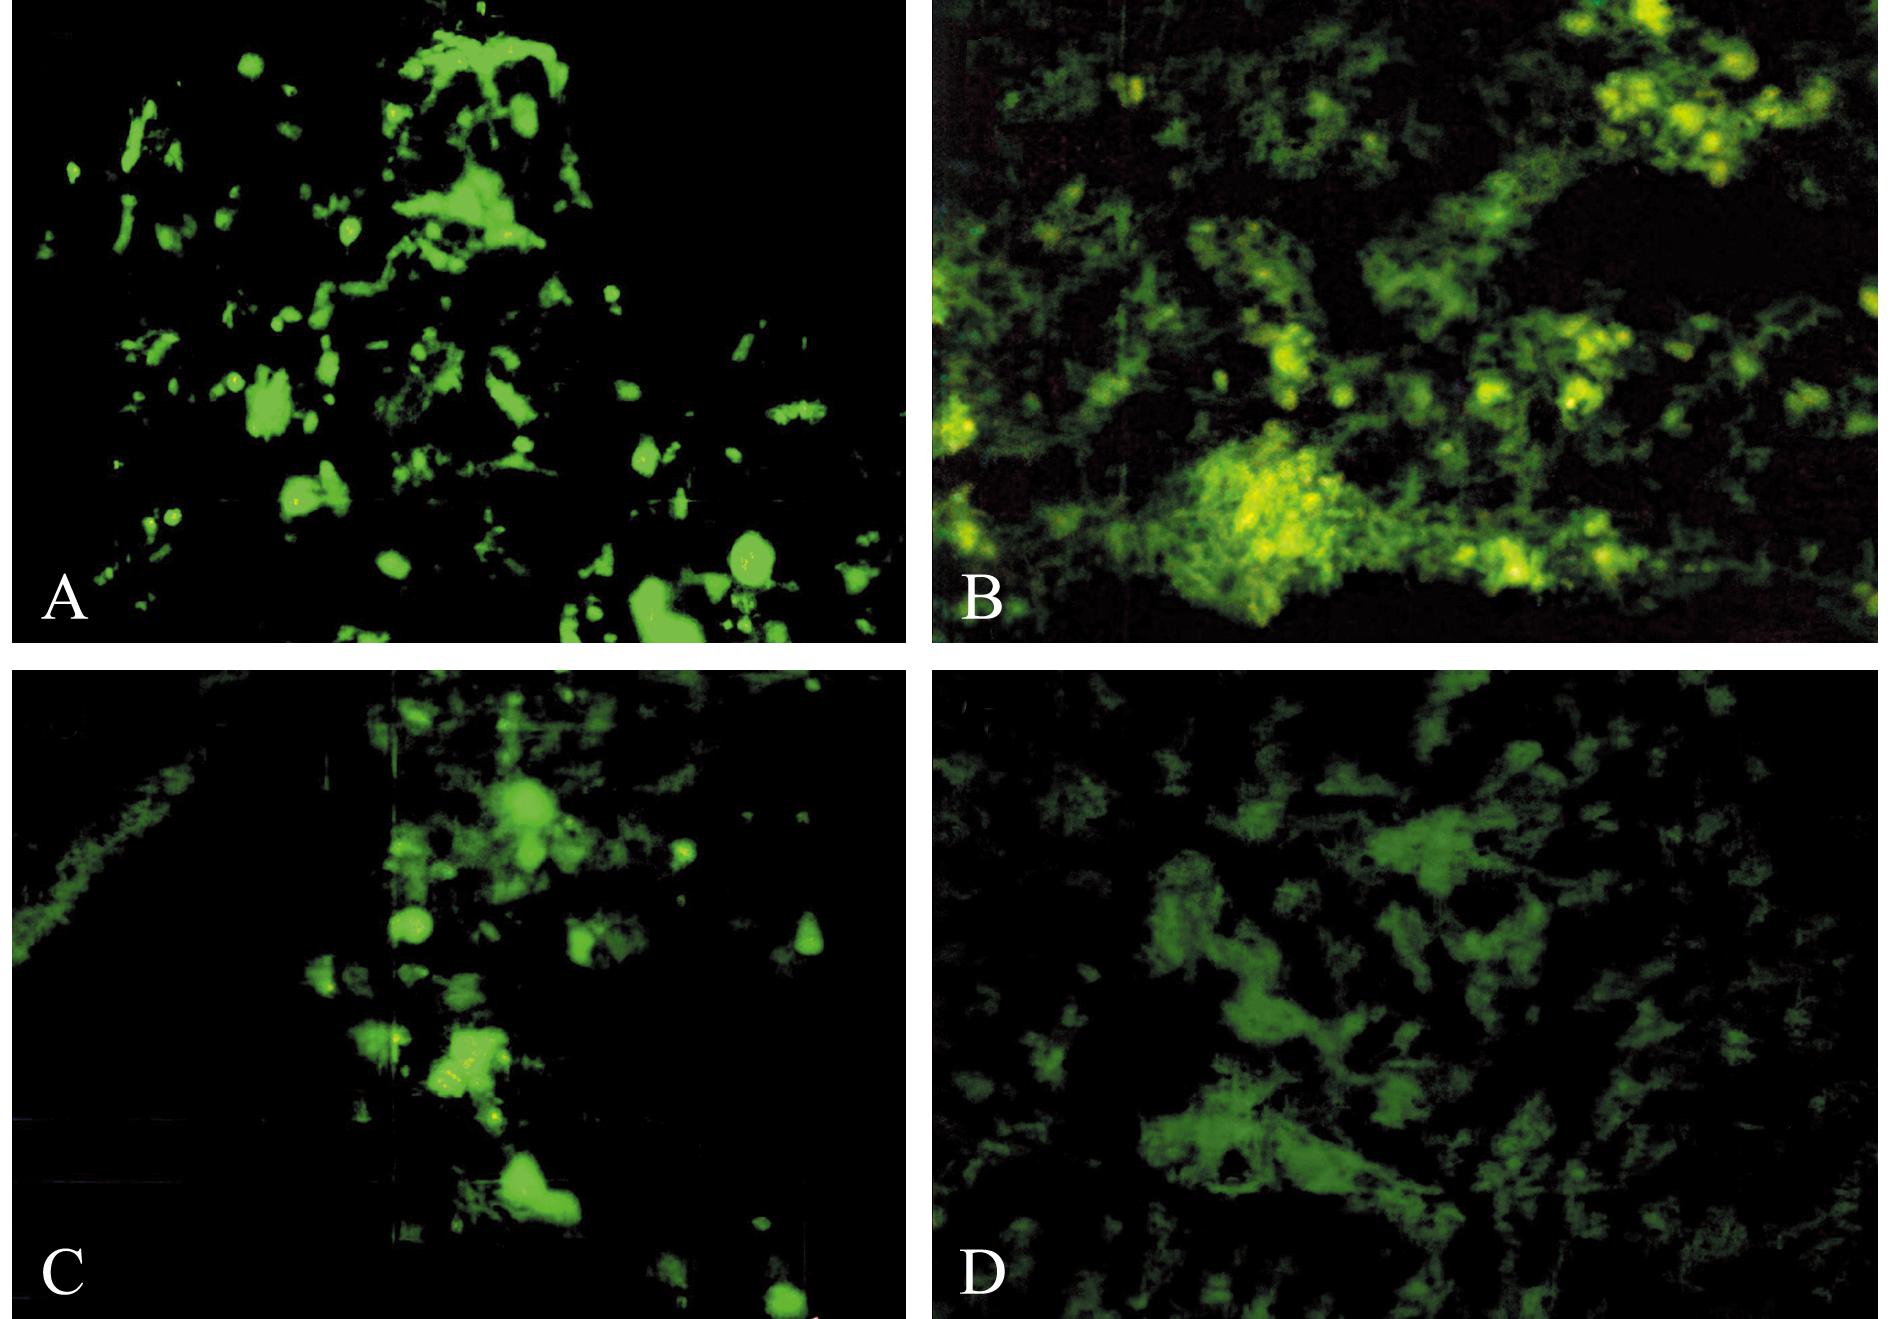
A—肝脏;B—脾脏;C—肾脏;D—心脏。
A—liver;B—spleen;C—kidney;D—heart.
图5 ORF4蛋白在病毒感染鱼主要组织中的表达
Fig.5 Expression of ORF4 protein in major tissues of virus-infected fish
2.6 ORF4蛋白的动态表达含量
从图6可见,CyHV-2感染异育银鲫后,脾脏中ORF4蛋白含量呈现显著的时间依赖性动态变化。感染后12 h脾脏中ORF4蛋白开始出现阳性表达,随后表达量快速升高,于感染后72 h达到峰值,随后ORF4蛋白水平逐渐下降,至感染后96 h仍维持在可检测水平,但表达量显著低于峰值期。
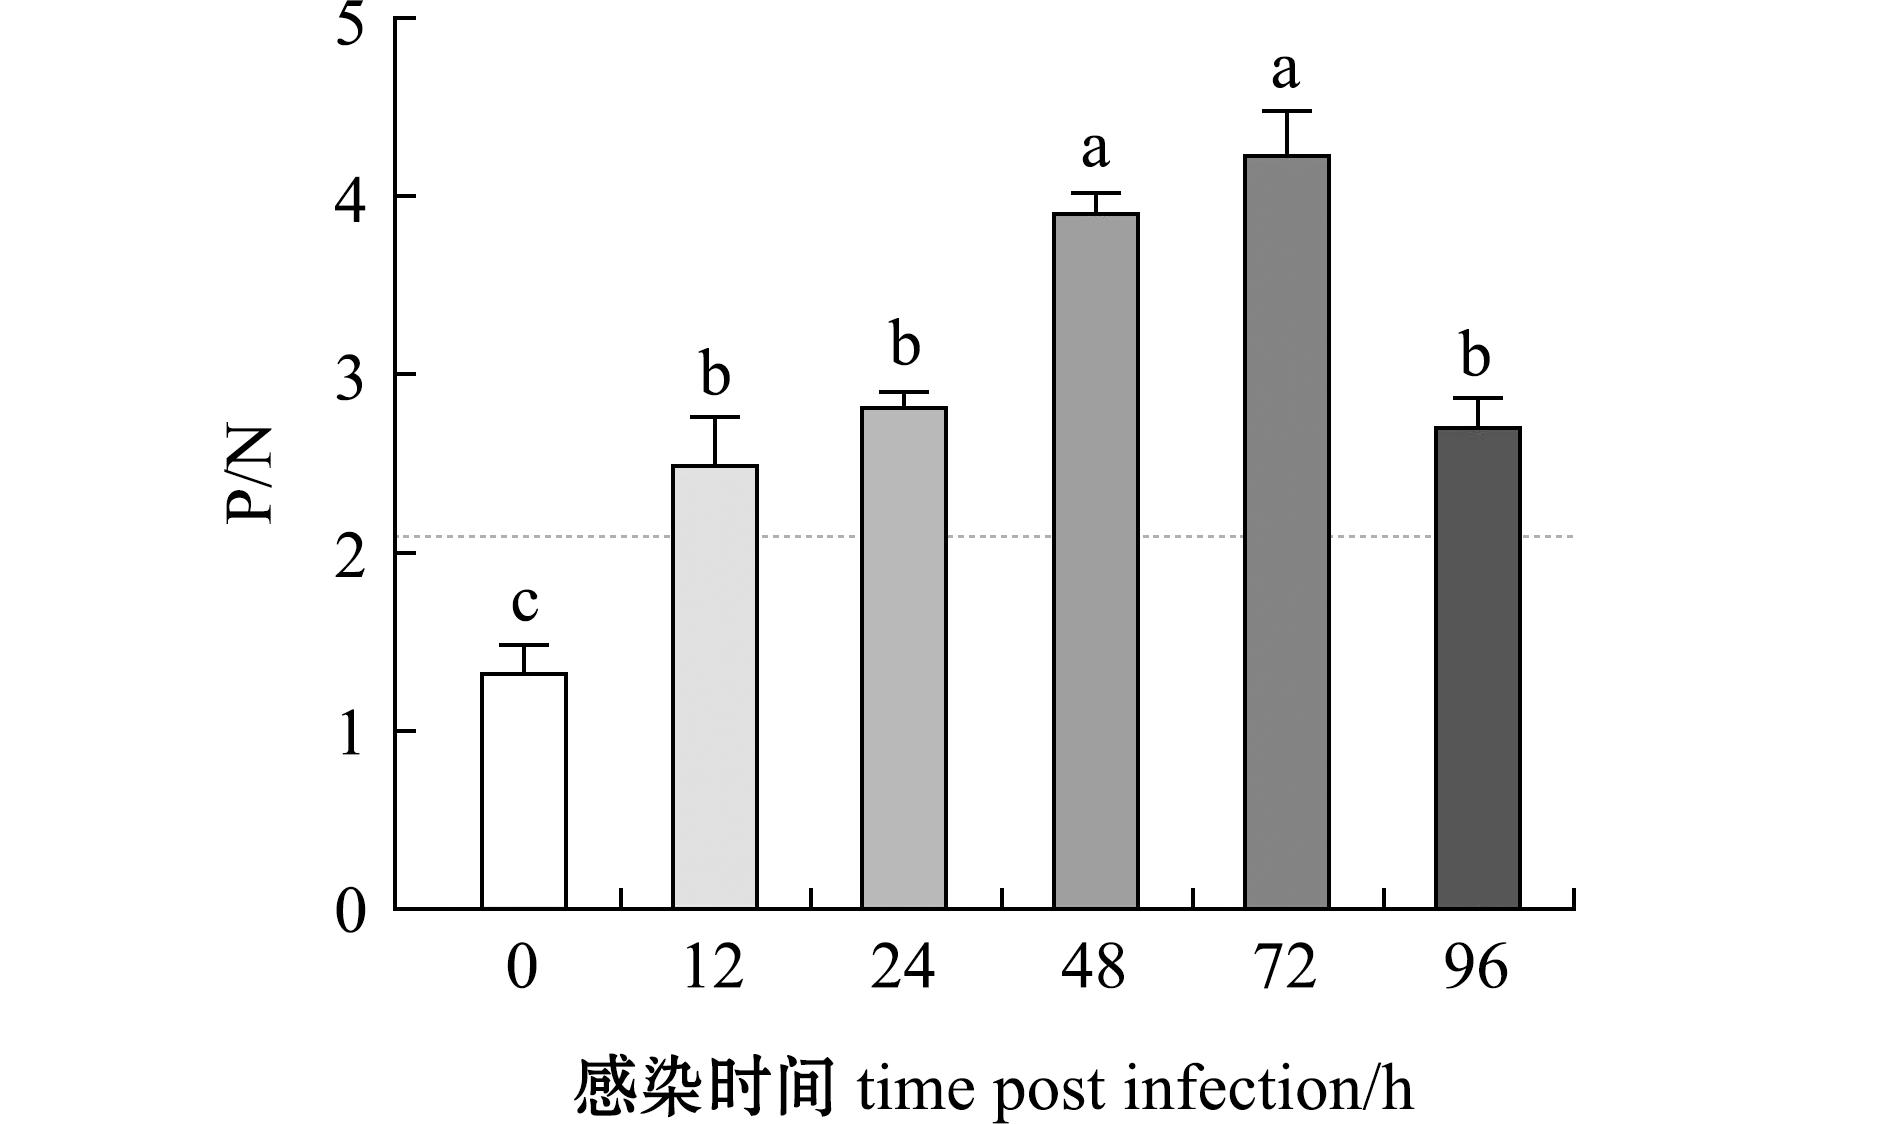
图6 CyHV-2感染后ORF4蛋白的动态表达
Fig.6 Dynamic expression of the ORF4 protein after CyHV-2 infection
3 讨论
3.1 CyHV-2 ORF4蛋白的重组表达
大肠杆菌表达系统具有增殖速度快、外源基因表达量高及操作简便等优势,已被应用于多种病毒蛋白的重组表达研究[17-18]。大肠杆菌表达系统有着相对较高的表达水平,其重组表达蛋白具备良好的抗原性,可作为免疫原用于单克隆抗体的制备[19-21]。在本研究中,通过大肠杆菌表达系统进行ORF4蛋白的重组表达,SDS-PAGE电泳显示其在约45 000处出现一条特异性蛋白条带,这与预期分子量大小一致,证实ORF4蛋白重组表达成功。研究表明,大肠杆菌表达系统缺乏真核生物所具备的转录后修饰与蛋白加工机制,其所表达的外源目的蛋白多以包涵体形式富集于菌体裂解沉淀中[22-24],本文也观察到这一现象。为获得具有天然构象与良好抗原活性的重组ORF4蛋白,本研究中采用高浓度尿素对包涵体蛋白进行充分变性解除折叠,再通过梯度透析逐步去除变性剂,实现目的蛋白的缓慢复性。经His亲和层析纯化后,蛋白纯度可达90%以上;Western blot结果显示,该蛋白可与His标签单克隆抗体发生特异性结合,表明其具备良好的抗原活性,能够满足后续单抗制备的免疫原要求。
3.2 抗ORF4蛋白单抗的制备
单抗因特异性强、效价高、可大量制备等优势,已成为研究病毒蛋白功能的有力工具[25-27]。本文以ORF4重组蛋白为抗原免疫小鼠,通过杂交瘤技术成功获得了稳定分泌抗ORF4蛋白单抗的杂交瘤细胞株。效价分析表明,单抗1A6的抗体效价达到1:64 000,具有较高的检测灵敏度与应用潜力。研究表明,大部分参与调控病毒增殖的编码蛋白主要定位于细胞核内,可通过与病毒基因组或宿主转录调控因子互作,从而调控病毒基因的有序表达[28-29]。周瑶佳等[30]研究发现,CyHV-2的复制与转录过程主要发生在宿主细胞核内,其基因组复制依赖宿主细胞核内的转录调控体系及相关酶类。在本研究中,间接IFAT结果表明,单抗1A6、6B5均能与病毒感染细胞内ORF4蛋白特异性结合,其荧光信号主要定位于细胞核区域,提示该蛋白可能在CyHV-2的核内复制期间参与调控宿主基因的转录和表达,从而有利于病毒的增殖与组装[31]。上述结果与ORF4蛋白在病毒增殖过程中发挥重要功能的文献报道一致,同时也证实本研究制备的单克隆抗体具有良好的特异性与结合活性。
3.3 抗ORF4蛋白单抗的应用
评估本研究制备的抗ORF4蛋白单抗的应用价值,本文以抗ORF4单抗为工具,对ORF4蛋白在CyHV-2感染异育银鲫主要组织中的分布与表达特征进行了检测分析。间接IFAT结果表明,ORF4蛋白可在感染鱼的肝、脾、肾、心脏等主要组织中呈现广谱组织表达特征。熊关庆等[32]发现,CyHV-2感染鲫的主要损伤靶器官为脾脏、鳃、肾脏、肠道、心脏和肝脏。ORF4蛋白在这些组织中的广泛表达特征,与CyHV-2的致病特点一致。在组织表达差异上,ORF4蛋白在脾脏呈高表达水平,推测ORF4蛋白可能在脾脏中参与机体免疫应答的调控,通过干扰宿主抗病毒免疫反应,进而有利于病毒在宿主体内的增殖与扩散。已有研究证实,CyHV-2感染后在约24 h进入对数生长期,96 h后达到病毒滴度峰值[33]。基于抗ORF4单抗,本研究中发现,ORF4蛋白于感染后12 h首次检出,而72 h达到表达高峰,明显早于病毒复制高峰期,这与疱疹病毒非结构蛋白通常在复制高峰期前大量合成的特点一致。值得注意的是,96 h时ORF4蛋白虽显著下降但仍可检出,这与CyHV-2在感染96 h后进入增殖平台期的特征相符,表明CyHV-2在异育银鲫脾脏组织中仍维持一定复制活性,ORF4蛋白的持续低表达可能为病毒持续感染提供支持。
4 结论
1)本研究中利用大肠杆菌表达系统实现了CyHV-2 ORF4重组蛋白的高效表达,制备了两株抗ORF4单克隆抗体,经鉴定制备的抗体可特异性识别CyHV-2感染细胞内的ORF4蛋白。
2)抗ORF4单抗可特异性检测与示踪CyHV-2感染异育银鲫的ORF4蛋白,可为深入研究ORF4蛋白在病毒感染中的调控作用提供工具。
[1] 陈永聪,方勤美,柯翎,等.鲤疱疹病毒2型和3型双重TaqMan荧光定量PCR检测方法的建立与应用[J].海洋渔业,2025,47(5):619-628.CHEN Y C,FANG Q M,KE L,et al.Establishment and application of double TaqMan qPCR for detection of cyprinid herpesvirus 2 and cyprinid herpesvirus 3[J].Marine Fisheries,2025,47(5):619-628.(in Chinese)
[2] 齐立斐,毛瑞,吴萍,等.鲤疱疹病毒Ⅱ型的核酸恒温扩增微流控快速检测芯片的建立[J].沈阳农业大学学报,2018,49(2):220-226.QI L F,MAO R,WU P,et al.A rapid competitive annealing mediated isothermal amplification microfluidic chip for cyprinid herpesvirus Ⅱ detection[J].Journal of Shenyang Agricultural University,2018,49(2):220-226.(in Chinese)
[3] 邓院生,方进,王俊,等.一株致病性异育银鲫源维氏气单胞菌的分离鉴定[J].水产学杂志,2015,28(2):1-5.DENG Y S,FANG J,WANG J,et al.Isolation and identification of a pathogenic bacterium Aeromonas veronii from diseased allogenic sliver crucian carp[J].Chinese Journal of Fisheries,2015,28(2):1-5.(in Chinese)
[4] 高娃,温虹,王浩,等.鲤疱疹病毒Ⅱ型主要免疫原性蛋白的鉴定[J].水产学报,2020,44(9):1441-1447.GAO W,WEN H,WANG H,et al.Identification of major immunogenic proteins from Cyprinid herpesvirus 2[J].Journal of Fisheries of China,2020,44(9):1441-1447.(in Chinese)
[5] SONG Y,ZHANG Y,XIAO S M,et al.Akt inhibitors prevent CyHV-2 infection in vitro[J].Fish &Shellfish Immunology,2024,154:109940.
[6] 况文东,谭海军,周亮,等.猪圆环病毒致病机理及疫苗与中药防治研究进展[J].山西农业科学,2025,53(6):30-38.KUANG W D,TAN H J,ZHOU L,et al.Research progress on pathogenic mechanisms,vaccines,and traditional Chinese medicine prevention and treatment of porcine circovirus[J].Journal of Shanxi Agricultural Sciences,2025,53(6):30-38.(in Chinese)
[7] LU J F,JIN T C,ZHOU T,et al.Identification and characterization of a tumor necrosis factor receptor like protein encoded by Cyprinid Herpesvirus 2[J].Developmental &Comparative Immunology,2021,116:103930.
[8] 孟少东,姜新宇,葛恒,等.鲤疱疹病毒Ⅱ型ORF4蛋白在杆状病毒表达系统中的表达及其免疫原性分析[J].大连海洋大学学报,2021,36(3):393-398.MENG S D,JIANG X Y,GE H,et al.Expression and immunogenicity analysis of Cy HV-2 ORF4 protein in baculovirus expression system[J].Journal of Dalian Ocean University,2021,36(3):393-398.(in Chinese)
[9] 刘欣欣,赵小涛,武有志,等.牛疱疹病毒1型gD蛋白的真核表达及单克隆抗体的制备[J].黑龙江畜牧兽医,2025(12):122-127.LIU X X,ZHAO X T,WU Y Z,et al.Eukaryotic expression of Bovine herpesvirus 1 gD protein and preparation of monoclonal antibodies[J].Heilongjiang Animal Science and Veterinary Medicine,2025(12):122-127.(in Chinese)
[10] YU H Y,SUN Y,QIU S Y,et al.Characterization of two monoclonal antibodies that capture and neutralize LSDV via distinct novel epitopes[J].Biochemical and Biophysical Research Communications,2026,805:153381.
[11] 晏文岩,鲁建飞,孔善云,等.Ⅱ型鲤疱疹病毒ORF4的多克隆抗体制备及其组织分布[J].微生物学通报,2017,44(8):1938-1946.YAN W Y,LU J F,KONG S Y,et al.Prokaryotic expression,polyclonal antibody preparation and tissue-tropism analysis of cyprinid herpesvirus Ⅱ non-structural protein ORF4[J].Microbiology China,2017,44(8):1938-1946.(in Chinese)
[12] GUO B Q,WEI C,LUAN LL,et al.Production and application of monoclonal antibodies against ORF66 of cyprinid herpesvirus 2[J].Journal of Virological Methods,2022,299:114342.
[13] WU R H,ZHANG Q,LI Y.Development,characterization of monoclonal antibodies specific for the ORF25 membrane protein of Cyprinid herpesvirus 2 and their applications in immunodiagnosis and neutralization of virus infection[J].Aquaculture,2020,519:734904.
[14] 彭俊杰,张琪,贾路路,等.鲤疱疹病毒Ⅱ型(CyHV-2) ORF25蛋白的原核表达及单克隆抗体的制备[J].华中农业大学学报,2017,36(2):96-101.PENG J J,ZHANG Q,JIA L L,et al.Prokaryotic expression and preparation of monoclonal antibody against ORF25 protein of cyprinid herpesvirus Ⅱ[J].Journal of Huazhong Agricultural University,2017,36(2):96-101.(in Chinese)
[15] 杜国玉,刘永杰,吴锦艳,等.羊口疮病毒ORF129基因的原核表达、纯化及鉴定[J].中国畜牧兽医,2018,45(7):1798-1803.DU G Y,LIU Y J,WU J Y,et al.Prokaryotic expression,purification and identification of ORF129 gene of orf virus[J].China Animal Husbandry &Veterinary Medicine,2018,45(7):1798-1803.(in Chinese)
[16] 赵东岳,林莉莉,温福利.结核分枝杆菌Rv3194c蛋白的表达、纯化及活性鉴定[J].微生物学报,2016,56(12):1847-1855.ZHAO D Y,LIN L L,WEN F L.Expression,purification and characterization of Rv3194c protein from Mycobacterium tuberculosis[J].Acta Microbiologica Sinica,2016,56(12):1847-1855.(in Chinese)
[17] ZHANG C X,HE F,LI N F,et al.Optimized production of full-length PCV2d virus-like particles in Escherichia coli:a cost-effective and high-yield approach for potential vaccine antigen development[J].Microbial Pathogenesis,2024,190:106630.
[18] ROSANO G L,CECCARELLI E A.Recombinant protein expression in Escherichia coli:advances and challenges[J].Frontiers in Microbiology,2014,5:172.
[19] 李永光,张晓菊,赵丽荣,等.甘肃省发现2例猪泡型棘球蚴病病例[J].中国动物检疫,2024,41(5):25-28.LI Y G,ZHANG X J,ZHAO L R,et al.Two cases of porcine echinococcosis multilocularis found in Gansu Province[J].China Animal Health Inspection,2024,41(5):25-28.(in Chinese)
[20] 刘清河,申海清,刘彤,等.抗猪肠致病性大肠杆菌特异性抗体的制备及应用[J].中国兽药杂志,2001,35(5):29-33.LIU Q H,SHEN H Q,LIU T,et al.Preparation and application of specific antibody against porcine enteropathogenic Escherichia coli[J].Chinese Journal of Veterinary Drug,2001,35(5):29-33.(in Chinese)
[21] TERPE K.Overview of bacterial expression systems for heterologous protein production:from molecular and biochemical fundamentals to commercial systems[J].Applied Microbiology and Biotechnology,2006,72(2):211-222.
[22] 周勇,范玉顶,徐进,等.鲤疱疹病毒Ⅱ型ORF4基因的克隆、表达与免疫学检测方法[J].淡水渔业,2017,47(1):61-65.ZHOU Y,FAN Y D,XU J,et al.Cloning,expression and immunological assay of ORF 4 encoding protein of Cyprinid herpesvirusⅡ[J].Freshwater Fisheries,2017,47(1):61-65.(in Chinese)
[23] 罗芮洁,闫飞燕,蒋亨珂,等.大豆表皮模式因子GmEPFL6a荫蔽响应分析及原核表达条件优化[J].中国油料作物学报,2025,47(4):929-938.LUO R J,YAN F Y,JIANG H K,et al.Shade response of soybean epidermal patterning factor GmEPFL6a and optimization of prokaryotic ex-pression conditions[J].Chinese Journal of Oil Crop Sciences,2025,47(4):929-938.(in Chinese)
[24] 邓小亮,钟秋珍,付欣,等.中华绒螯蟹金属硫蛋白基因在A549细胞中的表达及鉴定[J].广州医科大学学报,2019,47(1):1-5.DENG X L,ZHONG Q Z,FU X,et al.Expression and identification of metallothionein gene of Eriocheir sinensis in A549 cells[J].Academic Journal of Guangzhou Medical University,2019,47(1):1-5.(in Chinese)
[25] SEDANO S,MANLEY K,PRENDERGAST G C,et al.Use of mouse knockout models to validate the specificity of monoclonal antibodies[J].Methods in Cell Biology,2025,199:99-111.
[26] MURIITHI B,GRITTI F,GILAR M,et al.High-efficiency analytical protein a columns for high sensitivity monoclonal antibody titer analysis[J].Analytical Chemistry,2025,97(48):26349-26356.
[27] 仇槿昕,侯辉,孙法壮,等.施马伦贝格病毒N蛋白的原核表达及其单克隆抗体制备[J].中国草食动物科学,2025,45(3):39-45.QIU J X,HOU H,SUN F Z,et al.Prokaryotic expression of schmallenberg virus N protein and preparation of its monoclonal antibody[J].China Herbivore Science,2025,45(3):39-45.(in Chinese)
[28] 吕爽,杨涛,孙恩成,等.蓝舌病病毒新型NS4蛋白的亚细胞定位分析及功能预测[J].中国畜牧兽医,2016,43(1):1-7.LÜ S,YANG T,SUN E C,et al.Subcellular localization analysis and function prediction of BTV new type NS4 protein[J].China Animal Husbandry &Veterinary Medicine,2016,43(1):1-7.(in Chinese)
[29] 李露,宁淑香,王继红.HIV-1 Tat蛋白在细胞核中的功能[J].中国细胞生物学学报,2023,45(3):462-470.LI L,NING S X,WANG J H.Function of HIV-1 Tat protein in the nucleus[J].Chinese Journal of Cell Biology,2023,45(3):462-470.(in Chinese)
[30] 周瑶佳,田思璐,许佳雪,等.四川地区养殖鲫鲤疱疹病毒Ⅱ型的鉴定及病理学研究[J].水产学报,2020,44(9):1397-1407.ZHOU Y J,TIAN S L,XU J X,et al.Identification and pathological study of Cyprinid herpesvirus Ⅱ in Sichuan[J].Journal of Fisheries of China,2020,44(9):1397-1407.(in Chinese)
[31] 江栢坚,张志强,巫祎琴,等.尼罗罗非鱼高迁移率族蛋白4(TOX4)基因克隆及其在细菌感染过程中的表达特征[J].大连海洋大学学报,2023,38(1):86-94.JIANG B J,ZHANG Z Q,WU Y Q,et al.Cloning and expression of Tox high mobility group box 4 (TOX4) gene in Nile tilapia (Oreochromis niloticus) challenged with Streptococcus agalactiae infection[J].Journal of Dalian Ocean University,2023,38(1):86-94.(in Chinese)
[32] 熊关庆,段靖,冯杨,等.鲫CyHV-2病毒病的诊断及组织病理损伤研究[J].四川农业大学学报,2019,37(3):397-403.XIONG G Q,DUAN J,FENG Y,et al.Diagnosis and histopathological damage of CyHV-2 virus disease:a case study in Carassius auratus[J].Journal of Sichuan Agricultural University,2019,37(3):397-403.(in Chinese)
[33] 沈兆媛,鲁建飞,许丹,等.中草药饲料添加剂对异育银鲫感染Ⅱ型鲤疱疹病毒的影响[J].水产科学,2018,37(3):289-294.SHEN Z Y,LU J F,XU D,et al.Effects of Chinese herbal dietary additives on allogyogenetic silver crucian carp Carassius auratus gibelio infected cyprinid herpesvirus Ⅱ[J].Fisheries Science,2018,37(3):289-294.(in Chinese)