盐度是海洋生态系统中一个重要的生态因子,由于气候变化、地域差异及养殖用水的来源不同等因素,养殖水体的盐度可能会发生波动,进而影响鱼类的行为、免疫及其他生理反应[1]。从行为层面来看,环境因子的变化会影响水生动物的行为反应[2]。不同鱼群在遭受胁迫时表现出不同程度活性下降及游泳能力降低[3]。海水鱼所处环境盐度的变化会引起其在渗透压调节、呼吸代谢、免疫反应、内分泌调节等多个生理生化过程中的变化[4]。已有研究表明,水体的盐度变化会引起鱼类产生针对活性氧(reactive oxygen species,ROS)的生理防御。在正常条件下,鱼类机体内自由基产生和清除过程处于动态平衡状态,活性氧含量调控在一定水平,而当鱼类受到如盐度、温度等外部环境因素胁迫时,会导致ROS产生速率加快,进而引发氧化应激反应,造成组织器官生理功能紊乱[5]。盐度变化会使星状鲟(Acipenser stellatus)血浆皮质醇和热休克蛋白(HSP70)的水平增加[6]。另外,研究表明,高盐胁迫(42)导致黄姑鱼(Nibea albiflora)血清中的酸性磷酸酶(ACP)和碱性磷酸酶(AKP)活性显著下调,与此同时,为应对渗透压压力,在高盐组中黄姑鱼鳃部和肝脏的Na+/K+-ATP酶活力显著升高,且肝脏中的天门冬氨酸氨基转移酶(AST)和丙氨酸氨基转移酶(ALT)活性也处于较高水平,提示极端高盐环境可能已对机体代谢稳态及肝脏健康造成了实质性挑战[7]。麦瑞加拉鲮(Cirrhinus mrigala)暴露在3、5、7高盐度咸淡水环境90 d后,肾脏、肝脏和鳃组织中的活性氧升高,还原型谷胱甘肽(GSH)、过氧化物酶(POD)、超氧化物歧化酶(SOD)和过氧化氢酶(CAT)显著减少,以抵抗高盐度带来的压力[8]。
鱼类的渗透压平衡调节是鳃、肾脏、肠道等器官与内分泌系统等生理系统协同作用的结果。鱼鳃作为鱼类呼吸与渗透压调节的关键器官,可通过离子细胞调控Na+/Cl-离子交换及氨氮排泄,实现渗透调节[9]。而肾脏通过肾小管与集合管的离子重吸收或分泌,可精细维持体液渗透压与离子浓度稳态[10]。当处于低渗透压环境时,鱼体内渗透压高于体外,大量水分会渗入体内,此时鱼类借助鳃吸收水中离子来维持渗透压平衡;在高盐度水环境中,鱼类会饮用大量高渗水,通过肠道吸收水分后,再经由鳃将剩余离子排出体外。此外,内分泌系统中皮质醇也深度参与渗透压调节过程,其盐皮质激素特性可直接参与渗透压调节,糖皮质激素特性则通过调控能量代谢辅助机体适应盐度变化[11]。肝脏作为葡萄糖的主要储存部位,是盐度胁迫期间皮质醇作用的已知目标[12],能进一步从能量代谢层面支持机体的渗透压调节。
横带髭鲷(Hapalogenys analis)俗称“十六枚”,隶属于鲈形目(Perciforms)石鲈科(Pomadasyidae)髭鲷属(Hapalogenys)[13]。2025年,浙江省海洋水产研究所在全国范围率先实现了横带髭鲷的规模化人工繁育,其产业化发展进程显著加快。浙江沿海海域盐度受季风气候驱动的冲淡水影响显著,横带髭鲷作为中国东南沿海典型的近岸底层鱼类,其广盐性能够良好适应海区盐度的动态变化,使得其特别适宜在浙江沿海地区进行人工繁育及养殖[14]。然而横带髭鲷在幼鱼阶段对环境盐度变化极为敏感,盐度大幅波动常引发机体产生强烈的应激反应,进而影响幼鱼的存活、生长及代谢稳态。目前,对于横带髭鲷的研究主要聚焦于养殖技术、生物学特征、疾病病理等[14-16],但针对急性盐度胁迫下该物种从行为反应到生理响应尚缺乏系统研究。因此,本研究中以横带髭鲷幼鱼为试验对象,旨在探究不同盐度水平对其行为反应、生化应激参数和组织结构变化的影响,并从评价性研究视角明确其对急性盐度胁迫的响应规律与特征。研究将从“行为-生理-组织”多维度解析其胁迫响应机制,不仅可为理解鱼类对盐度变化的响应规律提供直接依据,还能初步梳理鱼类应对盐度胁迫的潜在适应路径,为鱼类生理学中盐度适应领域的研究积累基础数据支持,以期为阐明横带髭鲷幼鱼的盐度适应机制及优化其健康养殖体系提供科学依据。
1 材料与方法
1.1 材料
试验所用横带髭鲷取自浙江省海洋水产研究所西轩试验场人工繁育的F1代群体,选取规格整齐,活力旺盛的个体作为试验鱼,体长为(9.48±0.94)cm;体质量为(21.56±4.13)g。试验开始前,试验鱼在圆形塑料养殖池(直径为3.0 m,高为1.5 m)中暂养7 d以适应试验环境,养殖用水为砂滤后的自然海水,控制温度恒定为25 ℃,盐度为22,pH为7.6±0.1,溶解氧含量>6.8 mg/L。投喂鱼宝稚鱼3号(粒径为3 mm)颗粒饲料,每天7:00和15:00各进行1次饱食投喂,投喂后2 h进行换水排污处理。
1.2 方法
1.2.1 试验设计 参照西轩试验场横带髭鲷养殖的盐度范围为25±3及预试验结果,设置5、15、25、35共4个盐度处理组,以盐度25为对照组,每组设置3个平行试验以减少随机误差。低盐组通过添加淡水调配而成;高盐组通过添加商品化海水晶(保嘉)调配至试验盐度。每日换水三分之一并进行盐度检测以保证试验盐度不变,备用水盐度提前进行调配并进行曝气。试验开始前一天停止投喂饲料,将暂养后的试验鱼直接转入调好盐度的塑料养殖圆池中,每桶放置试验鱼40尾。另设置一平行试验组,按照暂养期间投喂方式继续进行投喂,观察横带髭鲷在不同盐度条件下的进食情况。
1.2.2 行为观察 行为观察在塑料圆形养殖池中进行,在养殖池上方合适位置安装运动相机(GoPro 11;美国GoPro),覆盖整个养殖池区域,全面观察横带髭鲷的行为表现。定时投喂饲料,观察记录横带髭鲷的摄食时间、摄食速度和摄食量。观察横带髭鲷在养殖池中的游动行为,包括不稳定游动、倒立游泳等不安表现,沉底躺卧、垂直姿态、失去平衡等体位异常,以及在水面出现的吞咽动作、眼部运动和抽搐等现象。观察横带髭鲷是否有特定的游动路线或区域偏好,以及在不同时间段的游动活跃度变化。记录横带髭鲷的呼吸频率(鳃盖每开合1次对应1次呼吸动作,以1 min的鳃盖开合次数,代表其呼吸频率)。在观察过程中,尽量减少人为干扰,观察过程保持安静,避免对横带髭鲷的行为产生影响,尽量在不影响鱼的情况下进行观察和记录。
1.2.3 样品采集 试验鱼在整个试验期间的成活率为100%。分别在试验进行的12、24、48、72、96、108 h时进行取样,每次每组各随机抽取5尾鱼。采用MS-222溶液(50 mg/L)麻醉,从尾端静脉采血,分装于1.5 mL的离心管中,4 ℃冰箱中静置4 h后,以10 000 r/min离心10 min,吸取上清液,-80 ℃超低温冰箱中保存,用于血清理化指标测定。解剖分别采集肝、鳃组织液氮保存,随后在-80 ℃超低温冰箱中保存。采集鱼鳃、肝脏、胃、肾脏和肠道组织标本于波恩氏液中固定常温保存。为减轻个体差异对试验结果的影响,每个处理池中来自3个个体的组织被合并成一个单一的复合样本。
1.2.4 样品处理与酶活力测定 取横带髭鲷的血清样品加入9倍体积冰冷的生理盐水(0.9%),制成10%的血清稀释样品,分装到2 mL的离心管中,进行指标测定。按照试剂盒操作说明测定血清中皮质醇。鳃、肝组织用于检测抗氧化酶活力,包括SOD、CAT,鳃组织测定Na+/K+-ATP酶活力。准确称取0.2 g组织质量,按质量体积比1∶9 加生理盐水制成10% 的组织匀浆,以2 500 r/min离心10 min,收集上清液,其中部分上清液用于蛋白含量测定,其余上清液用生理盐水稀释至测定适宜浓度。采用考马斯亮蓝法测定组织匀浆上清液的蛋白质含量,绘制标准曲线并计算样品蛋白浓度(mg prot/mL)。分别采用羟胺法、钼酸铵法测定SOD和CAT;采用定磷法通过检测三磷酸腺苷(ATP)水解产生的无机磷含量测定鳃Na+/K+-ATP酶。所有酶活性结果均以每毫克蛋白的酶活性单位表示(U/mg prot)。所有生理生化指标均使用南京建成生物工程研究所生产的规格试剂盒,并利用全自动酶标仪(thermo Multiskan MK3;美国赛默飞)进行吸光度值测定。
固定的鳃、肝脏、胃、肾脏和肠道组织样品经梯度乙醇脱水、包埋,用切片机(RM 2245型;德国莱卡)进行连续切片,切片厚度为4~6 μm,采用苏木精-伊红(Henatoxylin-Esosin,HE)进行染色,中性树脂封片,在显微镜(AXIOCam 506型;德国蔡司)下进行观察并拍照。
1.3 数据处理
试验结果用平均值±标准差(mean±S.D.)表示,采用SPSS 27.0软件进行数据分析,利用单因素方差分析对各组数据进行差异显著性比较。对生理指标进行双因素重复测量方差分析(two-way reported measures ANOVA),采用Duncan法多重比较标注单个因素对指标的显著性,显著性差异设为0.05,采用GraphPad Prism 10.0软件制图。
2 结果与分析
2.1 盐度胁迫对横带髭鲷行为学反应及应激反应的影响
在进行横带髭鲷急性盐度胁迫试验时,试验鱼在不同盐度的试验环境中呈现出不同的应激反应差异。从表1可见,除盐度25组外,其余各组均有相应应激表现。盐度5组横带髭鲷表现出非常明显的应激反应,具体表现为背鳍竖立、急游、跃出水面等,且随着时间的延长,横带髭鲷的行为受到抑制,出现游动缓慢、呼吸频率减慢等现象,同时体表会持续分泌黏液,表现为水体表层漂浮白色泡沫。此外,横带髭鲷还表现出停止进食情况,且伴有反复呕吐动作。盐度15组横带髭鲷背鳍竖立、部分试验鱼也会表现出呼吸频率减慢、头探水面等应激反应,但相比盐度5组应激反应稍弱,且很快能够适应这种盐度变化,但是游动减慢,对声音、敲击等外界环境刺激反应迅速,进食减少。盐度25组除最开始的抱团游动之外,无其他明显的应激反应,进食与游动均正常。盐度35组横带髭鲷的呼吸频率降至100~115 次/ min,体表黏液分泌减少,鱼体变得僵硬,游动更加困难。活动积极性显著降低,对外界刺激的反应也变得迟钝,进食减少。综上,横带髭鲷在不同盐度环境下的应激反应及适应情况存在明显差异,盐度25组相对适应良好,盐度5组和盐度35组应激反应较为强烈。
表1 盐度对横带髭鲷游泳行为及进食状况的影响
Tab.1 Effect of salinity on behavioral performance and feeding status of Hapalogenys analis
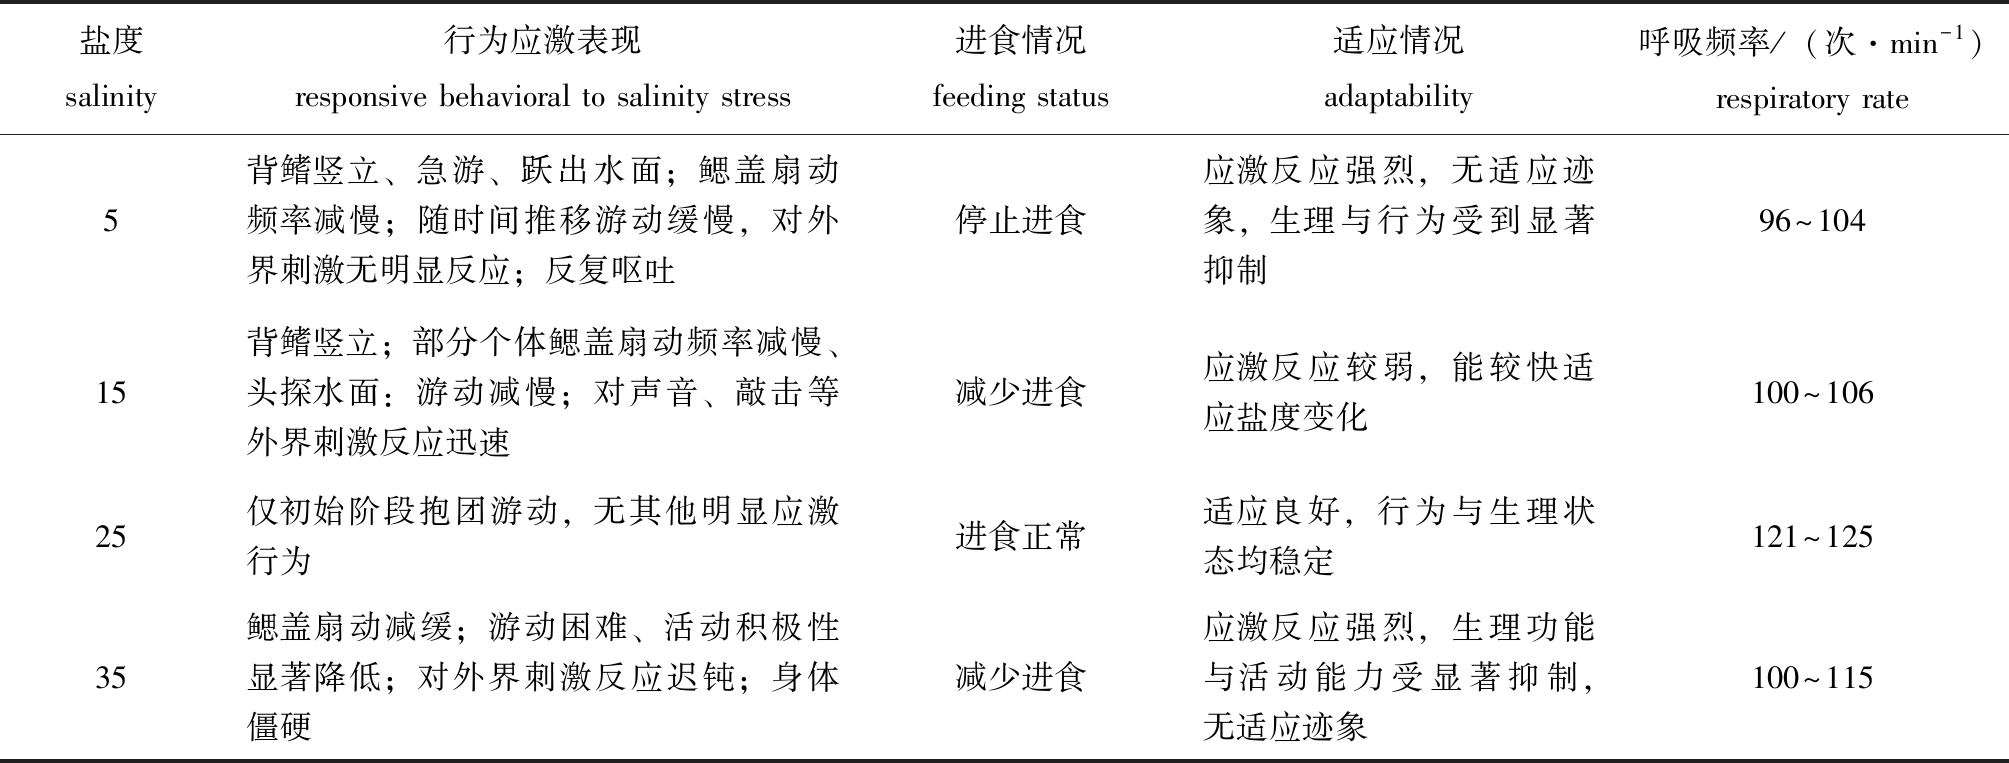
盐度salinity行为应激表现responsive behavioral to salinity stress进食情况feeding status适应情况adaptability呼吸频率/(次·min-1)respiratory rate5背鳍竖立、急游、跃出水面;鳃盖扇动频率减慢;随时间推移游动缓慢,对外界刺激无明显反应;反复呕吐停止进食应激反应强烈,无适应迹象,生理与行为受到显著抑制96~10415背鳍竖立;部分个体鳃盖扇动频率减慢、头探水面:游动减慢;对声音、敲击等外界刺激反应迅速减少进食应激反应较弱,能较快适应盐度变化100~10625仅初始阶段抱团游动,无其他明显应激行为进食正常适应良好,行为与生理状态均稳定121~12535鳃盖扇动减缓;游动困难、活动积极性显著降低;对外界刺激反应迟钝;身体僵硬减少进食应激反应强烈,生理功能与活动能力受显著抑制,无适应迹象100~115
此外,在不同盐度胁迫下横带髭鲷的应激反应除了行为上的变化,还表现在血清中皮质醇水平的变化上,且行为差异与血清皮质醇的变化相呼应。此外,盐度胁迫下横带髭鲷的应激反应还体现在血清皮质醇水平的变化上。从表2可见,盐度、胁迫时间及其交互作用均极显著影响血清皮质醇的质量浓度。盐度5组横带髭鲷血清皮质醇浓度显著低于盐度25组,仅在108 h时盐度15组与盐度25组无差异;盐度35组在多数时间点显著高于盐度25组。随着时间延长,盐度5、15、35组的皮质醇质量浓度呈逐渐上升趋势,而盐度25组的皮质醇始终相对稳定,各时间点维持在23~27 ng/mL,说明盐度25不易对横带髭鲷造成应激反应,更利于维持其血清皮质醇水平的稳定。
表2 盐度和胁迫时间对横带髭鲷血清中皮质醇质量浓度的影响
Tab.2 Influence of salinity and stress time on cortisol mass concentration in serum of Hapalogenys analis ng/mL
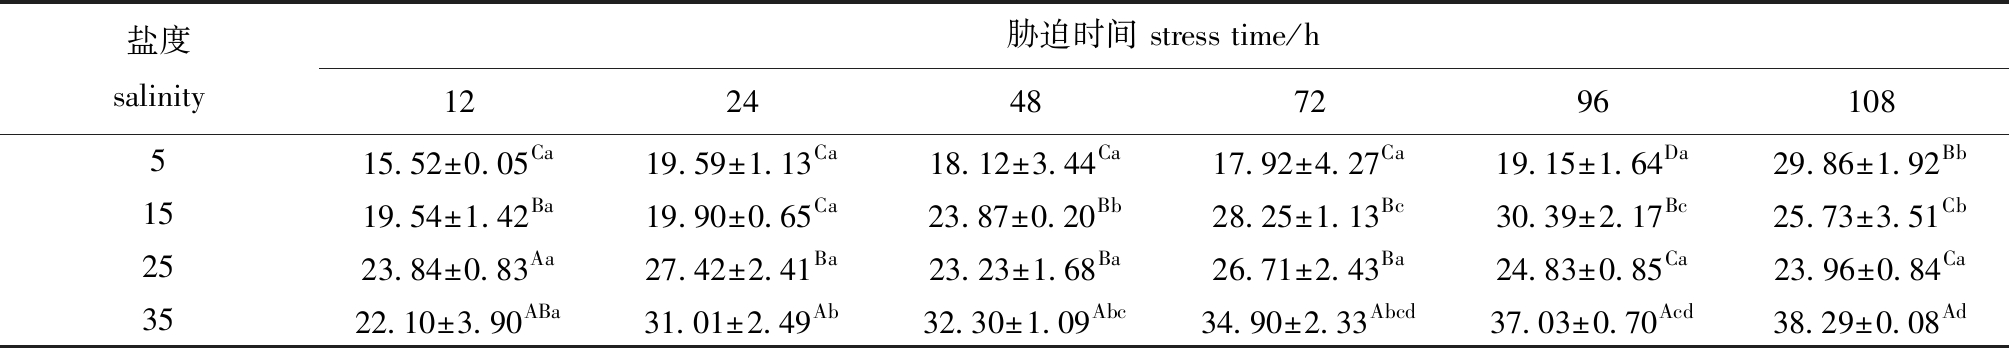
注:不同大写字母表示相同胁迫时间下不同盐度组之间具有显著性差异(P<0.05),不同小写字母表示同一盐度组中不同胁迫时间具有显著性差异(P<0.05);相同字母代表无显著性差异(P>0.05),下同。
Note:Different uppercase letters indicate significant differences among different salinity groups at the same stress time (P<0.05),and different lowercase letters indicate significant differences among different stress time points within the same salinity group (P<0.05);similar letters indicate no significant differences(P>0.05),et sequentia.
盐度salinity胁迫时间 stress time/h1224487296108515.52±0.05Ca19.59±1.13Ca18.12±3.44Ca17.92±4.27Ca19.15±1.64Da29.86±1.92Bb1519.54±1.42Ba19.90±0.65Ca23.87±0.20Bb28.25±1.13Bc30.39±2.17Bc25.73±3.51Cb2523.84±0.83Aa27.42±2.41Ba23.23±1.68Ba26.71±2.43Ba24.83±0.85Ca23.96±0.84Ca3522.10±3.90ABa31.01±2.49Ab32.30±1.09Abc34.90±2.33Abcd37.03±0.70Acd38.29±0.08Ad
2.2 盐度胁迫对横带髭鲷鳃Na+/K+-ATP酶活力的影响
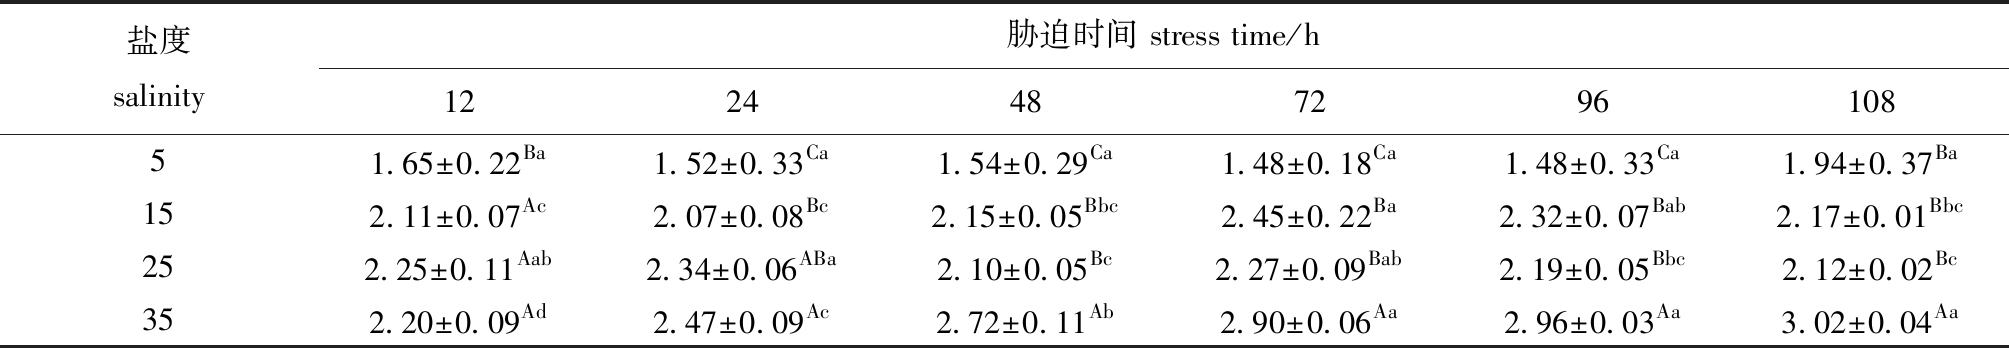
从表3可见,盐度、胁迫时间显著影响鳃Na+/K+-ATP酶活力。盐度5组的横带髭鲷鳃Na+/K+-ATP酶活力整体较为稳定,在1.48~1.94 U/mg间波动,各时间点无显著性差异,鳃Na+/K+-ATP酶活力在各时间点均显著低于盐度15、25、35组(除108 h外);盐度15组鳃Na+/K+-ATP酶活力整体呈现先升高后降低的趋势,72 h时升至(2.45±0.22)U/mg,而后逐渐回落;盐度25组鳃Na+/K+-ATP酶活力在2.10~2.34 U/mg间波动,始终保持稳定;盐度35组鳃Na+/K+-ATP酶活力呈现出逐渐升高的趋势,随盐度胁迫时间延长,从12 h的2.20 U/mg明显升高至108 h的3.02 U/mg。
表3 盐度和胁迫时间对横带髭鲷鳃Na+/K+-ATP酶活力的影响
Tab.3 Influence of salinity and stress time on gill Na+/K+-ATPase activity of Hapalogenys analis U/mg
盐度salinity胁迫时间 stress time/h122448729610851.65±0.22Ba1.52±0.33Ca1.54±0.29Ca1.48±0.18Ca1.48±0.33Ca1.94±0.37Ba152.11±0.07Ac2.07±0.08Bc2.15±0.05Bbc2.45±0.22Ba2.32±0.07Bab2.17±0.01Bbc252.25±0.11Aab2.34±0.06ABa2.10±0.05Bc2.27±0.09Bab2.19±0.05Bbc2.12±0.02Bc352.20±0.09Ad2.47±0.09Ac2.72±0.11Ab2.90±0.06Aa2.96±0.03Aa3.02±0.04Aa
2.3 盐度胁迫对横带髭鲷肝脏中CAT、SOD酶活力的影响
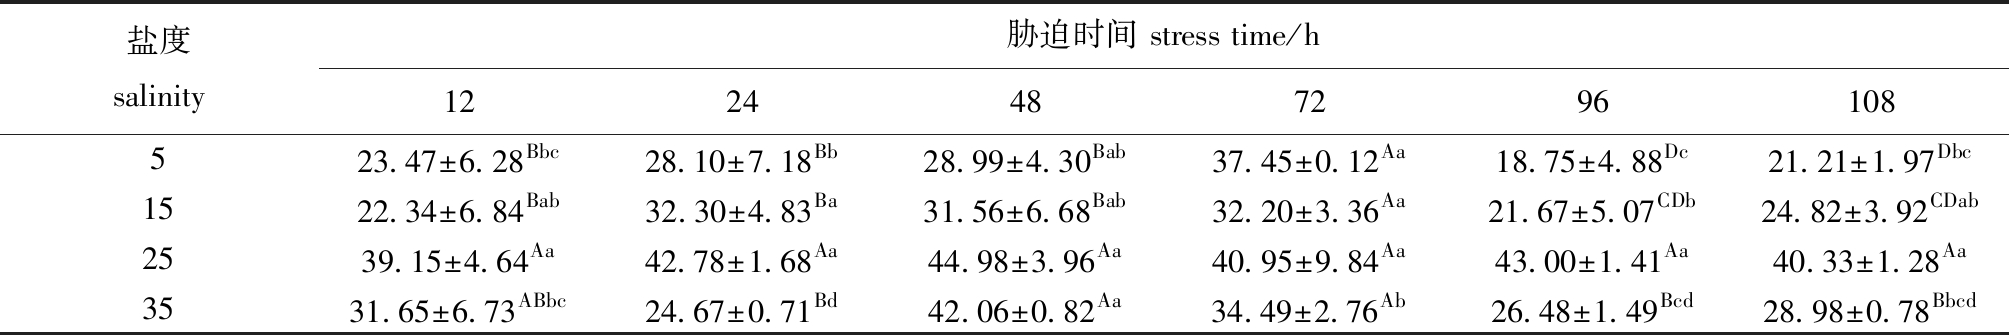
本研究中同步测定了盐度5、15、25、35胁迫下横带髭鲷肝脏过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活力的动态变化,变化情况见表4和表5。统计分析显示,盐度,胁迫时间对两种酶活力存在显著影响,表明盐度和胁迫时间共同调控肝脏CAT、SOD酶活力,且盐度对横带髭鲷肝脏CAT酶活力的影响更显著。盐度5条件下,横带髭鲷肝脏CAT酶活力在胁迫期间显著低于盐度25组;盐度15组CAT酶活力呈现出先升高后回落的趋势;盐度35组CAT酶活力随胁迫时间延长虽有波动,但24、96、108 h显著低于盐度25组。盐度对横带髭鲷肝脏SOD酶活力的影响整体呈现出随胁迫时间延长,先降低后升高的变化趋势,但相较于CAT酶活力随盐度梯度产生的剧烈波动,SOD酶活力在胁迫后期的稳定性更高,对盐度胁迫的响应更弱。
表4 盐度和胁迫时间对横带髭鲷肝脏中CAT酶活力的影响
Tab.4 Influence of salinity and stress time on CAT activity in the liver of Hapalogenys analis U/mg prot
盐度salinity胁迫时间 stress time/h1224487296108523.47±6.28Bbc28.10±7.18Bb28.99±4.30Bab37.45±0.12Aa18.75±4.88Dc21.21±1.97Dbc1522.34±6.84Bab32.30±4.83Ba31.56±6.68Bab32.20±3.36Aa21.67±5.07CDb24.82±3.92CDab2539.15±4.64Aa42.78±1.68Aa44.98±3.96Aa40.95±9.84Aa43.00±1.41Aa40.33±1.28Aa3531.65±6.73ABbc24.67±0.71Bd42.06±0.82Aa34.49±2.76Ab26.48±1.49Bcd28.98±0.78Bbcd
表5 盐度对横带髭鲷肝脏中SOD酶活力的影响
Tab.5 Influence of salinity and stress time on SOD activity in the liver of Hapalogenys analis U/mg prot
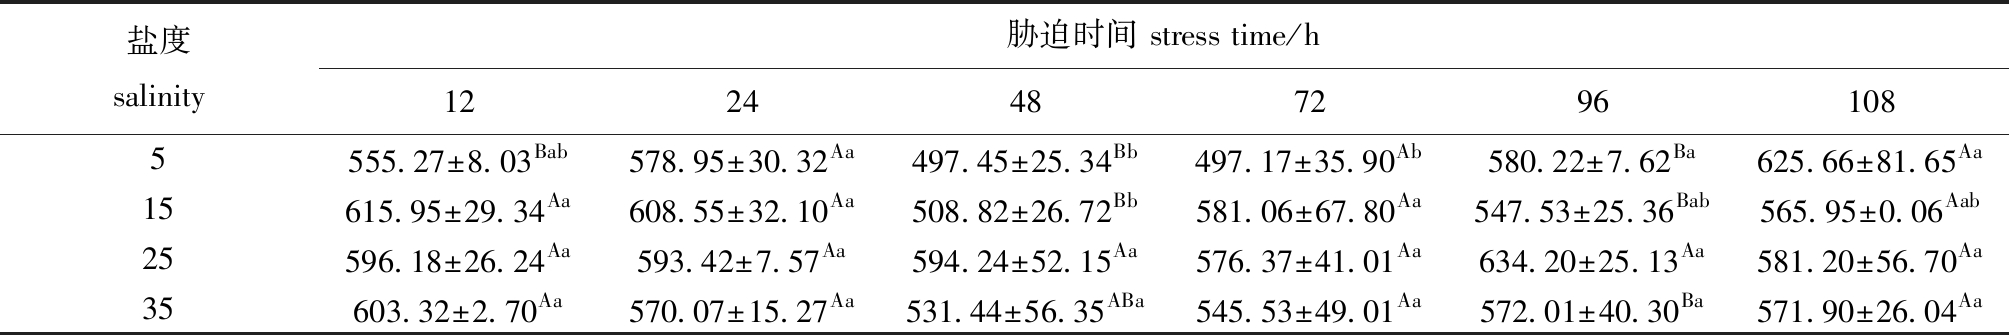
盐度salinity胁迫时间 stress time/h12244872961085555.27±8.03Bab578.95±30.32Aa497.45±25.34Bb497.17±35.90Ab580.22±7.62Ba625.66±81.65Aa15615.95±29.34Aa608.55±32.10Aa508.82±26.72Bb581.06±67.80Aa547.53±25.36Bab565.95±0.06Aab25596.18±26.24Aa593.42±7.57Aa594.24±52.15Aa576.37±41.01Aa634.20±25.13Aa581.20±56.70Aa35603.32±2.70Aa570.07±15.27Aa531.44±56.35ABa545.53±49.01Aa572.01±40.30Ba571.90±26.04Aa
2.4 盐度胁迫后横带髭鲷鳃、肝脏、肾脏、胃和肠道组织的变化
从图1可见,在进行盐度胁迫后,横带髭鲷的鳃、肝脏、肾脏、肠道等组织器官均表现出明显的组织变化。
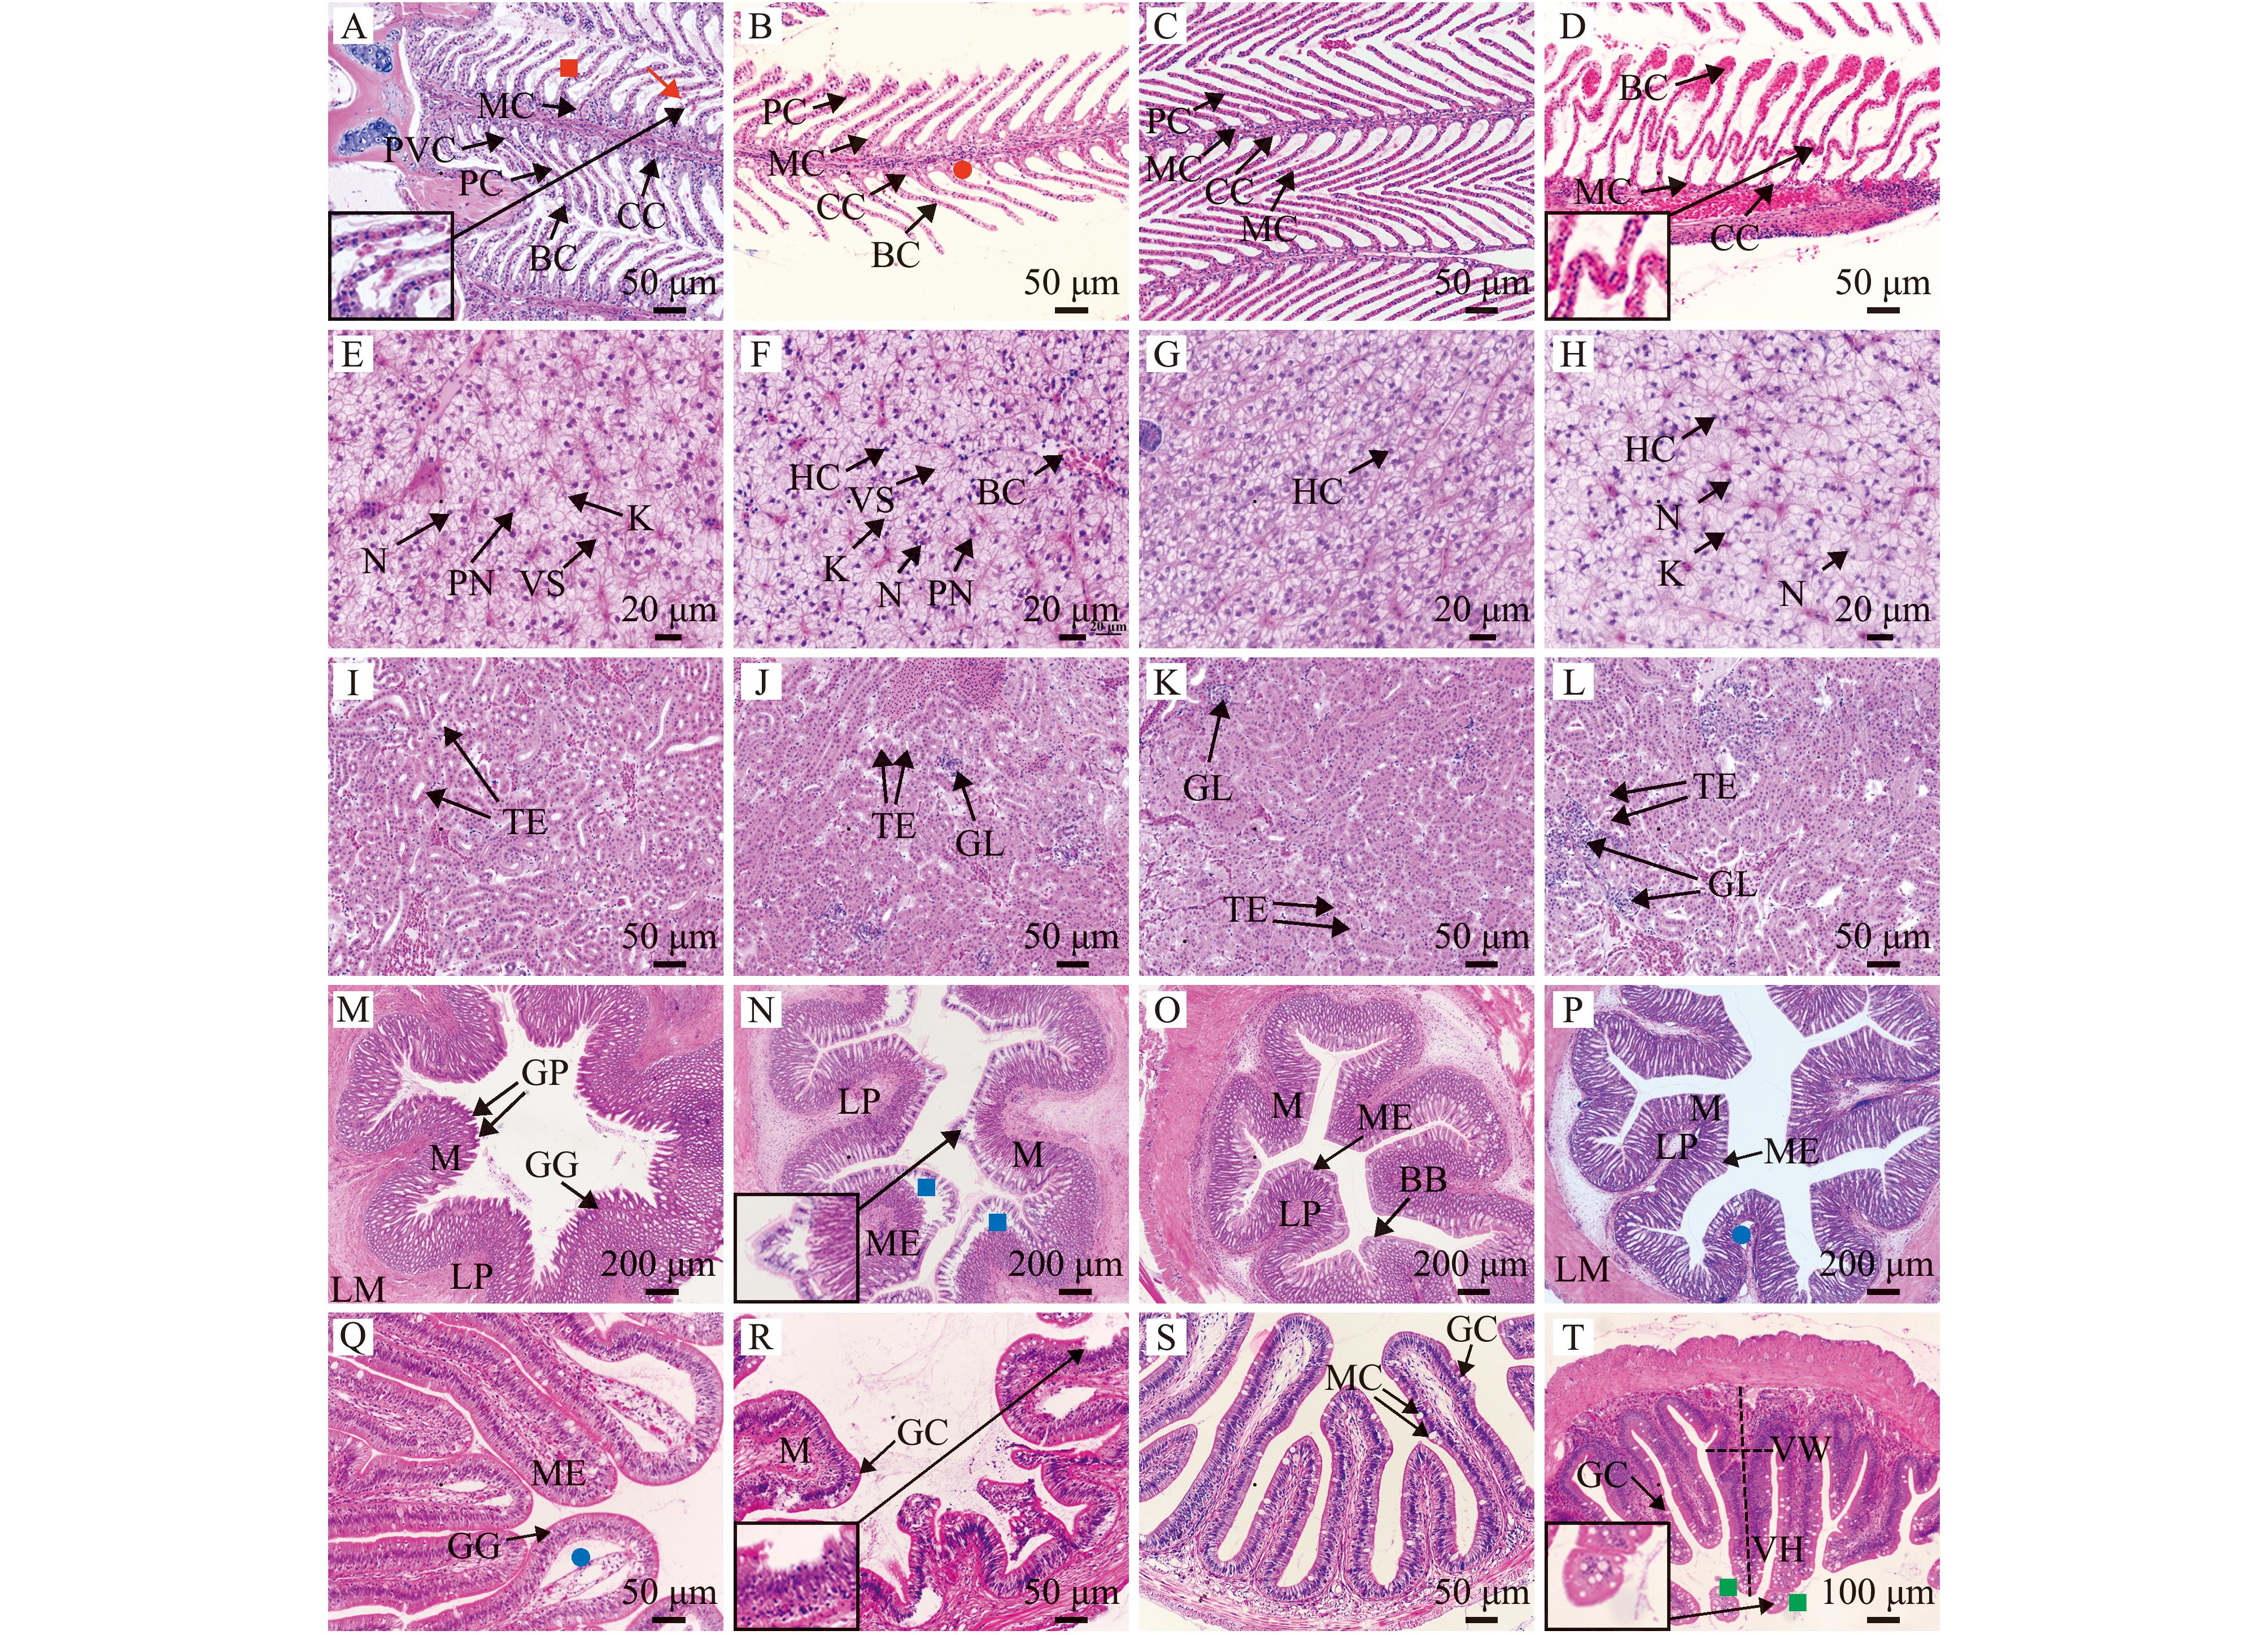
A~D—分别为盐度5、15、25、35组鳃组织切片;E~H—分别为盐度5、15、25、35组肝脏组织切片;I~L—分别为盐度5、15、25、35组肾脏组织切片;M~P—分别为盐度5、15、25、35组胃组织切片;Q~T—分别为盐度5、15、25、35组肠道组织切片。MC—黏液细胞;PVC—扁平上皮细胞;PC—柱细胞;BC—血细胞;CC—泌氯细胞;HC—肝细胞;N—细胞核;VS—细胞空泡;PN—细胞核偏移;K—细胞核溶解;Te—肾小管;Gl—肾小球;M—黏膜层;LP—固有层;LM—肌层;GG—胃腺;GP—胃小凹;BB—纹状缘;GC—杯状细胞;ME—黏膜上层;MC—黏液细胞;VH—绒毛长度;VW—绒毛宽度;→表示毛细血管渗血;■表示扁平上皮细胞破损;●表示黏液增多;■表示黏膜上层分离脱落;●表示黏膜层与固有层分离;■表示绒毛顶端断裂分离。
A-D—gill tissue sections of the 5,15,25,and 35 salinity groups;E-H—liver tissue sections of the 5,15,25,and 35 salinity groups;I-L—kidney tissue sections of the 5,15,25,and 35 salinity groups;M-P—stomach tissue sections of the 5,15,25,and 35 salinity groups;Q-T—intestinal tissue sections of the 5,15,25,and 35 salinity groups.MC—mucous cell;PVC—pavement epithelial cell;PC—pillar cell;BC—blood cell;CC—chloride cell;HC—hepatocyte;N—nucleus;VS—vacuolar space;PN—pycnosis of nucleus;K—karyolysis;Te—renal tubule;Gl—glomerulus;M—mucous layer;LP—lamina propria;LM—muscular layer;GG—gastric gland;GP—gastric pit;BB—brush border;GC—goblet cell;ME—mucosal epithelium;MC—mucous cell;VH—villus height;VW—villus width;→ means capillary hemorrhage;■ means damage of pavement epithelial cells;● means increased mucus;■ means detachment and exfoliation of mucosal epithelial layer;● means separation between mucosa and lamina propria;■ means rupture and dTetachment of villus apex.
图1 横带髭鲷鳃、肝脏、肾脏、胃、肠道组织结构的变化
Fig.1 Histological changes in the gill,liver,kidney,stomach,and intestine of Hapalogenys analis
对不同盐度环境下的横带髭鲷鱼鳃组织进行HE染色。盐度25组中,横带髭鲷的鳃丝排列完整、鳃小片均匀分布在鳃丝两侧,上皮细胞排列有序,起支撑作用的柱细胞和泌氯细胞结构完整,泌氯细胞分布于鳃小片基部(图1C)。而在低盐度条件胁迫下的盐度5、15组,可见鱼的鳃丝血管扩张,鳃小片基部黏液细胞增多,鳃小片表面空泡变多,毛细血管渗血,泌氯细胞的数量减少,鳃小片肿胀,且有部分扁平上皮细胞破碎脱落(图1A、B)。而在高盐度环境胁迫下的盐度35组,可见出现鳃小片扭曲且末端充血膨大,轮廓模糊不清的情况;上皮细胞排列紊乱,泌氯细胞显著增加,细胞结构不完整甚至坏死,出现明显的组织损伤(图1D)。
对不同盐度环境下的横带髭鲷肝脏组织进行HE染色。盐度25组中,肝脏和肝血窦沿中央静脉呈放射状相间排列;肝脏细胞界限明晰且细胞核位于细胞的中央。肝血窦清晰可见,胰脏组织分散于肝脏之间(图1G)。而在低盐度条件胁迫下的盐度5、15组,可见横带髭鲷肝脏细胞核肿胀膨大,部分细胞核溶解消失,细胞核染色质集边(图1E、F)。在高盐度环境胁迫下的盐度35组,大部分肝细胞体积增大,细胞空泡化严重,细胞核偏移、细胞核溶解消失(图1H)。
对不同盐度环境下的横带髭鲷肾脏组织进行HE染色。盐度25组中,横带髭鲷肾脏由肾小球、肾小管、集合管等部分构成。肾小球较小且数量相对少,毛细血管结构不发达,其中的内皮细胞和系膜细胞的细胞核呈蓝紫色;近曲小管、远曲小管等结构排列紧凑(图1K)。而在低盐度条件胁迫下的盐度5、15组,可见肾小管的管腔扩张,且盐度越低,肾小管管腔扩张越明显(图1I、J)。在高盐度环境胁迫下的盐度35组,可见肾脏存在肾小管萎缩现象(图1L)。
对不同盐度环境下的横带髭鲷鱼胃组织进行HE染色,盐度25组中,胃小凹发达,深浅差异较明显;胃腺发达,呈长管状;肌肉层较薄(图1O)。盐度5组横带髭鲷胃黏膜上皮几乎被完全破坏,其内部空腔和正常盐度条件下进行对比相对较大,且其黏膜褶皱突起程度低(图1M)。盐度15组横带髭鲷胃也发生明显组织变化,可见胃黏膜上皮存在部分分离脱落现象(图1N)。盐度35组,横带髭鲷胃黏膜层与固有层分离,但黏膜层形态与正常盐度条件下差别不大(图1P)。
对不同盐度环境下的横带髭鲷肠道组织进行HE染色。盐度25组中,横带髭鲷肠道绒毛排列整齐,细胞间连接紧密,细胞结构完整。细胞游离面的微绒毛形成淡红色的纹状缘(图1S)。盐度5组横带髭鲷肠道黏膜层与固有层之间出现空隙,肠道绒毛明显肿胀,间隙变小(图1Q)。盐度15组肠绒毛皱缩变短,绒毛黏膜层有部分裂解脱落现象(图1R)。盐度35组中肠道柱状细胞数量增多,肠绒毛顶端肿胀、断裂和坏死等现象严重,杯状细胞异常增生(图1T)。
盐度偏离 24~26 最适区间的变化方向,与受试生物各器官组织结构损伤趋势显著相关;其中 25 盐度处理组所有器官组织结构均完整无异常。整体来看,盐度偏离最适范围越远,组织损伤程度越严重,且低盐与高盐胁迫导致的损伤类型存在明显差异,反映横带髭鲷对不同方向盐度胁迫的组织结构适应机制不同。
3 讨论
3.1 盐度胁迫对横带髭鲷行为活跃性及应激反应的影响
已有研究表明,盐度波动显著影响鱼类的繁殖、生长、发育及生理和代谢活动[17]。行为是生物个体对外界刺激的可视化反应,是生物内在因素和外在非生物因素共同作用的结果。非洲胡子鲶(Clarias gariepinus)随环境中盐度的增加,会出现如不规则游泳、倒立、平衡丧失等明显的异常行为应激反应[18]。扁吻鱼(Aspiorhynchus laticeps)在高盐碱胁迫下会出现窜游加急、惊跳、贴壁上窜现象[19]。红罗非鱼(Red Tilmpa)会因海水盐度的突变而躁动不安、快速游动,并随胁迫时间的延长而变得不活跃甚至死亡[20]。在本研究中,横带髭鲷在行为反应方面,低盐5组初期背鳍竖立、急游及跃出水面是典型的急性应激,而随后体表大量分泌黏液及呼吸减慢,机体通过增强物理屏障和降低代谢速率来减少低渗环境下的水分入渗。反复呕吐动作则反应出低盐胁迫已触及消化系统的生理耐受极限。高盐35组试验鱼则出现身体僵硬及对外界刺激反应迟钝,这可能是高盐环境下机体剧烈失水导致离子平衡紊乱,进而影响神经传导与肌肉收缩。盐度15组中的横带髭鲷应激反应稍弱且能较快适应,说明盐度15处于横带髭鲷的生理代偿安全区间,横带髭鲷对相对温和的盐度变化具有一定调节能力。横带髭鲷在不同盐度梯度下表现出的行为差异,揭示了该物种对环境渗透压波动的生理适应幅度。
在机体应对压力时,下丘脑-垂体-肾上腺(HPI)轴被激活,促使皮质醇分泌增加。因此皮质醇在一定程度上能够反映机体所承受压力的状况,所以常被用作压力生物标志物。当鱼类遇到盐度超出其生理适应范围时,会消耗能量进行渗透调节以维持体内渗透平衡,这可能导致皮质醇水平升高[21]。本研究中盐度35组横带髭鲷幼鱼皮质醇质量浓度显著高于盐度25组,表明在该盐度下横带髭鲷应激压力大,鱼体需持续激活皮质醇介导的应激通路以协调能量分配,导致皮质醇浓度显著升高。随着时间延长,这些盐度组皮质醇质量浓度逐渐增加,这是因为盐度胁迫是一种长期存在的应激源,表明盐度胁迫持续作用下,鱼体的应激逐渐增强,促使HPI轴持续分泌皮质醇以应对长期环境压力。盐度25组皮质醇质量浓度相对稳定,证实该盐度未对其造成明显应激性渗透压失衡。然而,本研究中盐度5组皮质醇浓度低于盐度25组的原因尚不明确,这可能与横带髭鲷对低盐环境的特异性耐受性有关。推测其在低盐环境下通过非皮质醇依赖的渗透压调节途径维持内环境稳定,具体机制需结合离子转运蛋白活性、激素受体表达等指标进一步探究。一些广盐性鱼类虽在盐度变化时有类似行为与皮质醇分泌变化,但不同鱼类耐受盐度范围与应激反应阈值有别。如河口鱼类能在更宽盐度区间快速适应且应激反应弱,其长期生活在盐度波动大的河口环境,故进化出更高效的渗透压调节与应激应对策略。横带髭鲷作为特定生态习性的海洋鱼类,其盐度胁迫反应特征反映其在海洋生态系统中的生态位特点。
3.2 盐度胁迫对横带髭鲷鳃Na+/K+-ATP酶的影响
鱼类水环境中的渗透压调节主要依赖鳃丝泌氯细胞,其表面富含的Na+/K+-ATP酶(NKP)能够水解ATP为离子转运供能,维持细胞内离子稳态[22]。在盐度胁迫条件下,Na+/K+-ATP酶活力会发生明显变化。通常当鱼体处于等渗环境下,机体的代谢耗能最少,Na+/K+-ATP酶活性也最低[23]。卵形鲳鲹幼鱼在高渗环境中的鳃丝Na+/K+-ATP酶活性显著升高[24];花鲈在盐度降低的过程中,Na+/K+-ATP酶活力显著下降[25]。但是在本研究中,发现横带髭鲷在低盐度环境中鳃丝的Na+/K+-ATP酶活力最低,且显著低于其在正常盐度及高盐度环境中的Na+/K+-ATP酶活力。结合横带髭鲷的生理特性推测其为适应生存环境的盐度变化,降低了鳃丝中Na+/K+-ATP酶的活力,进而减少了细胞对Na+、Cl-离子的通透性,抑制了Na+、Cl-离子的流动。本研究结果在一定程度上显示,横带髭鲷在低盐环境下渗透代谢的耗能较低。另外,从渗透代谢角度来看,相较于高盐度环境,低盐环境或更利于横带髭鲷生存。
3.3 盐度胁迫对横带髭鲷肝脏中抗氧化酶活力的影响
当鱼类遭受到盐度胁迫时,会触发应激反应并生成过量ROS,导致机体内源性自由基代谢失衡,进而引发氧化应激[26]。SOD能够高效清除超氧阴离子自由基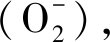 在清除过程中产生的过氧化氢(H2O2),则在CAT的催化作用下被转化[27]。SOD与CAT相互协作,使肝脏组织免受氧化胁迫的损害。与淡水胁迫下多鳞四指马鲅(Eleutheronema rhadinum)幼鱼酶活性变化类似[28],盐度5、15、35组横带髭鲷CAT酶活力显著低于盐度25组。急性盐度胁迫导致横带髭鲷体内氧自由基持续积累,抗氧化酶活性代偿性升高若仍无法有效抑制细胞内氧化损伤,自由基清除效率会显著下降,最终可能引发抗氧化系统功能衰竭。在高盐度环境及低盐度环境下,横带髭鲷SOD酶活力整体呈现出先降低后升高的变化趋势,随后迅速回升至正常水平。这与云纹石斑鱼(Epinehelus moara)[29]、金钱鱼(Scatophagus argus)[30]中的研究结果相一致。较大幅度的急性盐度波动引起肝脏的应激反应,短期内抑制了SOD活性,随后清除过多的活性氧自由基,SOD活力升高。
3.4 盐度胁迫对横带髭鲷组织结构的影响
当鱼类适应盐度胁迫环境时,会通过多种代谢变化来适应盐度的波动,如鳃、肾和肠等渗透调节器官会产生结构的变化[31]。
广盐性鱼类在由淡水转入海水环境的过程中,其鳃结构和生理机能发生了显著的适应性改变,其中鳃丝的上皮细胞中泌氯细胞的数量、分布、内部结构变化尤为明显[32-33]。盐度胁迫对鱼类鳃组织结构的影响主要表现为泌氯细胞、鳃小片结构异常和其他组织损伤与病理变化。如珍珠龙胆石斑鱼中泌氯细胞直径随盐度升高而增大[34];高盐胁迫下四指马鲅(Eleutheronema tetradactylum)的鳃小片上皮细胞分离脱落[35];低盐胁迫下松江鲈(Trachidermus fasciatus)的鳃小片末端变小、弯曲[36];红罗非鱼的鳃组织基底增生和毛细血管扩张[20]等。本研究中发现,低盐度环境胁迫主要导致横带髭鲷鳃小片生理性水肿;而高盐度胁迫下则表现为更加严重的结构完整性丧失。
当水体盐度变化超出鱼类的生理调节范围时,其渗透压平衡机制将面临严峻挑战,肝脏作为关键的代谢与调节器官,通常出现结构和功能上的病理改变。大麻哈鱼(Oncorhynchus keta)幼鱼在低盐度环境下,肝脏也表现出严重的细胞空泡化[37]。类似的,在本研究中,低盐度环境下横带髭鲷肝脏细胞核肿胀膨大,部分细胞核溶解消失,细胞核染色质集边。而高盐35环境胁迫下,出现肝细胞体积增大,细胞空泡化严重,细胞核偏移、细胞核溶解消失等现象。对于盐度胁迫下观察到的空泡化现象,有观点认为可能是肝糖原被大量动员用于渗透压调节,或是其代谢与合成的平衡被胁迫打乱[38]。作为广盐性鱼类,横带髭鲷在低盐度环境中高能耗的代谢需求可能导致肝细胞内物质合成与释放速率失衡,进而引发组织结构异常。其适应机制涉及激素调节增强糖酵解途径,促使肝糖原在肝细胞内大量积累,最终导致肝细胞空泡化或肿大[39]。
肾脏作为鱼类渗透压调节的关键器官,其组织结构会随环境盐度变化而发生适应性改变,以维持机体内环境稳态[34]。在低盐度环境中,鱼体内渗透压高于外界,为排出进入鱼体的多余水分,肾脏活动增强,表现为肾小管管腔扩张,且扩张程度随盐度降低而加剧[40]。如红鳍东方鲀(Takifugu rubripes)在低盐胁迫下即观察到显著的肾小球膨大和肾小管管径增大现象。相反,在高盐度环境下,鱼体面临失水风险,肾脏排水需求降低,长期适应后可能出现肾小管萎缩等退化现象[41]。相关研究显示,盐度胁迫的强度直接影响肾脏损伤程度,与低盐度胁迫相比,高盐度胁迫往往引发更严重的肾脏组织结构损伤[42]。如绿鳍马面鲀(Thamnaconus septentrionalis)在极端高盐条件下不仅出现肾小管扩张和肾小囊膨大,甚至出现肾小管和肾小球坏死[42],进一步表明肾脏结构变化与盐度胁迫的强度和方向密切相关。
广盐性鱼类能在一定范围内调整胃组织结构来适应盐度波动,但其适应能力也存在极限。花鲈幼鱼胃黏膜上皮在低盐度条件下较厚,胃黏膜皱褶较发达、胃小凹较高盐度组发达;在高盐度条件下胃黏膜上皮变薄,胃腺细胞增多且变大[43]。长期处于不适盐度环境中,鱼胃组织结构损伤会不断积累,影响其生长、发育和健康。横带髭鲷在低盐度胁迫下时,胃黏膜上皮几乎完全被破坏,内部空腔大,黏膜褶皱突起低;在高盐度胁迫下,胃黏膜层与固有层分离,但黏膜层形态与正常盐度时差别不大。本研究结果表明,无论是低盐度还是高盐度都会在横带髭鲷的胃部引发明显的组织学变化。
鱼类肠道除吸收营养物质供机体新陈代谢外,在渗透调节中也发挥重要的作用,其有效吸收液体的能力对于补偿高渗环境中的水分流失至关重要。盐度胁迫通过改变肠道上皮细胞形态与分泌细胞分布影响鱼类消化功能,低盐环境红鳍东方鲀幼鱼肠绒毛的柱状上皮细胞层增厚,同时杯状细胞数量显著减少[41]。在本研究中,无论是低盐还是高盐环境,都在不同程度上干扰了肠道的正常结构和功能。本研究中高盐度胁迫下肠道绒毛上杯状细胞的异常增生可能是鱼类为应对高渗环境的一种代偿性反应,杯状细胞大量增生,能够分泌更多的黏液,减少高盐对肠道上皮细胞的直接刺激与损伤。结合盐度胁迫对横带髭鲷胃组织的损伤,可以认为急性盐度胁迫对横带髭鲷的消化功能和整体健康均有重要影响。
4 结论
1)横带髭鲷幼鱼对盐度波动表现出显著的行为适应性差异。其维持生理稳态的最适盐度为25,在该环境下幼鱼摄食与游动状态最为稳定。低盐5和高盐35胁迫则导致应激行为反应。盐度15处于盐度安全区间,幼鱼表现出极强的调节与适应能力。
2)肝脏抗氧化酶系统在盐度5和35下CAT酶活性均受到显著抑制,自由基清除效率受阻。相比之下,SOD酶表现出更强的稳态保护能力,各组在胁迫中后期通过先降低后升高的代偿性调节,最终使酶活力趋于稳定,反映了横带髭鲷具备一定的生理代偿潜力以应对中短期盐度波动。
3)急性盐度胁迫对横带髭鲷幼鱼的器官结构具有显著损害作用。鳃与肝脏是盐度应激最主要的受累器官,其损伤程度随盐度偏离最适区间的幅度增加而加剧。极端盐度胁迫会导致器官结构发生不可逆的病理改变。
[1] DILDART,CUI W X,IKHWANUDDIN M,et al.Aquatic organisms in response to salinity stress:ecological impacts,adaptive mechanisms,and resilience strategies[J].Biology,2025,14(6):667.
[2] 王轲翔,田涛,岳跃,等.pH急性胁迫对许氏平鲉幼鱼生理及群体行为的影响[J].中国水产科学,2024,31(10):1163-1173.WANG K X,TIAN T,YUE Y,et al.Effects of acute pH stress on physiology and group behavior of juveniles Sebastes schlegelii[J].Journal of Fishery Sciences of China,2024,31(10):1163-1173.(in Chinese)
[3] 付成,彭姜岚,付世建.温度对宽鳍鱲运动能力和行为特征的影响[J].生态学杂志,2018,37(6):1889-1896.FU C,PENG J L,FU S J.Effects of acclimation temperature on locomotion performance and behavior of pale chub[J].Chinese Journal of Ecology,2018,37(6):1889-1896.(in Chinese)
[4] NORDLIE F G.Environmental influences on regulation of blood plasma/serum components in teleost fishes:a review[J].Reviews in Fish Biology and Fisheries,2009,19(4):481-564.
[5] LUSHCHAK V I.Environmentally induced oxidative stress in aquatic animals[J].Aquatic Toxicology,2011,101(1):13-30.
[6] VAHDATIRAAD L,HEIDARI B,ZAREI S,et al.Biological responses of stellate sturgeon fingerlings (Acipenser stellatus) immersed in HSP inducer to salinity changes[J].Marine Environmental Research,2023,191:106145.
[7] TIAN L,TAN P,YANG L,et al.Effects of salinity on the growth,plasma ion concentrations,osmoregulation,non-specific immunity,and intestinal microbiota of the yellow drum (Nibea albiflora)[J].Aquaculture,2020,528:735470.
[8] ALI RAZA G,GHAFFAR A,HUSSAIN R,et al.Nuclear and morphological alterations in erythrocytes,antioxidant enzymes,and genetic disparities induced by brackish water in mrigal carp (Cirrhinus mrigala)[J].Oxidative Medicine and Cellular Longevity,2022,2022:4972622.
[9] LEE K M,KANEKO T,KATOH F,et al.Prolactin gene expression and gill chloride cell activity in Fugu Takifugu rubripes exposed to a hypoosmotic environment[J].General and Comparative Endocrinology,2006,149(3):285-293.
[10] BODINIER C,LORIN-NEBEL C,CHARMANTIER G,et al.Influence of salinity on the localization and expression of CFTR chloride channel in the ionocytes of the European sea-bass Dicentrarchus labrax during ontogeny[J].Comparative Biochemistry and Physiology Part A:Molecular &Integrative Physiology,2008,150(3):S109.
[11] FLIKG,KLAREN P H M,VAN DEN BURG E H,et al.CRF and stress in fish[J].General and Comparative Endocrinology,2006,146(1):36-44.
[12] RIDGWAY M R,TUNNAH L,BERNIER N J,et al.Novel spikey ionocytes are regulated by cortisol in the skin of an amphibious fish[J].Proceedings Biological Sciences,2021,288(1965):20212324.
[13] 平洪领,张涛,史会来,等.横带髭鲷早期生长发育特征[J].中国水产科学,2021,28(3):276-287.PING H L,ZHANG T,SHI H L,et al.Morphometric characteristics of the embryonic and postembryonic development of belted beard grunts,Hapalogenys mucronatus[J].Journal of Fishery Sciences of China,2021,28(3):276-287.(in Chinese)
[14] 平洪领,张涛,史会来,等.浙江近海横带髭鲷(Hapalogenys mucronatus)表型性状与体重的通径分析及曲线拟合[J].海洋与湖沼,2023,54(4):1199-1206.PING H L,ZHANG T,SHI H L,et al.Path analysis and curve fitting of phenotypic traits and body weight of Hapalogenys mucronatus in Zhejiang offshore[J].Oceanologia et Limnologia Sinica,2023,54(4):1199-1206.(in Chinese)
[15] 宋晨,许丽婷,王晓波,等.浙江舟山海域大型底栖动物群落组成及主要影响因子分析[J].海洋与湖沼,2022,53(6):1585-1597.SONG C,XU L T,WANG X B,et al.Composition and main environmental factors of macrobenthos community in sea area of Zhoushan islands,Zhejiang[J].Oceanologia et Limnologia Sinica,2022,53(6):1585-1597.(in Chinese)
[16] 邹京华,史会来,平洪领,等.循环水养殖横带髭鲷内脏白点病组织病理观察和超微病理分析[J].中国水产科学,2024,31(10):1249-1258.ZOU J H,SHI H L,PING H L,et al.Observation of visceral white spot disease tissue pathology and ultrastructural pathological analysis in recirculating aquaculture of Hapalogenys mucronatus[J].Journal of Fishery Sciences of China,2024,31(10):1249-1258.(in Chinese)
[17] YI H D,CHEN X L,LIUS,et al.Growth,osmoregulatory and hypothalamic-pituitary-somatotropic (HPS) axis response of the juvenile largemouth bass (Micropterus salmoides),reared under different salinities[J].Aquaculture Reports,2021,20:100727.
[18] ZIDAN EM,GOMA A A,TOHAMY H G,et al.Insight study on the impact of different salinity levels on behavioural responses,biochemical stress parameters and growth performance of African catfish (Clarias gariepinus)[J].Aquaculture Research,2022,53(7):2750-2759.
[19] 王新月,訾方泽,葛建民,等.盐碱胁迫下扁吻鱼幼鱼耐受性分析[J].新疆农业科学,2023,60(6):1540-1547.WANG X Y,ZI F Z,GE J M,et al.Analysis on the tolerance of juvenile Aspiorhynchus laticeps(Day) under salinity and alkalinity stresses[J].Xinjiang Agricultural Sciences,2023,60(6):1540-1547.(in Chinese)
[20] HUANG R S,TAO Y F,JIANG B J,et al.Integrated gill transcriptome and biochemical indices analyses reveal that acute salinity stress induces oxidative stress and immune and metabolic disorders in Red Tilapia (Oreochromis spp.)[J].Aquaculture,2025,599:742108.
[21] ABD EL-HACK M E,EL-SAADONY M T,NADER MM,et al.Effect of environmental factors on growth performance of Nile tilapia (Oreochromis niloticus)[J].International Journal of Biometeorology,2022,66(11):2183-2194.
[22] 章龙珍,罗集光,赵峰,等.盐度对点篮子鱼血清渗透压、离子含量及鳃丝Na+/K+-ATP酶活力的影响[J].海洋渔业,2015,37(5):449-456.ZHANG L Z,LUO J G,ZHAO F,et al.Influence of salinity on serum osmolarity,ion content and gill Na+,K+-ATPase activity of Siganus guttatas[J].Marine Fisheries,2015,37(5):449-456.(in Chinese)
[23] GAUMET F,BOEUF G,SEVERE A,et al.Effects of salinity on the ionic balance and growth of juvenile turbot[J].Journal of Fish Biology,1995,47(5):865-876.
[24] 范春燕,区又君,李加儿,等.急性盐度胁迫对卵形鲳鲹幼鱼Na+-K+-ATP酶活性和渗透压的影响[J].台湾海峡,2012,31(2):218-224.FAN C Y,OU Y J,LI J E,et al.Effects of acute salinity stress on Na + -K + -ATP and osmotic pressure of juvenile Trachinotus ovatus[J].Journal of Oceanography in Taiwan Strait,2012,31(2):218-224.(in Chinese)
[25] 张晓燕,温海深,张凯强,等.花鲈等渗点分析及海水淡化对Na+/K+/Cl-浓度、Na+-K+-ATP酶活性及基因表达的影响[J].水产学报,2018,42(8):1199-1208.ZHANG X Y,WEN H S,ZHANG K Q,et al.Analysis of the isotonic point and effects of seawater desalination on the Na+/K+/Cl- concentration,Na+-K+-ATPase activity and relative gene expressions in Lateolabrax maculatus[J].Journal of Fisheries of China,2018,42(8):1199-1208.(in Chinese)
[26] MART NEZ-
 LVAREZ RM,MORALES A E,SANZ A.Antioxidant defenses in fish:biotic and abiotic factors[J].Reviews in Fish Biology and Fisheries,2005,15(1/2):75-88.
[27] TAO Y F,HUA J X,LU S Q,et al.Ultrastructural,antioxidant,and metabolic responses of male genetically improved farmed tilapia (GIFT,Oreochromis niloticus) to acute hypoxia stress[J].Antioxidants,2024,13(1):89.
[28] 张琴星,张涛,侯俊利,等.盐度变化对多鳞四指马鲅幼鱼鳃丝Na+/K+-ATP酶及肝脏抗氧化酶活性的影响[J].海洋渔业,2013,35(3):324-330.ZHANG Q X,ZHANG T,HOU J L,et al.Effects of salinity on activities of gill Na+/K+-ATPase and liver antioxidase in juvenile Eleutheronema rhadinum[J].Marine Fisheries,2013,35(3):324-330.(in Chinese)
[29] 廖雅丽,张晨捷,彭士明,等.盐度对云纹石斑鱼抗氧化酶及溶菌酶活性的影响[J].上海海洋大学学报,2016,25(2):169-176.LIAO Y L,ZHANG C J,PENG S M,et al.Effects of salinity on activities of liver antioxidant enzymes and plasma lysozyme of Epinehelus moara[J].Journal of Shanghai Ocean University,2016,25(2):169-176.(in Chinese)
[30] 孙雪娜,冯广朋,刘鉴毅,等.盐度骤变对金钱鱼幼鱼抗氧化状态的影响[J].海洋渔业,2021,43(6):661-670.SUN X N,FENG G P,LIU J Y,et al.Effects of abrupt salinity changes on antioxidant status of juvenile Scatophagus argus[J].Marine Fisheries,2021,43(6):661-670.(in Chinese)
[31] KOMBAT E O,ABAKARI G,ALHASSAN E H,et al.Effect of acute and chronic salinity exposure on the amino acid composition in muscle,intestine and gill tissues of Nile tilapia (Oreochromis niloticus)[J].Aquaculture,2023,570:739406.
[32] DABORN K,COZZI RR F,MARSHALL W S.Dynamics of pavement cell-chloride cell interactions during abrupt salinity change in Fundulus heteroclitus[J].Journal of Experimental Biology,2001,204(11):1889-1899.
[33] MARTNEZ-LVAREZ R M,SANZ A,GARCA-GALLEGO M,et al.Adaptive branchial mechanisms in the sturgeon Acipenser naccarii during acclimation to saltwater[J].Comparative Biochemistry and Physiology Part A:Molecular &Integrative Physiology,2005,141(2):183-190.
[34] 刘龙龙,罗鸣,陈傅晓,等.盐度对珍珠龙胆石斑鱼幼鱼生长及鳃肾组织学结构的影响[J].大连海洋大学学报,2019,34(4):505-510.LIU L L,LUO M,CHEN F X,et al.Effects of salinity on growth,and gill and kidney histological structures of juvenile pearl gentian grouper[J].Journal of Dalian Ocean University,2019,34(4):505-510.(in Chinese)
[35] 牛莹月,罗志平,区又君,等.不同盐度对四指马鲅幼鱼存活及鳃组织形态变化的影响[J].南方农业学报,2021,52(6):1719-1726.NIU Y Y,LUO Z P,OU Y J,et al.The survival and structural changes in gill of juvenile Eleutheronema tetradactylum under different salinities[J].Journal of Southern Agriculture,2021,52(6):1719-1726.(in Chinese)
[36] 徐建,胡望娇,冯广朋,等.淡水驯化对松江鲈幼鱼鳃组织结构的影响[J].广东农业科学,2024,51(8):115-124.XU J,HU W J,FENG G P,et al.Effects of freshwater acclimation on gill tissue structure of juvenile Trachidermus fasciatus[J].Guangdong Agricultural Sciences,2024,51(8):115-124.(in Chinese)
[37] 刘伟,支兵杰,战培荣,等.盐度对大麻哈鱼幼鱼血液生化指标及肝组织的影响[J].应用生态学报,2010,21(9):2411-2417.LIU W,ZHI B J,ZHAN P R,et al.Effects of salinity on haematological biochemistrical indices and liver tissue in juvenile Oncorhynchus keta[J].Chinese Journal of Applied Ecology,2010,21(9):2411-2417.(in Chinese)
[38] 徐淑玉,区又君,温久福,等.急性淡水胁迫对四指马鲅幼鱼鳃、心脏、脾脏和肝脏组织结构的影响[J].广东农业科学,2023,50(5):121-131.XU S Y,OU Y J,WEN J F,et al.Effects of acute freshwater stress on tissue structure of gill,heart,spleen and liver of juvenile Eleutheronema tetradactylum[J].Guangdong Agricultural Sciences,2023,50(5):121-131.(in Chinese)
[39] KÜLTZ D.Physiological mechanisms used by fish to cope with salinity stress[J].Journal of Experimental Biology,2015,218(12):1907-1914.
[40] 张子阳,成永旭,李凤辉,等.盐度对绿鳍马面鲀存活、抗氧化酶及组织结构的影响[J].海洋科学,2024,48(3):85-94.ZHANG Z Y,CHENG Y X,LI F H,et al.Effect of salinity on survival,antioxidant enzymes and tissue structure of Thamnaconus septentrionalis[J].Marine Sciences,2024,48(3):85-94.(in Chinese)
[41] 孙梦蕾,蒋洁兰,王莉苹,等.低盐胁迫下红鳍东方鲀幼鱼鳃、肾和肠组织结构的变化[J].广东海洋大学学报,2016,36(6):38-43.SUN M L,JIANG J L,WANG L P,et al.Structural changes in gill,kidney and intestine of juvenile Takifugu rubripes under low salinity treatment[J].Journal of Guangdong Ocean University,2016,36(6):38-43.(in Chinese)
[42] ALI A,AZOM M G,SARKER B S,et al.Repercussion of salinity on hematological parameters and tissue morphology of gill and kidney at early life of tilapia[J].Aquaculture and Fisheries,2024,9(2):256-264.
[43] 温久福,蓝军南,周慧,等.不同盐度对花鲈幼鱼消化器官组织结构的影响[J].南方农业学报,2019,50(12):2826-2832.WEN J F,LAN J N,ZHOU H,et al.Effects of different salinities on histological structure of digestive organs of juvenile Lateolabrax maculatus[J].Journal of Southern Agriculture,2019,50(12):2826-2832.(in Chinese)