CRISPR序列最早于1987年在大肠杆菌基因组中被发现,当时研究者仅将其描述为一段规律排列的重复DNA结构,对于其生物学功能尚缺乏认识[1]。随后近二十年的研究表明,该序列由高度保守的重复序列和来源于噬菌体或质粒的间隔序列构成。2002年,研究者正式提出“规律间隔成簇短回文重复(clustered regularly interspaced short palindromic repeats,CRISPR)”这一概念,并鉴定出一系列与之相关的CRISPR相关蛋白(CRISPR-associated proteins,Cas),标志着CRISPR/Cas系统作为一个完整遗传单位被提出[2]。2005—2007年的研究进一步发现,CRISPR间隔序列与入侵噬菌体和质粒DNA具有高度同源性。这些结果表明,CRISPR/Cas系统能够在基因组水平“记忆”外源核酸,并在再次入侵时介导特异性识别和降解,从而构成原核生物的一类适应性免疫系统[3-4]。这一认识为后续将CRISPR/Cas系统开发为可编程基因编辑工具奠定了免疫学与分子生物学基础。
2012年,研究者首先在体外重构了源自链球菌的CRISPR/Cas9系统,证明在天然crRNA和tracrRNA的引导下,Cas9可以对特定靶DNA产生PAM依赖的双链切割。在此基础上,研究人员进一步将这两种RNA的功能整合为单一向导RNA(single guide RNA,sgRNA),并证实预组装的Cas9-sgRNA复合物同样能够在体外实现对靶序列的特异性双链DNA切割[5]。2013年,CRISPR/Cas9系统首次在哺乳动物细胞和人类细胞中成功完成基因组编辑,验证了其在真核细胞中的通用性[6-7]。同一时期,研究者在斑马鱼(Danio rerio)等模式鱼类的受精卵中也建立了基于显微注射的胚胎期基因编辑体系,使CRISPR/Cas9迅速成为水生动物功能基因组学和性状改良研究的重要工具[7]。
为便于概览CRISPR/Cas技术的发展脉络,其主要时间节点可概括如下(表1)。
表1 CRISPR的时间图谱
Tab.1 CRISPR timeline
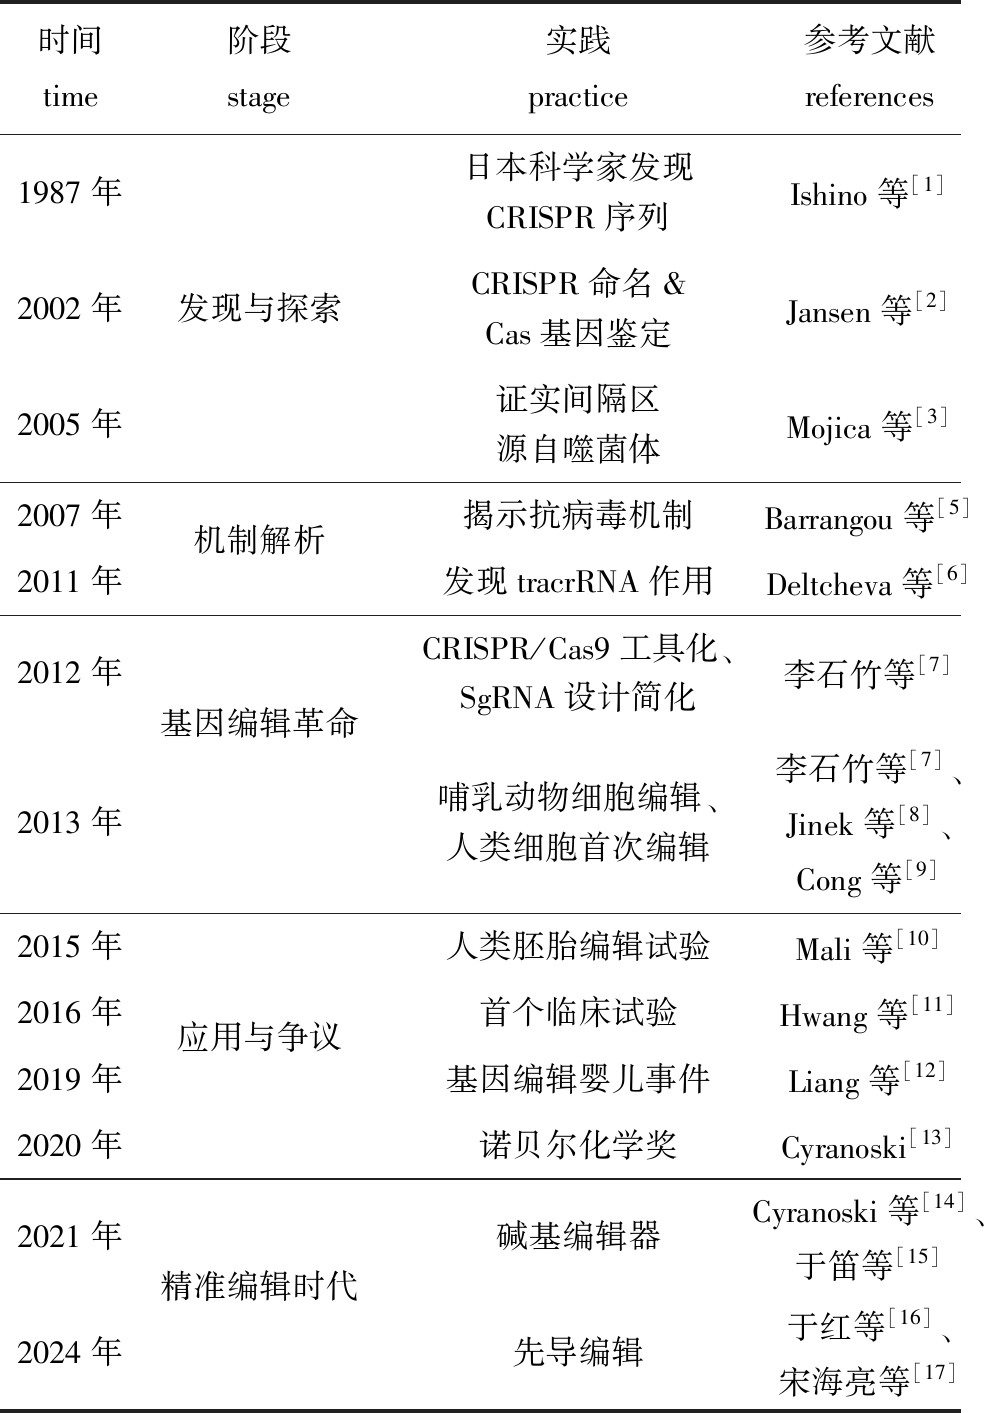
时间time阶段stage实践practice参考文献references1987年日本科学家发现CRISPR序列Ishino等[1]2002年发现与探索CRISPR命名&Cas基因鉴定Jansen等[2]2005年证实间隔区源自噬菌体Mojica等[3]2007年机制解析揭示抗病毒机制Barrangou等[5]2011年发现tracrRNA作用Deltcheva等[6]2012年基因编辑革命CRISPR/Cas9工具化、SgRNA设计简化李石竹等[7]2013年哺乳动物细胞编辑、人类细胞首次编辑李石竹等[7]、Jinek等[8]、Cong等[9]2015年人类胚胎编辑试验Mali等[10]2016年应用与争议首个临床试验Hwang等[11]2019年基因编辑婴儿事件Liang等[12]2020年诺贝尔化学奖Cyranoski[13]2021年精准编辑时代碱基编辑器Cyranoski等[14]、于笛等[15]2024年先导编辑于红等[16]、宋海亮等[17]
在时间轴不断延伸的过程中,CRISPR/Cas技术也在分子工具层面持续演进。经典的链球菌Cas9(SpCas9)依赖NGG原型间隔邻近基序(protospacer adjacent motif,PAM),这一限制显著缩小了可靶向的基因组区域[5]。为解决这一问题,研究者通过蛋白工程构建出多种宽PAM变体,如可识别NG PAM的SpCas9-NG、PAM识别谱更宽的xCas9-3.7,以及在斑马鱼等模式动物中表现出接近“NGN”甚至近乎无PAM限制的SpG和SpRY等变体[8-10]。这些变体在多个物种中表现出可接受的编辑效率和特异性,大幅扩展了基因组靶点空间,减少了因PAM不可用而被迫更换靶序列的情况,为针对关键功能位点的精准操作提供了更多选择。
1 CRISPR/Cas系统分类
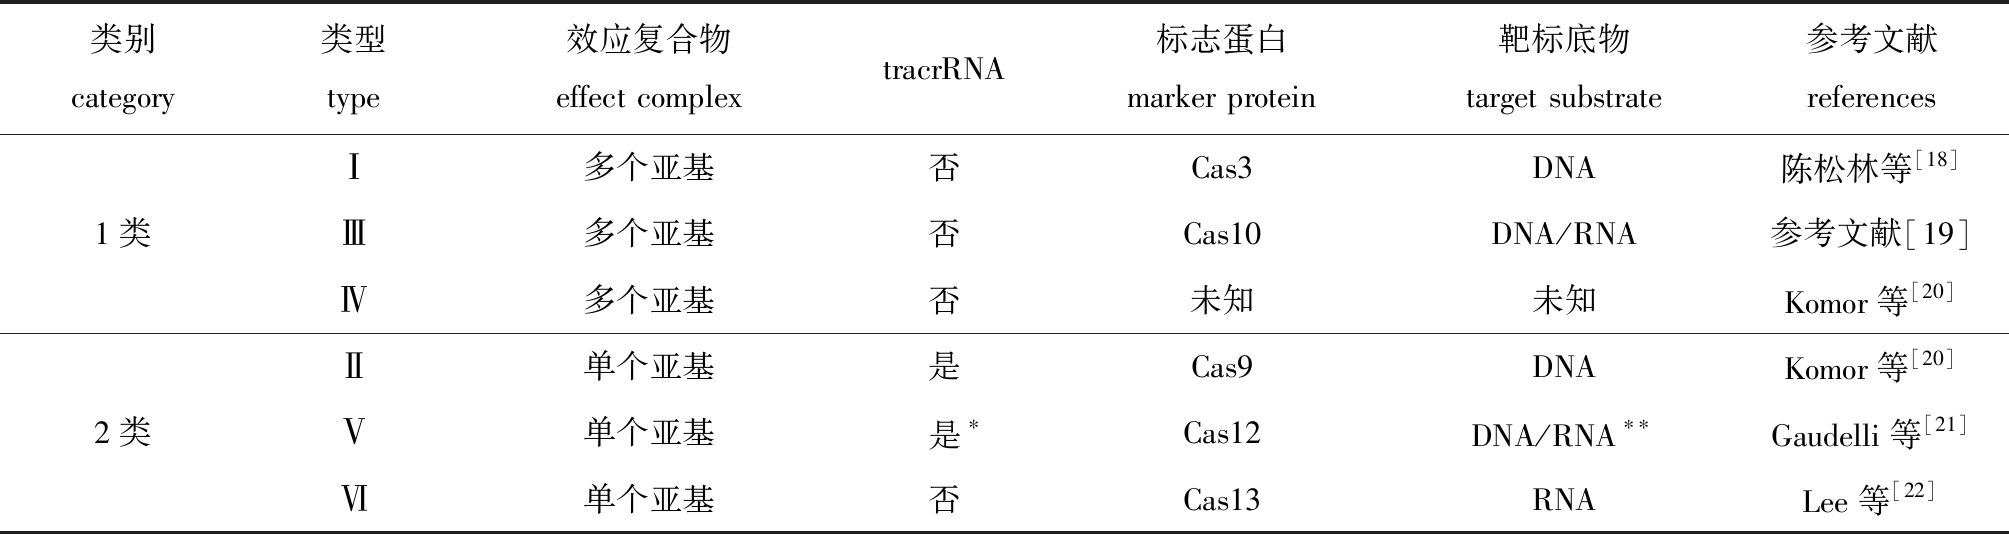
目前,研究者通常根据效应复合物组成形式和作用底物,将CRISPR系统划分为两大类、六种类型:第1大类包括Ⅰ、Ⅲ和Ⅳ型系统,其效应复合物由多种Cas蛋白构成;第2大类包括Ⅱ、Ⅴ和Ⅵ型系统,其效应器主要为单个大分子Cas蛋白[11]。在这些类型中,第2类CRISPR/Cas 系统与当前基因组工程和水产育种关系最为密切,尤其是以Cas9为代表的Ⅱ型系统,以及以Cas12、Cas13为代表的Ⅴ型和Ⅵ型系统。
Ⅱ型系统以Cas9为标志蛋白,系统通常编码Cas1、Cas2及tracrRNA,crRNA-tracrRNA或人工设计的单一向导RNA(single guide RNA,sgRNA),可引导Cas9识别邻近PAM序列的靶DNA,从而在基因组特定位点产生双链断裂。这一机制构成了经典CRISPR/Cas9基因编辑技术的核心框架,也是目前鱼类功能基因组学和分子育种中应用最广泛的CRISPR系统。Ⅴ型系统以Cas12为代表,其效应蛋白同样能够在crRNA引导下特异识别并切割DNA,但在PAM识别谱、切割方式和旁路活性等方面与Cas9存在差异,为构建多样化的DNA编辑工具提供了重要补充。Ⅵ型系统以Cas13为代表,具有RNA靶向特性,可在不改变基因组序列的前提下实现转录本水平的调控和干预,拓展了CRISPR技术在基因功能研究、抗病毒策略和核酸检测等方向的应用空间。
除上述与基因组编辑和转录调控高度相关的系统外,其余类型在效应器组成、是否依赖tracrRNA、标志蛋白种类及靶标底物等方面也具有各自特点,相关信息可通过表2进行系统对比[11]。
表2 不同类型CRISPR/Cas系统的特性
Tab.2 Characteristics ofdifferent types of CRISPR/Cas systems
注:*适用于亚型(B,E,F,G,K);**适用于亚型(V~G)。
Note:* applicable to subtypes(B,E,F,G,K);** applicable to subtype (V-G).
类别category类型type效应复合物effect complextracrRNA标志蛋白marker protein靶标底物target substrate参考文献referencesⅠ多个亚基否Cas3DNA陈松林等[18]1类Ⅲ多个亚基否Cas10DNA/RNA参考文献[19]Ⅳ多个亚基否未知未知Komor等[20]Ⅱ单个亚基是Cas9DNAKomor等[20]2类Ⅴ单个亚基 是∗Cas12DNA/RNA∗∗Gaudelli等[21]Ⅵ单个亚基否Cas13RNALee等[22]
2 CRISPR/Cas9系统工作原理
2.1 Cas9系统的结构
Cas9蛋白整体上由识别叶(recognition lobe,REC叶)和核酸酶叶(nuclease lobe,NUC叶)两大功能模块构成,两部分共同完成靶DNA的识别、构象激活和双链切割(图1)[23-25]。
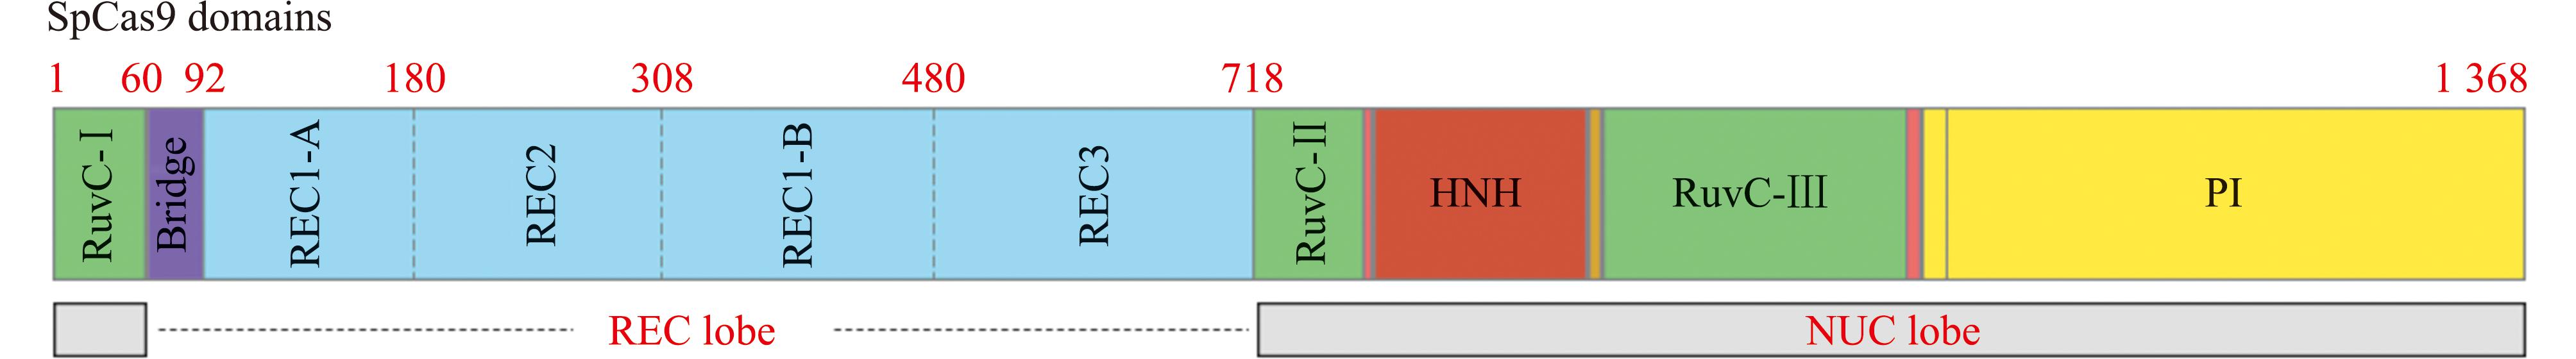
图1 Cas9蛋白结构域组成
Fig.1 Structural domains of the Cas9 protein
REC叶主要负责识别并稳定结合向导RNA及其与靶DNA形成的杂合体。REC叶由多个结构域组成,其中REC1通常为体积最大的结构域。REC1结构域与sgRNA骨架和种子区序列形成多点相互作用,帮助Cas9准确定位到候选靶位点。REC2和REC3结构域在sgRNA-靶DNA配对过程中发生明显构象变化,这些变化会逐步打开Cas9中央通道,使RNA-DNA杂合链能够嵌入蛋白内部。通过这一系列协同运动,REC叶将初始的序列识别事件转化为核酸酶叶的构象激活信号,为后续催化反应创造空间基础[23-26]。
NUC叶包含HNH和RuvC两个核心核酸酶结构域,是Cas9实现DNA双链断裂的催化中心。HNH结构域主要识别并切割与sgRNA序列完全互补的靶DNA链,其催化活性依赖精确的空间定位和金属离子辅助;只有当sgRNA与靶DNA在PAM邻近区域完成足够长度的碱基配对时,HNH结构域才会由“非活化”构象转变为靠近磷酸二酯键的“活化”构象,从而完成对靶链的切割[24]。RuvC结构域位于NUC叶的另一侧,可进一步划分为若干子结构域,负责切割与sgRNA不互补的非靶DNA链。RuvC结构域同样依赖二价金属离子参与催化,通过对非靶链的水解,与HNH结构域形成协同作用,最终在PAM下游数个碱基对处产生近乎同时的双链断裂[25]。
REC叶与NUC叶之间通过桥螺旋等结构实现力学与结构上的信息传递:当REC叶完成对sgRNA-靶DNA杂合体的正确识别后,桥螺旋将这一信号传递至HNH和RuvC结构域,驱动它们进入催化构象[23]。由此,Cas9得以将序列特异性的识别过程与空间精确的双链切割过程紧密耦合,为CRISPR/Cas9基因编辑提供结构基础[27]。
2.2 CRISPR/Cas9系统的作用原理
CRISPR/Cas9系统的作用过程大致可分为识别、切割和双链断裂诱导修复三个阶段[28-29]。
1)识别阶段。Cas9与sgRNA在体外预先组装成核糖核蛋白复合物(RNP),进入细胞核后,RNP在基因组范围内搜索与sgRNA互补的潜在靶序列。Cas9首先通过PAM识别域扫描并短暂停留在满足PAM要求的位点(如SpCas9识别5′-NGG-3′),随后sgRNA的种子序列与靶DNA进行碱基配对。如果PAM存在且种子区配对高度匹配,则Cas9发生构象重排,进一步推动RNA-DNA杂合链延伸,从而形成稳定的RNP-靶DNA三元复合物[25-26]。
2)切割阶段。当sgRNA与靶DNA完成足够长度的配对后,NUC叶内的HNH和RuvC结构域依次被激活。HNH结构域在构象调整后靠近与sgRNA互补的靶DNA链,并在二价金属离子辅助下切断该链;RuvC结构域则对与sgRNA不互补的非靶DNA链进行水解。两者的协同作用使Cas9在PAM上游数个碱基对处产生空间位置高度固定的双链断裂,实现对靶位点的精确切割[27]。
3)双链断裂诱导的修复阶段。Cas9产生的DNA双链断裂会迅速启动细胞内源性的DNA修复通路。非同源末端连接(non-homologous end joining,NHEJ)是最常见的修复方式,该途径效率高但易引入碱基插入或缺失,从而导致阅读框移码或功能结构域破坏,适用于基因敲除[29-30]。如果在断裂附近同时提供带有同源臂的供体DNA,则细胞还可通过同源定向修复(homology-directed repair,HDR)途径,将外源片段或精确突变整合至靶位点,实现基因敲入或定点修饰。通过对识别、切割和修复三个环节的精细调控,CRISPR/Cas9系统得以实现对基因组序列的可编程编辑[31]。
2.3 Cas9变体与扩展工具在精准调控中的应用
2.3.1 转录与表观遗传层面的可编程调控工具 随着CRISPR/Cas技术体系的不断完善,Cas9已不再仅被视为实现基因敲除或敲入的“基因剪刀”。围绕Cas9蛋白的结构改造与模块化融合,研究者构建了多类可编程调控工具,使CRISPR/Cas9能够在基因组编辑、转录调控以及表观遗传修饰等层面实现更精细、更可控的干预,从而形成覆盖“序列-表达-染色质状态”的多层次操作平台[32]。
首先,催化失活Cas9(dead Cas9,dCas9)在保留sgRNA介导的靶序列识别与结合能力的同时,丧失了核酸内切酶切割活性。因此,dCas9常被用作一种“可编程DNA定位骨架”,能够在sgRNA引导下精准定位至靶基因启动子、增强子或其他调控元件区域。当dCas9与转录抑制结构域融合时,可在不改变DNA序列的前提下抑制靶基因转录(CRISPR OFF);当dCas9与转录激活结构域融合时,可上调靶基因表达水平,形成CRISPR ON/OFF调控体系。与传统的永久性基因敲除相比,该类工具具有可逆性强、作用强度可调等特点,适用于基因功能验证、调控网络解析,以及合成生物学调控回路构建等研究。
在转录调控工具之外,基于dCas9或切口酶nCas9(nickase Cas9)构建的碱基编辑器(base editor,BE)与先导编辑器(prime editor,PE)进一步推动了Cas9体系由“切割型编辑”向“精确改写”演进。BE通常通过将nCas9与胞嘧啶或腺嘌呤脱氨酶融合,在特定位点实现C·G→T·A或A·T→G·C的单碱基转换[33]。该过程通常不引发DNA双链断裂,也不需要依赖双链断裂后的修复过程,因此可减少由修复过程带来的插入/缺失突变(indel)及较大结构重排等非预期编辑结果。PE则在nCas9基础上融合逆转录酶,并利用携带逆转录模板的pegRNA,在靶位点实现小片段插入、缺失及多种形式的碱基替换,理论上能够覆盖更广的突变类型与改写需求,为精准突变模拟与定点改良提供了更通用的技术路线。
此外,近年来,基于dCas9的表观遗传编辑发展迅速。通过将dCas9与DNA甲基转移酶或去甲基化酶(如DNMT3A、TET家族等)融合,可在特定CpG位点实现靶向甲基化或去甲基化,进而在不改变碱基序列的前提下调控染色质状态与基因表达谱。这类“表观CRISPR”工具为阐明DNA甲基化在发育调控、环境应答及疾病发生中的因果关系提供了更直接的试验手段,同时也为构建可编程的表观遗传育种策略奠定了方法学基础。
2.3.2 高保真与宽PAM识别Cas9变体及其应用优势 在应用层面,脱靶效应与PAM序列限制是Cas9体系长期关注的关键问题。为降低非特异性结合并扩展可编辑靶点覆盖范围,研究者通过蛋白工程改造与理性设计获得了多类改进型Cas9变体:一类为在保持较高编辑效率的同时显著降低脱靶的高保真(high-fidelity)Cas9变体;另一类为可识别更宽PAM序列(如NG等)的宽谱PAM识别变体,代表性例子包括SpCas9-NG、xCas9等。上述变体可有效解决鱼类基因组中因PAM受限导致的靶点选择不足问题,并为关键位点开展更安全、更精准的定点改写提供了重要工具储备[33]。
2.3.3 面向育种的工具组合与策略优化 与单纯“敲除-观察表型”的研究范式相比,精准分子设计育种更强调性状改良路径的可预测、可评估与可追溯。在鱼类体系中,可依据育种目标与靶位点特征对工具进行策略化组合,对于已明确功能且需要精细改写的关键位点,可优先采用BE或PE实现单碱基或小片段的定点编辑[34]。
3 CRISPR/Cas9系统在鱼类精准育种中的应用
CRISPR/Cas9基因编辑技术已在多种重要养殖鱼类的精准育种研究中得到应用,为生长性状改良、饲料利用效率提升、抗病能力增强与繁殖调控等提供了关键手段。一方面,基因编辑可用于快速验证候选基因的因果作用、锁定可利用的育种靶点;另一方面,通过定点敲除、敲入或精细编辑,可在育种群体中实现对目标性状的定向改良,为“设计型育种”提供技术支撑。下文主要围绕促生长与抗病两个方向,概述其应用现状及主要问题。
3.1 提高生长性能
在鱼类中,CRISPR/Cas9主要用于靶向生长负调控因子和生长轴关键节点,从而促进骨骼肌生长和体质量积累,其中肌肉生成抑制素mstn(myostatin)是应用最集中的靶基因之一[35-36]。mstn通过抑制肌源性前体细胞的增殖和分化,限制骨骼肌纤维的数量和直径;当mstn被敲除或失活后,骨骼肌常表现为纤维数量增加与单纤维肥大并存,个体整体肌肉块度显著提升[37-38]。在一细胞期受精卵中注射Cas9/sgRNA核糖核蛋白或mRNA,可在F0代获得不同程度的mstn突变体,并在F1及以后世代中筛选出稳定遗传的突变系。
目前,mstn编辑已在多种重要养殖鱼类中获得了明确的促生长表型(表3)。红海鲷胚胎期敲除mstn后,在F0~F2代骨骼肌横截面积约增加16%,部分家系体长略有下降,提示肌肉量增加与体形变化同时存在[36]。沟鲶中通过合子期注射获得的mstn突变F0代及其后代,体质量和特定生长率显著提高,部分研究还观察到细菌感染后存活率升高,提示mstn可能不仅参与肌肉生长,也与能量分配和抗应激反应有关[38]。黄颡鱼mstn基因存在亚型分化,mstna敲除系全面提升体质量和生长速度,而mstnb敲除后代表型变化不明显,说明同一家族基因在不同组织或发育阶段的功能分工并不相同[39]。在泥鳅中,mstn靶向破坏后的F0及后代同时表现为体长、体质量和脂肪沉积增加[38]。尼罗罗非鱼中,CRISPR诱导的mstn突变已用于构建快速生长的雄性群体,在连续世代中生长速率持续快于对照组[39]。在青鳉中,mstn敲除系在F0~F5代体质量和体长均明显增加,但部分个体伴随脊柱畸形和免疫相关指标下降,提示长期完全缺失mstn可能带来一定生理代价[40-41]。
表3 鱼类中提高生长性能与饲料效率的代表性研究
Tab.3 Representative studies on improving growth performance and feed efficiency of fish
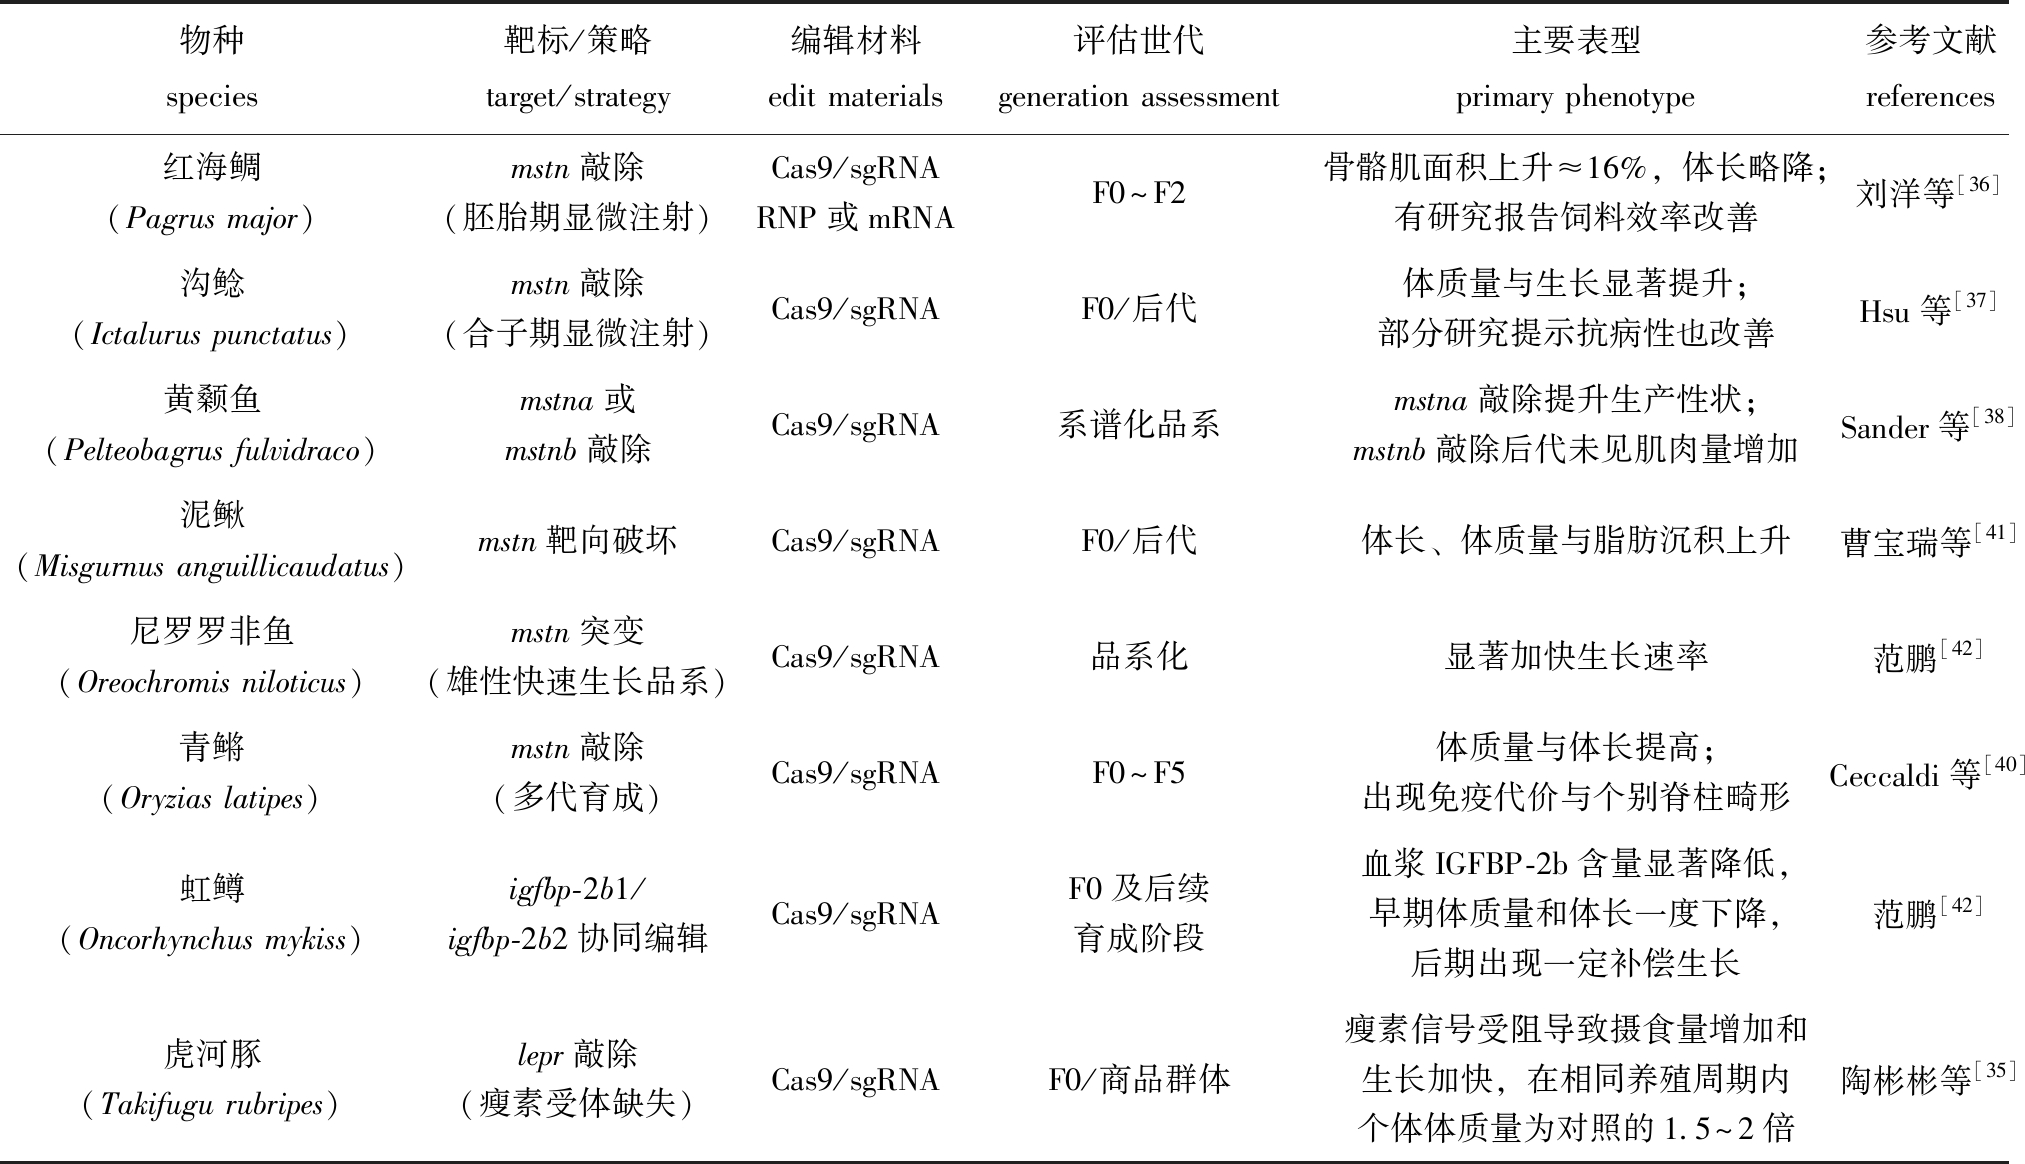
物种species靶标/策略target/strategy编辑材料edit materials评估世代generation assessment主要表型primary phenotype参考文献references红海鲷(Pagrus major)mstn敲除(胚胎期显微注射)Cas9/sgRNA RNP或mRNAF0~F2骨骼肌面积上升≈16%,体长略降;有研究报告饲料效率改善刘洋等[36]沟鲶(Ictalurus punctatus)mstn敲除(合子期显微注射)Cas9/sgRNAF0/后代体质量与生长显著提升;部分研究提示抗病性也改善Hsu等[37]黄颡鱼(Pelteobagrus fulvidraco)mstna或mstnb敲除Cas9/sgRNA系谱化品系mstna敲除提升生产性状;mstnb敲除后代未见肌肉量增加Sander等[38]泥鳅(Misgurnus anguillicaudatus)mstn靶向破坏Cas9/sgRNAF0/后代体长、体质量与脂肪沉积上升曹宝瑞等[41]尼罗罗非鱼(Oreochromis niloticus)mstn突变(雄性快速生长品系)Cas9/sgRNA品系化显著加快生长速率范鹏[42]青鳉(Oryzias latipes)mstn敲除(多代育成)Cas9/sgRNAF0~F5体质量与体长提高;出现免疫代价与个别脊柱畸形Ceccaldi等[40]虹鳟(Oncorhynchus mykiss)igfbp-2b1/igfbp-2b2协同编辑Cas9/sgRNAF0及后续育成阶段血浆IGFBP-2b含量显著降低,早期体质量和体长一度下降,后期出现一定补偿生长范鹏[42]虎河豚(Takifugu rubripes)lepr敲除(瘦素受体缺失)Cas9/sgRNAF0/商品群体瘦素信号受阻导致摄食量增加和生长加快,在相同养殖周期内个体体质量为对照的1.5~2倍陶彬彬等[35]
Mstn的典型案例:mstn是骨骼肌生长的关键负调控因子,不同鱼类中敲除/失活后普遍表现为肌纤维数量与直径增加、体质量与特定生长率提升,但表型幅度与伴随效应具有物种差异[41]。机制上,mstn通过TGF-β/Smad等通路抑制卫星细胞增殖与分化,并影响蛋白合成/分解与能量代谢分配。在部分物种中也观察到脂肪沉积增加、免疫指标改变或骨骼畸形等现象,提示在将mstn作为育种靶点时需结合遗传背景与养殖环境开展多代安全性与综合性状评估。
除mstn外,生长激素/胰岛素样生长因子(growth hormone-insulin-like growth factor,GH-IGF)轴中的胰岛素样生长因子结合蛋白2b(insulin-like growth factor binding protein-2b,igfbp-2b)也是与体长和体质量密切相关的靶点[42]。以虹鳟(Oncorhynchus mykiss)为代表的鲑鳟类中,血浆IGF-I主要以与IGFBP-2b结合的形式存在,决定了循环IGF-I的稳定性和可利用度。利用CRISPR/Cas9同时靶向igfbp-2b1和igfbp-2b2,可显著降低血浆IGFBP-2b水平,改变IGF-I浓度及其在组织间的分配模式,并在生长阶段表现为体质量和体长的可测变化;部分个体通过调节肝脏igfbp表达和骨骼肌igf受体表达,对IGF信号进行补偿性调整,从而在不同饲喂条件下形成差异化的生长轨迹。这些结果表明,igfbp-2b通过调控GH-IGF信号轴的敏感性和反馈强度,在肌肉内源性生长因子作用之外,从内分泌层面参与决定鱼类的生长速度[43-45]。
瘦素受体(leptin receptor,lepr)则代表了摄食调控与能量代谢通路中的另一类关键靶基因。瘦素受体信号通路信号参与调节食欲、能量摄入与脂质代谢,其功能缺失往往伴随摄食行为改变和体组成重塑。虹鳟中通过CRISPR/Cas9敲除lepra1/lepra2,可获得呈现明显高摄食倾向和生长加快的突变群体,在一定饲喂条件下表现出更高的体质量和更快的体尺增长[46]。在日本已获准上市的基因编辑虎河豚(Takifugu rubripes)中,同样通过破坏lepr基因来解除瘦素对摄食的抑制,在相同养殖周期内,商品鱼平均体质量为对照的1.5~2倍,同时外观和肌肉品质保持在可接受范围内[47]。这些研究说明,通过调节瘦素信号通路,可以在不直接改变肌肉结构基因的情况下,从神经内分泌和行为层面间接提升鱼类的生长性能。
除表3所列物种外,CRISPR/Cas9也已在大西洋鲑等冷水性鱼类中用于建立胚胎期编辑体系。通过敲除色素合成相关基因tyr、slc45a2或alb,在F0代获得易于识别的白化突变体,为后续围绕生长和脂代谢相关基因开展靶向编辑提供了技术验证[48]。同样,在大黄鱼等海水经济鱼类中也已完成针对生长和应激相关基因的CRISPR编辑探索。总体来看,在红海鲷、沟鲶、黄颡鱼、泥鳅、尼罗罗非鱼、青鳉以及虹鳟、虎河豚等代表性物种中,围绕mstn、igfbp-2b和lepr等基因的基因编辑已经在F0代获得清晰的生长表型,并可在F1及后代中不同程度地稳定遗传,为解析鱼类生长调控网络和改良生长性状提供了重要试验基础(表3)[49-50]。
3.2 提高抗病能力
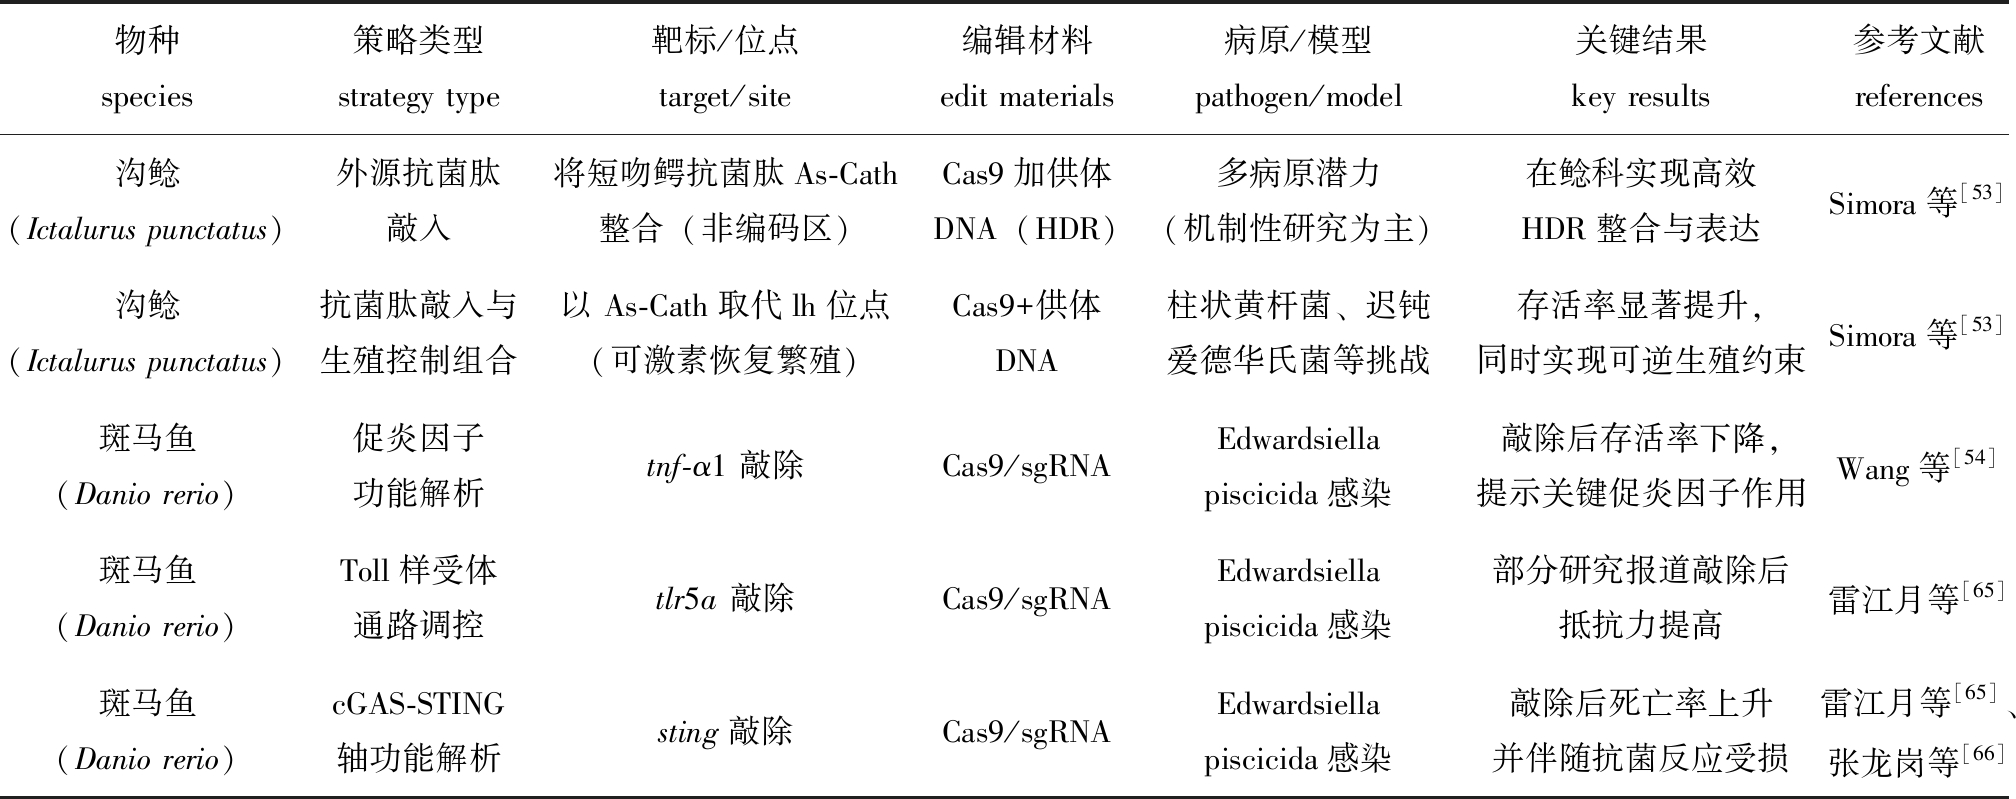
疾病暴发是限制集约化鱼类精准育种的主要瓶颈之一。CRISPR/Cas9通过靶向改造免疫相关基因或定点整合抗菌效应分子,使研究者能够在个体水平上直接观察感染结局的改变,从而提高宿主对特定病原或多种病原的抵抗能力[51-53]。现有研究主要集中在两类策略:一类是将外源抗菌肽等效应分子整合至基因组特定位点,在不依赖长期用药的情况下增强机体清除病原的能力;另一类是靶向固有免疫及炎症通路的关键节点,通过基因敲除或功能调控来表明“增强抗性”或“增加易感性”的分子基础,为经济鱼类的抗病育种提供可操作的靶标(表4)。
表4 抗病与免疫系统工程的代表性研究
Tab.4 Representative studies on disease resistance and immune system engineering
物种species策略类型strategy type靶标/位点target/site编辑材料edit materials病原/模型pathogen/model关键结果key results参考文献references沟鲶(Ictalurus punctatus)外源抗菌肽敲入将短吻鳄抗菌肽As-Cath整合(非编码区)Cas9加供体DNA(HDR)多病原潜力(机制性研究为主)在鲶科实现高效HDR整合与表达Simora等[53]沟鲶(Ictalurus punctatus)抗菌肽敲入与生殖控制组合以 As-Cath取代lh位点(可激素恢复繁殖)Cas9+供体DNA柱状黄杆菌、迟钝爱德华氏菌等挑战存活率显著提升,同时实现可逆生殖约束Simora等[53]斑马鱼(Danio rerio)促炎因子功能解析tnf-α1 敲除Cas9/sgRNAEdwardsiella piscicida感染敲除后存活率下降,提示关键促炎因子作用Wang等[54]斑马鱼(Danio rerio)Toll样受体通路调控tlr5a 敲除Cas9/sgRNAEdwardsiella piscicida感染部分研究报道敲除后抵抗力提高雷江月等[65]斑马鱼(Danio rerio)cGAS-STING轴功能解析sting敲除Cas9/sgRNAEdwardsiella piscicida感染敲除后死亡率上升并伴随抗菌反应受损雷江月等[65]、张龙岗等[66]
在沟鲶(Ictalurus punctatus)中,短吻鳄来源抗菌肽As-Cath的定点整合为“引入抗病因子提高存活率”的代表性案例之一。利用CRISPR/Cas9介导的同源定向修复(homology-directed repair,HDR),研究者首先将As-Cath插入非编码区或安全位点,在F0代即检测到多组织中As-Cath的稳定表达。对迟钝爱德华氏菌、柱状黄杆菌等常见细菌病原进行攻毒时,整合个体在F0和F1代的累积死亡率显著低于对照组,体内菌负荷也明显减少,表明外源抗菌肽在鱼类体内可以发挥持续的抗感染作用[53]。进一步研究中,以As-Cath替代与生殖相关的l h位点,在保持对细菌感染保护效应的同时,使编辑个体在无外源激素条件下繁殖能力受限,而在育种阶段可通过激素处理恢复生殖功能,从而在“提高抗病能力”的同时兼顾对生殖的可控管理[54]。
As-Cath敲入沟鲶的典型案例:针对细菌性病害高发的生产痛点,研究者利用CRISPR/Cas9介导HDR将短吻鳄来源抗菌肽As-Cath定点整合至特定位点,显著提高感染挑战下的存活率,为“引入抗病因子”提供了可复制的策略路径[54]。进一步地,以As-Cath替代lh等生殖相关位点的设计,将抗病增强与生殖调控耦合,生产阶段个体繁殖受限以降低生态外逸风险,而在育种阶段可通过激素诱导等方式恢复繁殖能力,从而在同一遗传背景下兼顾抗病改良与生物安全需求。
斑马鱼则主要用于解析免疫信号通路中候选基因在抗感染过程中的作用,为经济鱼类抗病靶点筛选提供通路级参考。tnf-α1敲除斑马鱼在Edwardsiella piscicida感染模型中的累积死亡率显著升高,肝脏和其他组织中多种抗菌相关基因的诱导反应减弱,提示TNF信号轴在早期炎症放大和病原清除中发挥关键促进作用[55]。与此相反,tlr5a敲除斑马鱼在部分研究中对同一病原表现出更高的存活率,说明Toll样受体通路中不同受体或下游节点对感染结局的影响并非单向一致,而是呈现出对病原类型和感染途径依赖性。sting敲除个体在同一细菌感染模型中死亡率升高、抗菌反应受损,进一步支持cGAS-STING轴在鱼类抗菌免疫中的保守性[56-57]。通过比较tnf-α1、tlr5a和sting等基因敲除后的感染表型,可以从通路角度区分哪些基因是增强抗性的“正调控因子”,哪些基因在特定病原背景下可能发挥促进易感的作用(表4)。
在沟鲶和斑马鱼中获得的这些结果,为经济鱼类提高抗病能力提供了两条互补路径:一方面,可以直接参考As-Cath等抗菌肽敲入策略,在目标物种中筛选适宜的整合位点,使群体在不依赖长期药物暴露的情况下获得更高的存活率[58-60];另一方面,可以借助斑马鱼中已验证的免疫通路靶点,在罗非鱼、鲤科鱼、大黄鱼和鲑鳟类等物种中开展针对tnf-α1、sting及Toll样受体等基因的功能验证和表型评估,筛选出既能显著提高抗病能力、又不会对生长和繁殖造成明显负面影响的编辑组合。随着相关研究的深入,围绕“提高抗病能力”的基因编辑策略有望逐步从实验室走向实际养殖体系,为减少用药依赖和缓解疾病风险提供新的技术选项(表4)[61-64]。
4 CRISPR/Cas9技术的优势、局限及与新兴CRISPR系统的比较
总体来看,CRISPR/Cas9已成为当前水产领域应用最广泛的基因编辑工具之一。该系统以Cas蛋白和单一向导RNA(sgRNA)为核心,靶点设计简单、操作流程清晰、编辑通量高,便于在多个基因位点平行开展功能研究[53]。
与早期的ZFNs、TALENs相比,CRISPR/Cas9在构建成本与多位点编辑方面具有显著优势,但在当下的技术生态中,更有意义的比较对象是已商业化并快速扩展的其他CRISPR系统。如Ⅴ型系统Cas12a识别T富集PAM并产生黏性末端切口,更适合部分基因组区域的靶向与HDR整合;Cas12a对多靶点串联crRNA的处理能力也为高通量位点筛选与性状组合改良提供便利。此外,面向RNA靶向的Cas13体系可用于转录层面的可逆调控与抗病毒研究,能够与Cas9形成互补。因此,在鱼类精准育种实践中,Cas9、Cas12a/Cas12b与Cas13等体系应根据目标位点PAM限制、编辑类型(敲除/敲入/精细替换/表达调控)与递送条件进行合理选型与组合[54,65-66]。
虽然CRISPR/Cas9技术优势明显,但是CRISPR/Cas9在鱼类中的应用仍存在若干局限[67]。首先,经典SpCas9对PAM序列具有特定依赖,即便宽PAM变体在部分鱼类中表现出较好活性,不同物种、不同发育阶段的编辑效率和脱靶谱仍缺乏系统化数据。其次,基于双链断裂的编辑本身带有随机性,除预期的小片段插入/缺失外,还可能诱导大片段缺失、结构重排等复杂事件,而同源定向修复效率偏低,又限制了精确敲入的应用范围[68]。
此外,鱼类胚胎发育速度快、卵膜性质多样,显微注射窗口窄且易产生嵌合体,增加了后续世代筛选和表型验证的难度[69-70]。这些因素共同表明,尽管CRISPR/Cas9在鱼类生物学研究中优势显著,但在用于长期性状改造之前,仍需在工具性能、编辑精确度和生物学后果评估方面继续深入研究。
5 基因编辑鱼类产业化应用中的生物安全与品种审批政策
5.1 基因编辑鱼类的生物安全评估
基因编辑鱼类用于育种与产业化时,生物安全评估的关键不在于能否编辑成功,而在于以下三点:首先,编辑结果是否清晰可复现、性状是否稳定且不引入新增风险、在生产与生态情景中是否可控并可追溯[70-71];其次,分子层面需明确突变类型(缺失/插入/替换、纯合/杂合、嵌合等),并证明育种材料中无外源序列残留,同时对非预期改变进行核查,包括脱靶编辑以及编辑位点附近的较大缺失或结构变异;最后,拟产业化品系还应完成多代繁育验证,证明编辑与表型能够稳定遗传,以满足育种应用对可评估与可追溯的要求。
鱼类更突出的风险来自逃逸与环境扩散。常规养殖亦可能发生逃逸,而一旦具有生长优势或适应度改变的个体进入开放水域,可能引发生态竞争变化并造成遗传渗入。因此,评估往往需要把风险控制前置到养殖体系设计中,形成“分子证据-设施条件-管理措施”的组合约束。美国FDA对AquAdvantage三文鱼的审批具有代表性,其将生产限定在陆基设施并强调不允许海上网箱,同时要求多重物理隔离与冗余屏障,以降低逃逸风险并提高可控性[72]。
5.2 基因编辑鱼类的国际监管实践
国际上对基因编辑产品的监管总体呈“按产品特征、按风险分层”的趋势,但各国对其是否纳入GMO同等管理差异较大。日本建立了以下做法:对不含外源DNA的基因编辑产品采取区别于传统转基因的路径,并在材料审查中重点关注群体突变一致性、无外源残留,以及非预期改变是否可能带来新的安全风险等[73]。
在该框架下,日本于2021年推动两类基因编辑鱼进入商业流通:基因编辑红海鲷(Madai),通过编辑肌肉生长负调控相关基因(如mstn)以提高可食部分比例与产出;基因编辑虎河豚,通过编辑与食欲/生长相关通路实现更快生长。其共同特点是,监管关注点集中在产品是否含外源成分、突变特征是否明确、风险控制与信息公开是否到位,而非仅以“是否使用CRISPR”作判断[71-74]。
美国在动物领域通常采取更严格的许可框架,要求提交系统证据,并用“条件式许可”限制生产场景。AquAdvantage三文鱼的审批逻辑表明,即便食品安全层面可接受,监管仍会将环境风险作为核心变量,通过限定设施类型与隔离措施,把潜在风险压缩到可控范围。
5.3 中国现行框架与水产应用申报思路
中国农业生物安全管理已有制度基础,《农业转基因生物安全管理条例》将水产苗种纳入管理对象,并对许可、档案与标识等提出要求,形成“来源-流通-去向”的链条化监管。在基因编辑方面,农业农村部已发布基因编辑植物的安全评价指南与评审细则,并正在研究制定农业用基因编辑动物安全评价指南。因此,鱼类基因编辑育种在推进产业化时,应提前按“可审查的数据包”组织证据,分子层面(无外源残留、突变清晰、脱靶与结构变异核查、多代遗传稳定性)与应用层面(封闭化养殖与逃逸防控、可追溯与标识方案、必要的食品与生态风险评估)同步准备。总体而言,基因编辑鱼类的产业化应用不仅需要实现预期的性状改良,还需建立涵盖编辑特征鉴定、生物安全评价、风险防控及可追溯管理在内的完整证据体系,以支撑相关产品的规范审查与应用推广。
6 结论与展望
6.1 结论
总体而言,CRISPR/Cas9及其衍生体系正在把鱼类基因编辑从“验证基因功能的研究工具”推进为“面向性状改良的育种工具”。Cas9变体、表观遗传编辑及BE/PE等技术,使得在不局限于敲除前提下开展精细改写与可控调控成为可能;同时,与Cas12a、Cas13等新兴CRISPR系统的互补组合,也为不同PAM背景、不同编辑目标提供了更灵活的技术选型。当前制约产业化应用的关键仍集中在稳定高效的递送与降低嵌合体、提高定点整合效率,以及对脱靶与结构变异等非预期后果的系统评估;此外,生物安全与审批政策框架的完善与证据化呈现,也是技术从实验室走向应用端必须同步解决的问题。
6.2 工具优化、递送策略与安全性评估展望
未来研究应围绕“更精细、更高效、更可控、更可评估”持续推进。在工具层面提升编辑效率与特异性,在递送层面增强跨物种可用性,在评价层面建立跨代稳定性与风险评估框架,从而支撑技术由功能研究走向育种应用并满足监管审查需求,具体从以下三方面进行详细描述。
首先,在工具优化方面,可结合小型Cas效应器(如SaCas9等)、高保真/宽PAM变体及BE/PE等精细编辑体系,针对不同物种的PAM限制与目标编辑类型进行体系化选型与验证;同时发展表观遗传编辑,用于调控层面的可逆验证、剂量效应评估与性状网络解析,为后续育种靶点的组合设计提供更可靠的因果证据[75]。
其次,在递送策略方面,除胚胎显微注射外,应进一步探索电转、纳米载体、病毒载体与体内递送等方案,以服务体细胞编辑模型构建与组织定点编辑;并通过优化RNP形式递送、降低嵌合体比例与提高HDR/定点整合效率,提升可育系与稳定品系的获得效率,使编辑结果更适配育种对“稳定遗传与可追溯”的要求[76]。
最后,安全性评估方面,需要将脱靶检测从“位点级”扩展到“全基因组结构变异与长期表型后果”,并结合长读长测序、跨代遗传稳定性验证、群体遗传学监测与生态风险评估,形成可用于审批与产业化的“数据包”,以提高技术应用的可接受度与可监管性[77]。
[1] ISHINO Y,SHINAGAWA H,MAKINO K,et al.Nucleotide sequence of the iap gene,responsible for alkaline phosphatase isozyme conversion in Escherichia coli,and identification of the gene product[J].Journal of Bacteriology,1987,169(12):5429-5433.
[2] JANSEN R,VAN EMBDEN J D A,GAASTRA W,et al.Identification of genes that are associated with DNA repeats in prokaryotes[J].Molecular Microbiology,2002,43(6):1565-1575.
[3] MOJICA F J M,D EZ-VILLASE
 OR C,GARCA-MARTNEZ J,et al.Intervening sequences of regularly spaced prokaryotic repeats derive from foreign genetic elements[J].Journal of Molecular Evolution,2005,60(2):174-182.
[4] BOLOTIN A,QUINQUIS B,SOROKIN A,et al.Clustered regularly interspaced short palindrome repeats (CRISPRs) have spacers of extrachromosomal origin[J].Microbiology,2005,151(Pt 8):2551-2561.
[5] BARRANGOU R,FREMAUX C,DEVEAU H,et al.CRISPR provides acquired resistance against viruses in prokaryotes[J].Science,2007,315(5819):1709-1712.
[6] DELTCHEVA E,CHYLINSKI K,SHARMA C M,et al.CRISPR RNA maturation by trans-encoded small RNA and host factor RNase Ⅲ[J].Nature,2011,471(7340):602-607.
[7] 李石竹,方文宇,骆明飞,等.黄颡鱼GnRHR基因的克隆和表达及CRISPR/Cas9构建GnRHR基因敲除突变体[J].大连海洋大学学报,2021,36(3):383-392.LI S Z,FANG W Y,LUO M F,et al.Molecular cloning,and expression of GnRHR gene and establishment of GnRHR mutant by CRISPR/Cas9 in yellow catfish Pelteobagrus[J].Journal of Dalian Ocean University,2021,36(3):383-392.(in Chinese)
[8] JINEK M,CHYLINSKI K,FONFARA I,et al.A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity[J].Science,2012,337(6096):816-821.
[9] CONG L,RAN F A,COX D,et al.Multiplex genome engineering using CRISPR/Cas systems[J].Science,2013,339(6121):819-823.
[10] MALI P,YANG L H,ESVELT K M,et al.RNA-guided human genome engineering via Cas9[J].Science,2013,339(6121):823-826.
[11] HWANG W Y,FU Y F,REYON D,et al.Efficient genome editing in zebrafish using a CRISPR-Cas system[J].Nature Biotechnology,2013,31(3):227-229.
[12] LIANG P P,XU Y W,ZHANG X Y,et al.CRISPR/Cas9-mediated gene editing in human tripronuclear zygotes[J].Protein &Cell,2015,6(5):363-372.
[13] CYRANOSKI D.CRISPR gene-editing tested in a person for the first time[J].Nature,2016,539(7630):479.
[14] CYRANOSKI D,LEDFORD H.Genome-edited baby claim provokes international outcry[J].Nature,2018,563(7733):607-608.
[15] 于笛,迟小妹,滕炜鸣,等.基因编辑CRISPR技术在海洋生物遗传育种的应用进展[J].大连海洋大学学报,2021,36(1):169-176.YU D,CHI X M,TENG W M,et al.Application perspective of CRISPR technology in marine organisms genetic breeding:a review[J].Journal of Dalian Ocean University,2021,36(1):169-176.(in Chinese)
[16] 于红,刘欣,李琪.基因编辑技术在贝类中的应用进展与展望[J].水产学报,2022,46(4):636-643.YU H,LIU X,LI Q.Application advances and prospects of genome editing in molluscs[J].Journal of Fisheries of China,2022,46(4):636-643.(in Chinese)
[17] 宋海亮,胡红霞.基因组选择及其在水产动物育种中的研究进展[J].农业生物技术学报,2022,30(2):379-392.SONG H L,HU H X.Genomic selection and its research progress in breeding of aquaculture species[J].Journal of Agricultural Biotechnology,2022,30(2):379-392.(in Chinese)
[18] 陈松林,徐文腾,卢昇,等.水产育种生物技术发展战略研究[J].中国工程科学,2023,25(4):214-226.CHEN S L,XU W T,LU S,et al.Development strategy for aquatic breeding biotechnology[J].Strategic Study of CAE,2023,25(4):214-226.(in Chinese)
[19] The Royal Swedish Academy of Sciences.Genetic scissors:a tool for rewriting the code of life[EB/OL].Stockholm:The Royal Swedish Academy of Sciences,2020.(2020-10-07)[2026-04-16].
[20] KOMOR A C,KIM Y B,PACKER M S,et al.Programmable editing of a target base in genomic DNA without double-stranded DNA cleavage[J].Nature,2016,533(7603):420-424.
[21] GAUDELLI N M,KOMOR A C,REES H A,et al.Programmable base editing of A·T to G·C in genomic DNA without DNA cleavage[J].Nature,2017,551(7681):464-471.
[22] LEE H K,OH Y,HONG J,et al.Development of CRISPR technology for precise single-base genome editing:a brief review[J].BMB Reports,2021,54(2):98-105.
[23] ANZALONE A V,RANDOLPH P B,DAVIS J R,et al.Search-and-replace genome editing without double-strand breaks or donor DNA[J].Nature,2019,576(7785):149-157.
[24] MAKAROVA K S,WOLF Y I,ALKHNBASHI O S,et al.An updated evolutionary classification of CRISPR-Cas systems[J].Nature Reviews Microbiology,2015,13(11):722-736.
[25] MAKAROVA K S,WOLF Y I,IRANZO J,et al.Evolutionary classification of CRISPR-Cas systems:a burst of class 2 and derived variants[J].Nature Reviews Microbiology,2020,18(2):67-83.
[26] SHMAKOV S,ABUDAYYEH O O,MAKAROVA K S,et al.Discovery and functional characterization of diverse class 2 CRISPR-cas systems[J].Molecular Cell,2015,60(3):385-397.
[27] ZETSCHE B,GOOTENBERG J S,ABUDAYYEH O O,et al.Cpf1 is a single RNA-guided endonuclease of a class 2 CRISPR-cas system[J].Cell,2015,163(3):759-771.
[28] ABUDAYYEH O O,GOOTENBERG J S,KONERMANN S,et al.C2c2 is a single-component programmable RNA-guided RNA-targeting CRISPR effector[J].Science,2016,353(6299):aaf5573.
[29] NISHIMASU H,RAN F A,HSU P D,et al.Crystal structure of Cas9 in complex with guide RNA and target DNA[J].Cell,2014,156(5):935-949.
[30] ANDERS C,NIEWOEHNER O,DUERST A,et al.Structural basis of PAM-dependent target DNA recognition by the Cas9 endonuclease[J].Nature,2014,513(7519):569-573.
[31] JIANG F G,DOUDNA J A.CRISPR-Cas9 structures and mechanisms[J].Annual Review of Biophysics,2017,46:505-529.
[32] STERNBERG S H,REDDING S,JINEK M,et al.DNA interrogation by the CRISPR RNA-guided endonuclease Cas9[J].Nature,2014,507(7490):62-67.
[33] JIANG F G,TAYLOR D W,CHEN J S,et al.Structures of a CRISPR-Cas9 R-loop complex primed for DNA cleavage[J].Science,2016,351(6275):867-871.
[34] 孙永华,胡炜.重要养殖鱼类生物育种技术研究[J].中国农业科技导报,2022,24(12):120-128.SUN Y H,HU W.Development of biobreeding techniques in main aquaculture fish species[J].Journal of Agricultural Science and Technology,2022,24(12):120-128.(in Chinese)
[35] 陶彬彬,胡炜.鱼类性别控制育种研究进展[J].中国农业科技导报,2022,24(2):1-10.TAO B B,HU W.Research progress on sex control breeding of fish[J].Journal of AgriculturalScience and Technology,2022,24(2):1-10.(in Chinese)
[36] 刘洋,陈松林.鱼类性别特异分子标记筛选及分子性控育种研究现状与展望[J].水产学报,2023,47(11):32-41.LIU Y,CHEN S L.Fish sex-specific molecular marker screening and marker-assisted sex-controlled breeding:history,progress and prospect[J].Journal of Fisheries of China,2023,47(11):32-41.(in Chinese)
[37] HSU P D,LANDER E S,ZHANG F.Development and applications of CRISPR-Cas9 for genome engineering[J].Cell,2014,157(6):1262-1278.
[38] SANDER J D,JOUNG J K.CRISPR-Cas systems for editing,regulating and targeting genomes[J].Nature Biotechnology,2014,32(4):347-355.
[39] RAN F A,HSU P D,WRIGHT J,et al.Genome engineering using the CRISPR-Cas9 system[J].Nature Protocols,2013,8(11):2281-2308.
[40] CECCALDI R,RONDINELLI B,D’ANDREA A D.Repair pathway choices and consequences at the double-strand break[J].Trends in Cell Biology,2016,26(1):52-64.
[41] 曹宝瑞,黄天晴,谷伟,等.基因编辑技术在鱼类遗传育种中的应用[J].水产学杂志,2024,37(4):100-108.CAO B R,HUANG T Q,GU W,et al.Advances of gene editing technology in genetic breeding of fish[J].Chinese Journal of Fisheries,2024,37(4):100-108.(in Chinese)
[42] 范鹏.利用sgRNA优化提高AsCas12f1系统的基因编辑效率及其在小鼠疾病模型构建中的应用[D].长春:吉林大学,2024.FAN P.Construction of genome edited mouse disease model using AsCas12f1 system with engineered sgRNA[D].Changchun:Jilin University,2024.(in Chinese)
[43] GRATACAP R L,WARGELIUS A,EDVARDSEN R B,et al.Potential of genome editing to improve aquaculture breeding and production[J].Trends in Genetics,2019,35(9):672-684.
[44] BAYIR A,SAOULA S,ALMANSOUR A,et al.CRISPR-based genetic improvement of aquaculture species[J].Fishes,2025,10(2):84.
[45] KISHIMOTO K,WASHIO Y,YOSHIURA Y,et al.Production of a breed of red sea bream Pagrus major with an increase of skeletal muscle mass and reduced body length by genome editing with CRISPR/Cas9[J].Aquaculture,2018,495:415-427.
[46] COOGAN M,ALSTON V,SU B F,et al.CRISPR/Cas-9 induced knockout of myostatin gene improves growth and disease resistance in channel catfish (Lctalurus punctatus)[J].Aquaculture,2022,557:738290.
[47] TAO B B,TAN J,CHEN L,et al.CRISPR/Cas9 system-based myostatin-targeted disruption promotes somatic growth and adipogenesis in loach,Misgurnus anguillicaudatus[J].Aquaculture,2021,544:737097.
[48] WU Y,WU T F,YANG L Y,et al.Generation of fast growth Nile tilapia (Oreochromis niloticus) by myostatin gene mutation[J].Aquaculture,2023,562:738762.
[49] YEH Y C,KINOSHITA M,NG T H,et al.Using CRISPR/Cas9-mediated gene editing to further explore growth and trade-off effects in myostatin-mutated F4 medaka (Oryzias latipes)[J].Scientific Reports,2017,7:11435.
[50] YAN M Z,LI B J,WANG J Y,et al.Disruption of mstn gene by CRISPR/Cas9 in large yellow croaker (Larimichthys crocea)[J].Marine Biotechnology,2022,24(4):681-689.
[51] CLEVELAND B M,YAMAGUCHI G,RADLER L M,et al.Editing the duplicated insulin-like growth factor binding protein-2b gene in rainbow trout (Oncorhynchus mykiss)[J].Scientific Reports,2018,8:16054.
[52] EDVARDSEN R B,LEININGER S,KLEPPE L,et al.Targeted mutagenesis in Atlantic salmon (Salmo salar L.) using the CRISPR/Cas9 system induces complete knockout individuals in the F0 generation[J].PLoS One,2014,9(9):e108622.
[53] SIMORA R M C,XING D,BANGS M R,et al.CRISPR/Cas9-mediated knock-in of Alligator cathelicidin gene in a non-coding region of channel catfish genome[J].Scientific Reports,2020,10:22271.
[54] WANG J H,SU B F,XING D,et al.Generation of eco-friendly and disease-resistant channel catfish (Ictalurus punctatus) harboring the Alligator cathelicidin gene via CRISPR/Cas9 engineering[J].Engineering,2024,39:273-286.
[55] NADARAJAPILLAI K,JUNG S,SELLATHTHURAI S,et al.CRISPR/Cas9-mediated knockout of tnf-α1 in zebrafish reduces disease resistance after Edwardsiella piscicida bacterial infection[J].Fish &Shellfish Immunology,2024,144:109249.
[56] SELLATHTHURAI S,JUNG S,KIM M J,et al.CRISPR/Cas9-induced knockout of sting increases susceptibility of zebrafish to bacterial infection[J].Biomolecules,2023,13(2):324.
[57] WIJERATHNA H M S M,JUNG S,LEE J.Enhancing Edwardsiella piscicida resistance through CRISPR/Cas9-mediated deletion of toll-like receptor 5a (tlr5a) in zebrafish[J].Fish &Shellfish Immunology,2026,168:110915.
[58] HALLERMAN E.Genome editing in cultured fishes[J].CABI Agriculture and Bioscience,2021,2(1):46.
[59] LI Q H,SHAO G M,DING Y Y,et al.Effective CRISPR/Cas9-based genome editing in large yellow croaker (Larimichthys crocea)[J].Aquaculture and Fisheries,2023,8(1):26-32.
[60] YANG Z T,FU G H,LEE M,et al.Genes for editing to improve economic traits in aquaculture fish species[J].Aquaculture and Fisheries,2025,10(1):1-18.
[61] KHALIL K,ELAYAT M,KHALIFA E,et al.Generation of myostatin gene-edited channel catfish (Ictalurus punctatus) via zygote injection of CRISPR/Cas9 system[J].Scientific Reports,2017,7:7301.
[62] ZHANG X C,WANG F,DONG Z J,et al.A new strain of yellow catfish carrying genome edited myostatin alleles exhibits double muscling phenotype with hyperplasia[J].Aquaculture,2020,523:735187.
[63] ZHANG X C,WANG F,OU M,et al.Effects of myostatin b knockout on offspring body length and skeleton in yellow catfish (Pelteobagrus fulvidraco)[J].Biology,2023,12(10):1331.
[64] ZHONG Z M,NIU P F,WANG M Y,et al.Targeted disruption of sp7 and myostatin with CRISPR-Cas9 results in severe bone defects and more muscular cells in common carp[J].Scientific Reports,2016,6:22953.
[65] 雷江月,王厚鹏,刘凯,等.高活性HeiCas9蛋白的制备及其在鱼类基因编辑中的应用[J].水生生物学报,2025,49(9):67-75.LEI J Y,WANG H P,LIU K,et al.Preparation of highly active HeiCas9 protein and its application in fish gene editing[J].Acta Hydrobiologica Sinica,2025,49(9):67-75.(in Chinese)
[66] 张龙岗,王俊鹏,和飞,等.CRISPR/Cas9基因编辑技术在鱼类育种中的应用和展望[J].农业科学,2025(11):1335-1344.ZHANG L G,WANG J P,HE F,et al.Application and prospect of CRISPR/Cas9 gene-editing technology in fish breeding[J].Hans Journal of Agricultural Sciences,2025(11):1335-1344.(in Chinese)
[67] YANG Z T,FU G H,LEE M,et al.Genes for editing to improve economic traits in aquaculture fish species[J].Aquaculture and Fisheries,2025,10(1):1-18.
[68] MOKRANI A,LIU S K.Harnessing CRISPR/Cas9 system to improve economic traits in aquaculture species[J].Aquaculture,2024,579:740279.
[69] GAJ T,GERSBACH C A,BARBAS C F.ZFN,TALEN,and CRISPR/Cas-based methods for genome engineering[J].Trends in Biotechnology,2013,31(7):397-405.
[70] ROBINSON N A,ØSTBYE T K K,KETTUNEN A H,et al.A guide to assess the use of gene editing in aquaculture[J].Reviews in Aquaculture,2024,16(2):775-784.
[71] 日本厚生劳动省.ゲノム編集技術応用食品及び添加物の食品衛生上の取扱要領[EB/OL].Tokyo:Ministry of Health,Labour and Welfare,Japan,2019-09-19[2026-04-13].Ministry Of Health,Labour And Welfare,Japan.Handling procedure for foods and food additives produced using genome editing technology[EB/OL].Tokyo:Ministry of Health,Labour and Welfare,Japan,2019-09-19.(in Japanese)
[72] 美国食品药品监督管理局.AquAdvantage Salmon[EB/OL].[2026-04-13].U.S.Food And Drug Administration.AquAdvantage Salmon[EB/OL].[2026-04-13].(in Chinese)
[73] Consumer Affairs Agency,Japan.ゲノム編集技術応用食品及び添加物の食品衛生上の取扱要領に基づき届出された食品及び添加物一覧[EB/OL].[2026-04-13].Consumer Affairs Agency,Japan.List of foods and additives notified based on the handling guidelines for food sanitation of foods and additives using genome editing technology[EB/OL].[2026-04-13].(in Japanese)
[74] 农业农村部.对十四届全国人大一次会议第3420号建议的答复摘要[EB/OL].(2023-08-08)[2026-04-13].Ministry of Agriculture and Rural Affairs.Summary of reply to recommendation No.3420 of the first session of the 14th National People's Congress [EB/OL].(2023-08-08)[2026-04-13].(in Chinese)
[75] 刘永新,邵长伟,侯吉伦,等.中国水产育种研究现状与发展建议[J].水产学报,2023,47(1):54-67.LIU Y X,SHAO C W,HOU J L,et al.Research status and development suggestion of China’s aquaculture breeding[J].Journal of Fisheries of China,2023,47(1):54-67.(in Chinese)
[76] MORAN M N,JONES D B,JENSEN S A,et al.Optimising commercial traits through gene editing in aquaculture:strategies for accelerating genetic improvement[J].Reviews in Aquaculture,2024,16(3):1127-1159.
[77] 张弯弯,易梅生.鱼类干细胞育种技术回顾与展望[J].中国农业科技导报,2022,24(2):26-32.ZHANG W W,YI M S.Application and development prospect of fish stem cell in breeding[J].Journal of Agricultural Science and Technology,2022,24(2):26-32.(in Chinese)