水产养殖在全球食品供应中占据着重要地位,为了促进养殖生物生长和防控病害,抗生素在水产养殖领域被广泛应用。然而,养殖动物对摄入的抗生素无法完全吸收利用。Yang等[1]研究发现,超过70%的抗生素会经机体代谢后排出体外,并以原药或初级代谢产物的形式进入水环境。残留于环境中的抗生素会对微生物群落施加选择性压力,改变细菌对环境中的抗微生物剂的敏感性,从而诱导其产生抗生素抗性基因(antibiotic resistance genes,ARGs)[2]。携带ARGs的抗生素抗性细菌(antibiotic resistant bacteria,ARB)的大量增殖,会加速抗生素抗性基因在细菌群落中的迁移、转化和扩散,最终导致水产养殖环境成为各类ARGs的天然储存库[3]。
水产养殖环境中的ARGs,依据其针对的抗生素类型,主要可分为五大类:磺胺类抗性基因、喹诺酮类抗性基因、β-内酰胺类抗性基因、大环内脂类抗性基因和四环素类抗性基因[4]。ARGs的存在会降低水产动物及养殖环境中致病菌对抗生素的敏感性,削弱治疗效果,造成巨大的经济损失。浮游动物通过摄食作用,可将水体中耐药菌及其携带的ARGs富集于肠道内,或随粪粒沉降至养殖环境中;当水产动物摄食这类携带耐药菌及ARGs的浮游动物后,ARGs可通过肠道菌群定植或胞外DNA吸收途径进入鱼体,最终显著提升水产动物体内潜在致病菌的耐药性风险[5]。据报道,2023年中国水产养殖产业因病害造成的直接经济损失约300亿元,叠加减产、用药成本和品质下降等间接损失,总损失突破500亿元[6]。此外,人类如果摄入受污染的水产品,可能会因此获得ARGs,进而增加感染性疾病的治疗困难[7]。Li等[8]采集藏族腹泻门诊患者的粪便样本,从59份样本中分离48株耐抗生素肠杆菌科(Enterobacteriaceae)细菌,其中17株大肠杆菌分离株均对头孢唑林、头孢曲松和头孢呋辛表现出耐药性。相关调查显示,全球每年至少有70万人死于抗生素耐药性感染,随着耐药性水平的增加,预计2050年这一数字将突破1千万。因此,系统解析水产养殖中的ARGs的来源、传播机制和消除方法等,对保障产业可持续发展和公共卫生安全具有重大意义[9]。
为应对ARGs在水产养殖环境中传播带来的生态与健康风险,本文探讨了水产养殖系统中ARGs的污染特征,涵盖其来源、污染现状与转移规律,并深入剖析了水环境中ARGs各类消除技术的原理与应用效果,以期为制定绿色、高效的水产养殖环境ARGs污染治理策略提供有益参考。
1 水产养殖环境中ARGs的来源和污染现状
1.1 水产养殖环境中ARGs的来源
水产养殖环境中的ARGs主要来源于细菌的内在抗性和外源输入(图1)。细菌的内在抗性是指细菌基因组中本身存在的、可产生抗性表型的基因[10]。细菌拥有ARGs是一种自然现象,其早在3万年前的永久冻土层沉积物中就已存在,是细菌适应自然生态的一种生存方式,体现了细菌基因的多样性[11]。细菌内在抗性产生限制多,基因浓度在自然界中较低,而外源输入是水产养殖环境中ARGs的主要来源。外源输入是指来自水产养殖系统外部的ARGs或相关物,通过各种途径和机制进入水产养殖环境,诱导ARGs产生及传播扩散的过程[12]。水产养殖环境中的ARGs外源输入来源较广,农业种植、畜禽养殖及医疗活动都会因使用抗生素而产生大量ARB及ARGs,并随土壤和水源流入水产养殖环境[13]。在水产养殖过程中,饲料中会不可避免地添加用于预防或治疗细菌感染的抗生素,但仅有一小部分会被吸收利用,其余部分随着排泄物直接或间接地排放到环境中,加速了ARB和ARGs的产生[14]。ARGs在环境中具有持久性、可移动性和可传导性,即使在抗生素选择压力已消除后,ARGs仍可保持在微生物群中,并随着养殖产业链逐级地传播下去[15]。
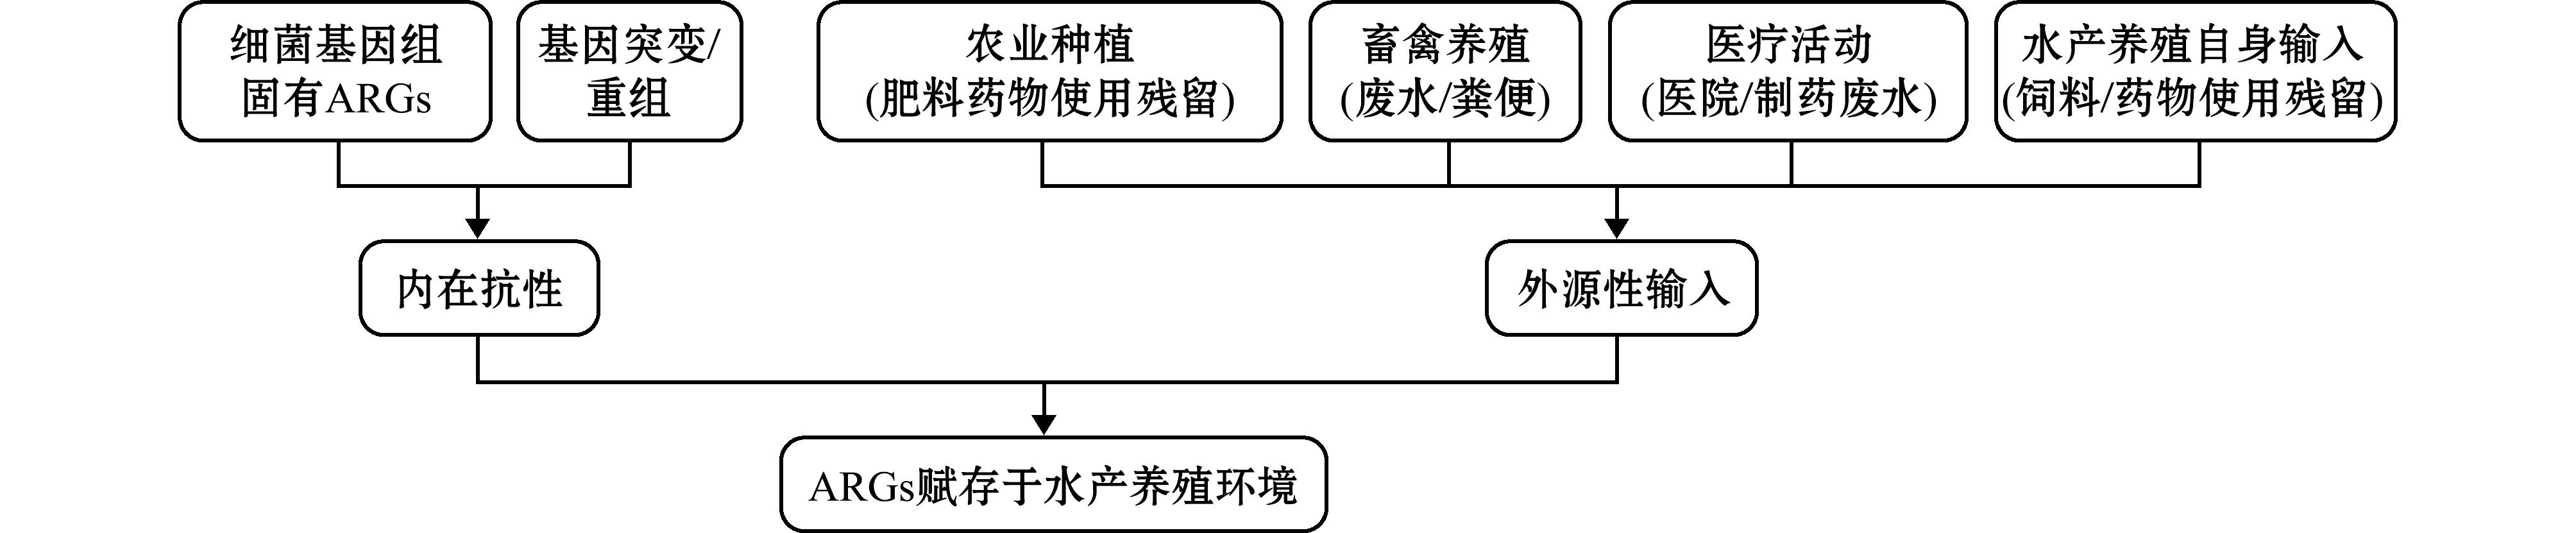
图1 水产养殖环境中的ARGs主要来源
Fig.1 Main sources of ARGs in aquaculture environment
1.2 水产养殖环境中ARGs的污染现状
目前,水产养殖环境中的ARGs污染较为常见,在养殖水体、沉积物、水生生物及病原体等多种介质中被普遍检出(表1)。国内研究显示,在江西南昌黄颡鱼养殖塘的水体、沉积物及黄颡鱼内容物中均检测到多种ARGs,其中tetC、cmlA、floR、sul1、qnrB、blaTEM的检出率为100%[16]。Yuan等[17]采集杭州8个不同位置水产养殖场的污泥样品,检测到sul1、sul2、tetA、tetB、tetC、qnrS和floR等多种抗性基因,其中tetC最为常见。Ye等[18]对广东省珠海市(国内最大斑点海鲈养殖地)6个养殖池塘的研究表明,斑点海鲈肠道中主要的ARGs为floR、sul2和tetM-01,而鳃中则以tetQ、sul1和floR为主。国外水产养殖环境ARGs的污染也类似,哥斯达黎加30个罗非鱼养殖场,有60%的养殖水体检测出链球菌阳性,并显示出以下抗性基因:tetO为29.1%、tetM为12.7%和ermB为1.8%[19]。Ferri等[20]从意大利中部亚得里亚海沿岸3个商业化贻贝养殖场的790个样本中分离出118株肠球菌,其中44株(37.28%)呈现抗生素耐药表型,使用单序列和多序列聚合酶链反应检测到了多种抗生素耐药基因(tetA为49.15%、tetK为16.95%、tetL为15.25%、tetD为7.63%)。
表1 水产养殖环境中ARGs的污染现状
Tab.1 Pollution status of ARGs in aquaculture environment
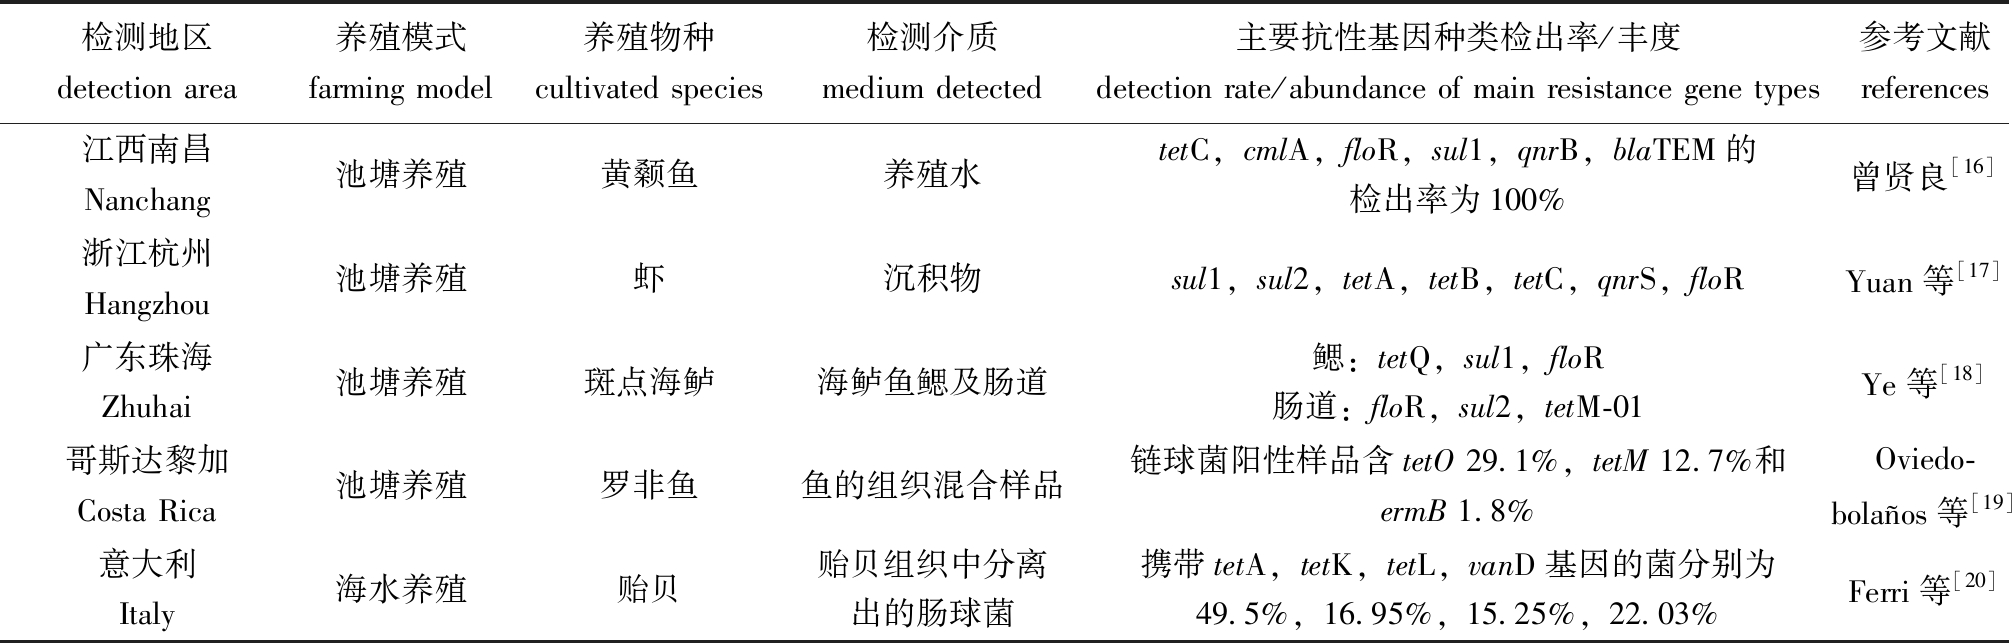
检测地区detection area养殖模式farming model养殖物种cultivated species检测介质medium detected 主要抗性基因种类检出率/丰度detection rate/abundance of main resistance gene types参考文献references江西南昌Nanchang池塘养殖黄颡鱼养殖水tetC,cmlA,floR,sul1,qnrB,blaTEM的检出率为100%曾贤良[16]浙江杭州Hangzhou池塘养殖虾沉积物sul1,sul2,tetA,tetB,tetC,qnrS,floRYuan等[17]广东珠海Zhuhai池塘养殖斑点海鲈海鲈鱼鳃及肠道鳃:tetQ,sul1,floR肠道:floR,sul2,tetM-01Ye等[18]哥斯达黎加Costa Rica池塘养殖罗非鱼鱼的组织混合样品链球菌阳性样品含tetO 29.1%,tetM 12.7%和ermB 1.8%Oviedo-bolaños等[19]意大利Italy海水养殖贻贝贻贝组织中分离出的肠球菌携带tetA,tetK,tetL,vanD基因的菌分别为49.5%,16.95%,15.25%,22.03%Ferri等[20]
可见,无论是国内还是国外的水产养殖环境,ARGs污染已广泛存在于各类介质中。随着水产养殖业的发展,各种新型养殖模式应运而生,却仍难避免抗性基因污染的影响。海水网箱养殖作为利用自然海域开展鱼类集约化养殖的技术,其沉积物中均检测出sul1、tetB、ermB等多种抗性基因;稻渔综合种养等生态模式虽通过减少抗生素使用、优化菌群结构降低了ARGs污染,但细菌群落中四环素类ARGs丰度仍能达到104~105 copies/g[21-22]。Liu等[23]针对一个自称养殖全程未使用任何抗生素的循环水产养殖系统(RAS)养殖场开展采样检测,结果显示,即便经紫外线处理,RAS水体中的ARGs浓度仍高于进水口,其中qnrA、qnrB、qnrS、qepA、aac(6′)-Ib及floR为优势ARGs。这表明无抗生素使用记录的养殖场中,ARGs污染依然普遍存在。
2 水产养殖环境中抗生素抗性基因的转移机制
水产养殖环境中ARGs的转移机制主要包括水平基因转移(horizontal gene transfer,HGT)和垂直基因转移(vertical gene transfer,VGT),VGT是位于染色体上的ARGs通过亲代传递给子代,在生物进化和种群遗传结构中起着基础作用,并维持种群遗传特性[24]。HGT则是ARGs转移的主要机制,即ARGs的可移动性使得其可从一个微生物转移到另一个微生物,使原本不具有抗生素抗性的微生物获得ARGs,并使其适应抗生素[25]。
2.1 HGT的分子传播元件
ARGs发生HGT主要依赖其分子传播元件——可移动遗传元件(mobile genetic elements,MGEs),主要包括质粒、转座子和整合子等。质粒是一种存在于细菌、酵母菌等生物细胞质中的闭合环状双链DNA分子,具有自我复制能力,属于独立的遗传元件[24]。研究表明,质粒可携带多种ARGs,并实现在不同菌种间的水平转移[26]。转座因子是存在于细菌染色体或质粒DNA上的一段特异性核苷酸序列片段,可在基因组中的一个位置移动到另一个位置,也可携带ARGs进行水平转移,加快ARGs的传播[27]。整合子是细菌基因组中常见的多功能基因获得系统,在ARGs的获得、表达和传播中起关键作用[28]。其中,Ⅰ类整合子常与大型转座子(如Tn402)相关联,增强了其在环境中的移动性与适应性;Ⅱ类整合子则通常与转座子tn7关联,有助于其在环境中的稳定存在[28-29]。
2.2 HGT的分子机制
HGT的主要分子机制包括接合、转导和转化(图2),其中接合是最主要方式[30]。接合是遗传物质从供体细胞转移到受体细胞的过程。携带ARGs的供体菌通过性菌毛与受体菌连接形成通道,将携带ARGs的MGEs转移至受体菌,可在同种、种间或属间细菌中进行ARGs转移[30-31]。转化是细菌死亡或代谢释放至环境中游离的含有ARGs的裸露DNA被处于感受态的受体细菌摄入,并在受体菌体内通过同源重组等方法使基因实现功能表达[32]。转化要求受体细菌具有天然感受态。Lorenz等[33]证实,悬浮于未灭菌地下水提取物中的乙酸钙不动杆菌可以通过自然转化摄取质粒DNA。转导是不同细胞间以噬菌体作为载体传递ARGs的方式。具体而言,噬菌体侵染携带ARGs的宿主菌后,在复制和装配新噬菌体颗粒时,可包装进宿主菌的DNA片段(包含ARGs);当这些噬菌体裂解释放并侵染新的宿主菌时,其携带的宿主DNA片段(含ARGs)可能通过重组整合到新宿主菌的基因组中,使其获得抗性[34]。
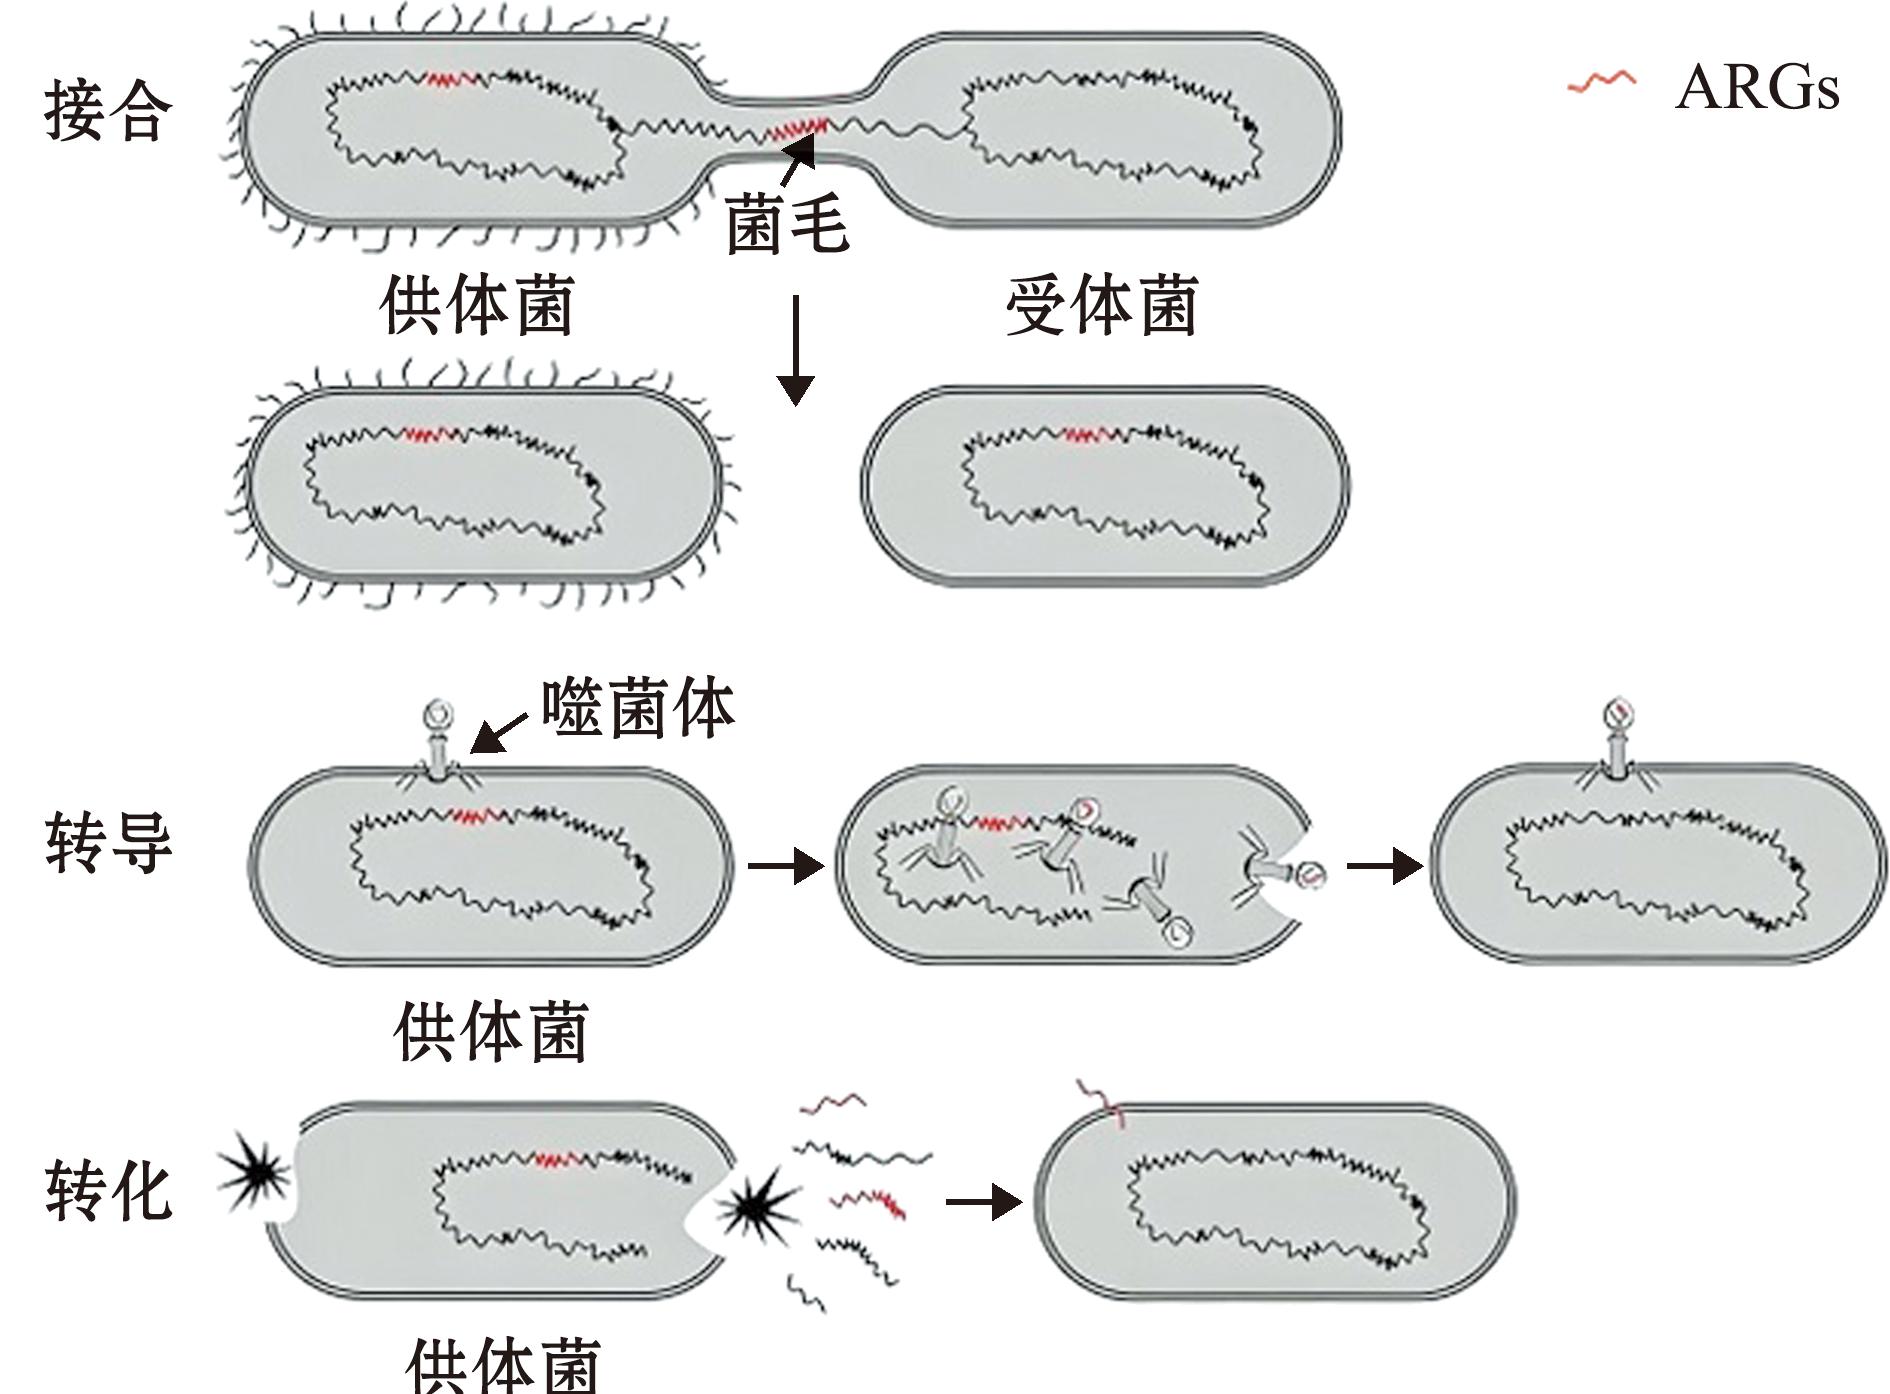
图2 HGT的分子机制
Fig.2 Molecular mechanism of HGT
2.3 水产养殖环境中ARGs传播的影响因素
水产养殖环境中ARGs的传播受多重因素调控,主要影响因素可分为以下三类。
1)养殖区养殖活动。养殖模式、养殖阶段及养殖管理措施均会影响ARGs的富集与传播。如相较于传统集约化养殖模式,稻渔综合种养等新兴生态养殖系统中,细菌群落的四环素类ARGs丰度从106 copies/g降低至104~105 copies/g,原位益生菌逐渐替代耐药菌成为优势类群,直接降低了ARGs的宿主丰度[22]。箱型养殖的ARGs多样性高于围栏养殖,而综合鸭鱼养殖水体中的ARGs丰度低于单一养殖池塘——滤食性鱼类可通过摄食悬浮颗粒物减少ARGs载体。Wu等[21]在不同养殖时期的采样结果显示,ARGs丰度在捕捞期显著高于苗期及饲养期,且具有持留性和增长性。从绝对丰度来看,水产养殖塘沉积物的各类ARGs呈现冬季最高、夏季最低的季节分布规律[35]。此外,养殖过程中使用的抗生素种类也会影响ARGs类型,常年施用磺胺类抗生素的养殖塘,其sul1和sul2基因丰度相较于未使用抗生素的养殖塘高出1~2个数量级[36]。
2)养殖区的水环境因子。He等[37]研究表明,重金属与抗生素共同作用时,可加剧抗生素对养殖环境中菌落的压力,促进产生ARGs,重金属还可使细菌生物膜量增加40%~60%,为ARGs水平转移提供“保护屏障”。刘宣等[38]的研究也证实了高浓度Cu和Zn能够联合养殖过程中残留的抗生素对本土微生物提供协同筛选压力,进而促进ARGs和相关移动基因元件的增殖和散布。温度和溶解氧(DO)变化同样对接合转移具有显著影响:常温15 ℃下,ARGs的接合转移效率是高温37 ℃下的1.43倍,而当DO浓度从5 mg/L降至2 mg/L时,ARGs的接合转移效率下降约33.0%[39]。当养殖水环境pH>8.5时,硝化菌活性降低40%~60%,导致分子氨(NH3)积累,进而诱导细菌氧化应激(ROS水平升高200%),激活SOS响应和整合子(intl1)表达,使含sul1的转座子跳跃频率提高2.3倍[40]。
3)养殖区周边的人为活动因素。微塑料可作为ARGs和耐药细菌的载体,推动二者在水产养殖系统中的迁移和积累,而养殖场周边的人类活动会加重养殖环境中的微塑料污染。唐振平等[41]在研究微/纳米塑料(micro/nano plastics,MPs/NPs)对ARGs转化频率的影响时发现,聚苯乙烯NPs冲击浓度≤50 mg/L时,可显著提高ARGs转化频率;而聚苯乙烯MPs在≤5 mg/L范围内,转化频率随其浓度增加而上升。此外,养殖场附近污水处理厂、垃圾填埋场、沼气厂的运营,以及畜牧生产、粪肥土地施用等农业生产活动,会显著促进ARGs传播,并可能通过增加养殖水环境重金属含量间接加速ARGs的扩散[42]。此外,养殖场自身的抗性基因也会对周边的养殖环境造成污染,Muziasari等[43]在波罗的海渔场下方的沉积物中检测到特定的ARGs富集,但在距离渔场200 m处的沉积物中未发现类似现象;超高通量qPCR技术分析显示,养殖鱼类肠道的基因特征与沉积物中富集的ARGs高度一致。
3 抗生素抗性基因的消除技术
水产养殖水体的水质直接影响养殖效益。养殖过程中,常通过换排水调节水质,导致大量尾水排放。环境友好型水产养殖要求尾水经物理、化学及生物处理后方可排放,以有效去除水中的无机物、有机物和悬浮废物等[44]。然而,中国目前尚未制定针对尾水中ARGs的检测标准及相关管控规范。值得注意的是,不同废水处理方式对ARGs的去除效果存在差异(表2)。
表2 各种技术去除ARGs的效果
Tab.2 Effect removal of ARGs by the various technologies
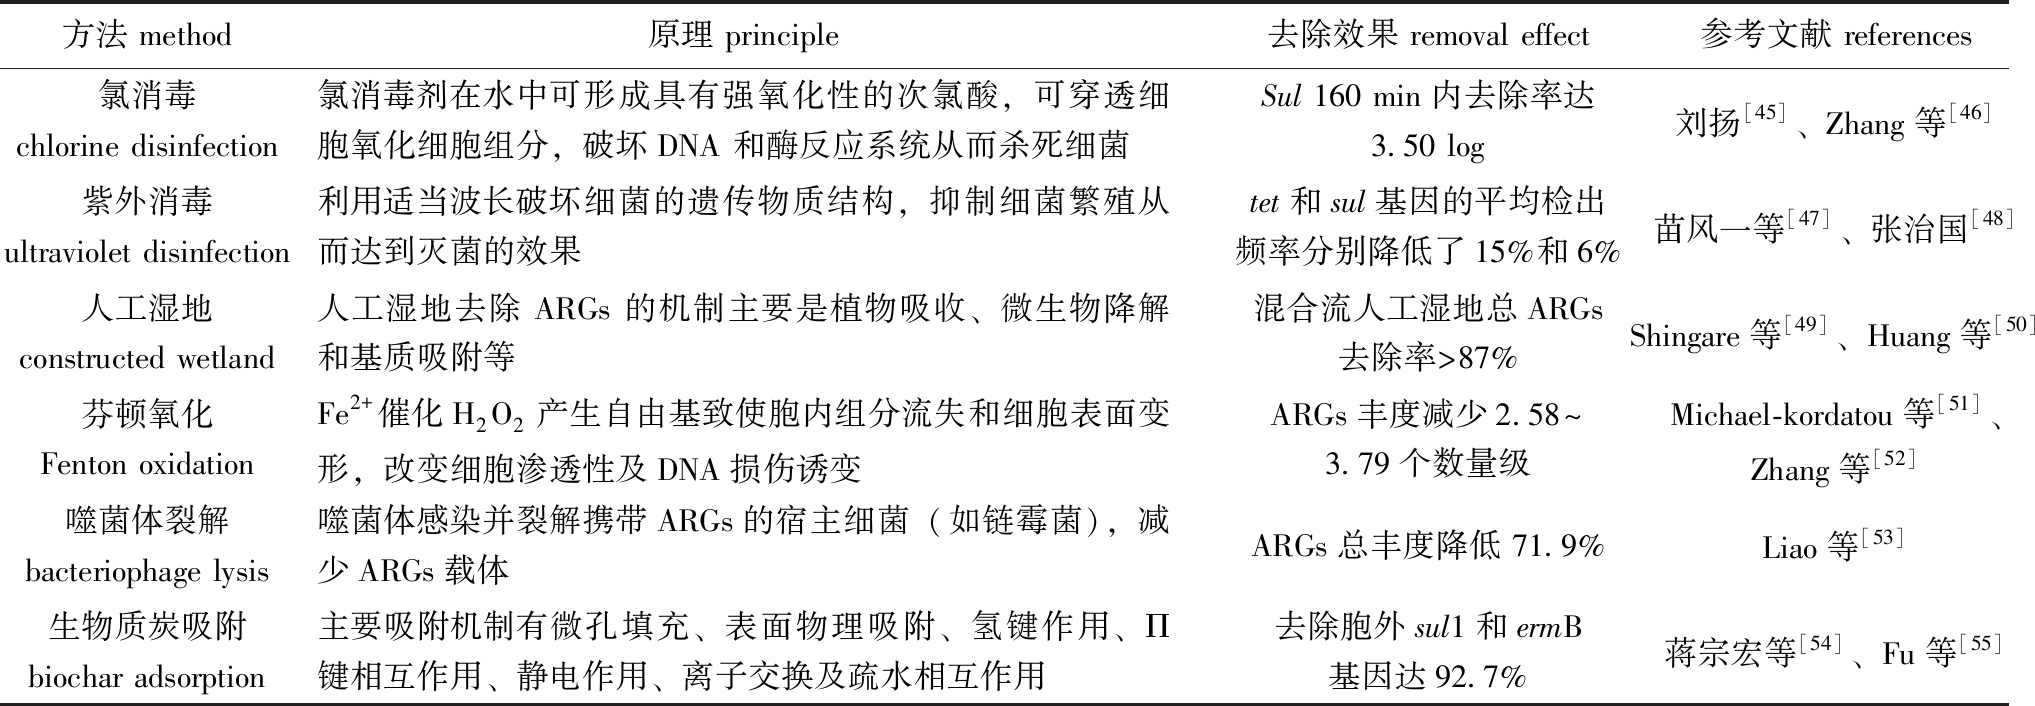
方法 method原理 principle去除效果 removal effect参考文献 references氯消毒chlorine disinfection氯消毒剂在水中可形成具有强氧化性的次氯酸,可穿透细胞氧化细胞组分,破坏DNA 和酶反应系统从而杀死细菌Sul 160 min内去除率达3.50 log刘扬[45]、Zhang等[46]紫外消毒ultraviolet disinfection利用适当波长破坏细菌的遗传物质结构,抑制细菌繁殖从而达到灭菌的效果tet和sul基因的平均检出频率分别降低了15%和6%苗风一等[47]、张治国[48]人工湿地constructed wetland人工湿地去除 ARGs 的机制主要是植物吸收、微生物降解和基质吸附等混合流人工湿地总ARGs去除率>87%Shingare等[49]、Huang等[50]芬顿氧化Fenton oxidationFe2+催化H2O2产生自由基致使胞内组分流失和细胞表面变形,改变细胞渗透性及DNA损伤诱变ARGs丰度减少2.58~3.79个数量级Michael-kordatou等[51]、Zhang等[52]噬菌体裂解bacteriophage lysis噬菌体感染并裂解携带ARGs的宿主细菌(如链霉菌),减少ARGs载体ARGs总丰度降低 71.9%Liao等[53]生物质炭吸附biochar adsorption主要吸附机制有微孔填充、表面物理吸附、氢键作用、Π键相互作用、静电作用、离子交换及疏水相互作用去除胞外sul1和ermB基因达92.7%蒋宗宏等[54]、Fu等[55]
3.1 氯化消毒
氯消毒是污水处理厂常用的消毒方法,通常将氯的投加量维持在0.20~3.70 mg/L以确保最佳的消毒效果[56]。Furukawa等[57]以城市污水处理厂出水中的耐万古霉素肠球菌(Vancomycin-Resistant Enterococci,VRE)为研究对象,发现不同浓度的氯处理可降低VRE浓度,其效果随氯浓度和搅拌时间的增加而增强,当处理条件为5.0 mg/L Cl2(搅拌时间 60 min)或10.0 mg/L Cl2(搅拌时间>10 min)时,虽未检出活体肠球菌,但仍可检测到其抗性基因vanA。另有研究表明,更高浓度的氯(25或30 mg/L Cl2)可有效减少特定ARGs(如sul1、tetX、tetG和int1)[58]。
在水产养殖中,含氯消毒剂不仅用于水体消毒,还可防治鱼类竖鳞病、肠炎病、烂鳃病等。鉴于养殖环境中ARGs的普遍检出,研究者开始探索利用氯消除塘中ARGs的可行性。成旭[59]的研究发现,次氯酸钠处理养殖水体时,有效氯浓度为3 mg/L即可有效去除可培养细菌,当有效氯浓度提升至9 mg/L时,对水体中质粒ARGs也具有一定的去除效果。然而,也有研究指出,氯处理可能促进ARGs的HGT,这可能的机制是:氯灭活耐药菌后,导致胞内ARGs释放到环境中而未能被有效去除,因而会增加水体中的ARGs丰度[60]。如He等[61]研究发现,氯处理后的养殖水体中微生物聚集体增多,且其表面ARGs含量升高。因此,氯消毒技术能否有效消除水产养殖环境中的ARGs污染,仍需更深入的研究。
3.2 紫外消毒
紫外(ultraviolet,UV)消毒可通过直接和间接两种机制进行,其中直接机制是UV光穿透细胞膜后被核酸吸收,导致相邻的胞嘧啶或胸腺嘧啶形成二聚体,破坏遗传物质;间接机制是胞内外光敏物质吸收UV能量后产生活性氧等活性氧化物,进而杀灭细菌[62]。Zheng等[63]以污水处理厂中二次沉淀池中污水为研究对象,发现较低UV剂量(40 mJ/cm2 或更低)对5种tet基因的去除率为52.0%~73.5%,而当剂量提高至160 mJ/cm2 时,tetW基因的去除率可高达92.0%。但需要注意的是,UV消毒后的细菌存在光复活现象,有研究发现,摩根氏菌(Morgenella morganii)在UV消毒后72 h的光复活率可达10.39%,但采用UV和氯联合消毒可显著降低细菌的光复活[64]。在水产养殖应用中,传统的紫外汞光源的发光效率与寿命受温度、供电压波动影响较大,其360°全向发光导致光损失严重,消毒效果不稳定,且受水体浑浊度影响显著[65]。因此,探索适用于水产养殖环境的高效、稳定UV消毒技术仍是未来的重要研究方向。
3.3 人工湿地
人工湿地(constructed wetland,CW)是一种模拟天然湿地建造的生态系统,具有低成本、易维护和可持续发展等特点。不同类型的CW对ARGs的去除效果存在差异。如图3所示,根据水流路径模式,将CW分为表面流、水平潜流和垂直潜流3种主要类型[66]。影响CW去除ARGs效率的关键因素主要有植物种类、基质类型、运行条件和可移动遗传元件等。Chen等[67]设计了4种基质(牡蛎壳、沸石、医疗石和陶瓷)的水平潜流人工湿地用于处理生活污水,结果显示,沸石基质对ARGs的去除效果最好,总去除率达50.0%~85.8%。Feng等[68]利用生物炭基质CWs处理含ARGs的养猪场废水,发现在曝气条件下,系统可有效去除ARGs(0.53~2.14 log)和溶解性有机质(dissolved organic matter,DOM;去除率60%~72%),DOM去除与ARGS消除之间存在显著相关性;而在无曝气(缺氧)条件下,DOM含量升高,部分ARGs(如tetA、tetO、tetW)有增多现象。湿地中植物根系的分泌物如芦苇根际的槲皮素黄酮类分泌物可改变微生物群落结构,使具有ARGs降解能力的菌属(如鞘脂单胞菌属Sphingomonas sp.)丰度提升15倍,ARGs降解速率比非根际区高3倍[69]。然而,无论是在实验室条件还是实际应用场景中,CWs对ARGs的去除效果仍相对有限,这可能是实际场地中微生物群落结构、MGEs丰度、水力负荷等影响因素复杂多变,难以精确调控,导致其去除效率受到制约。
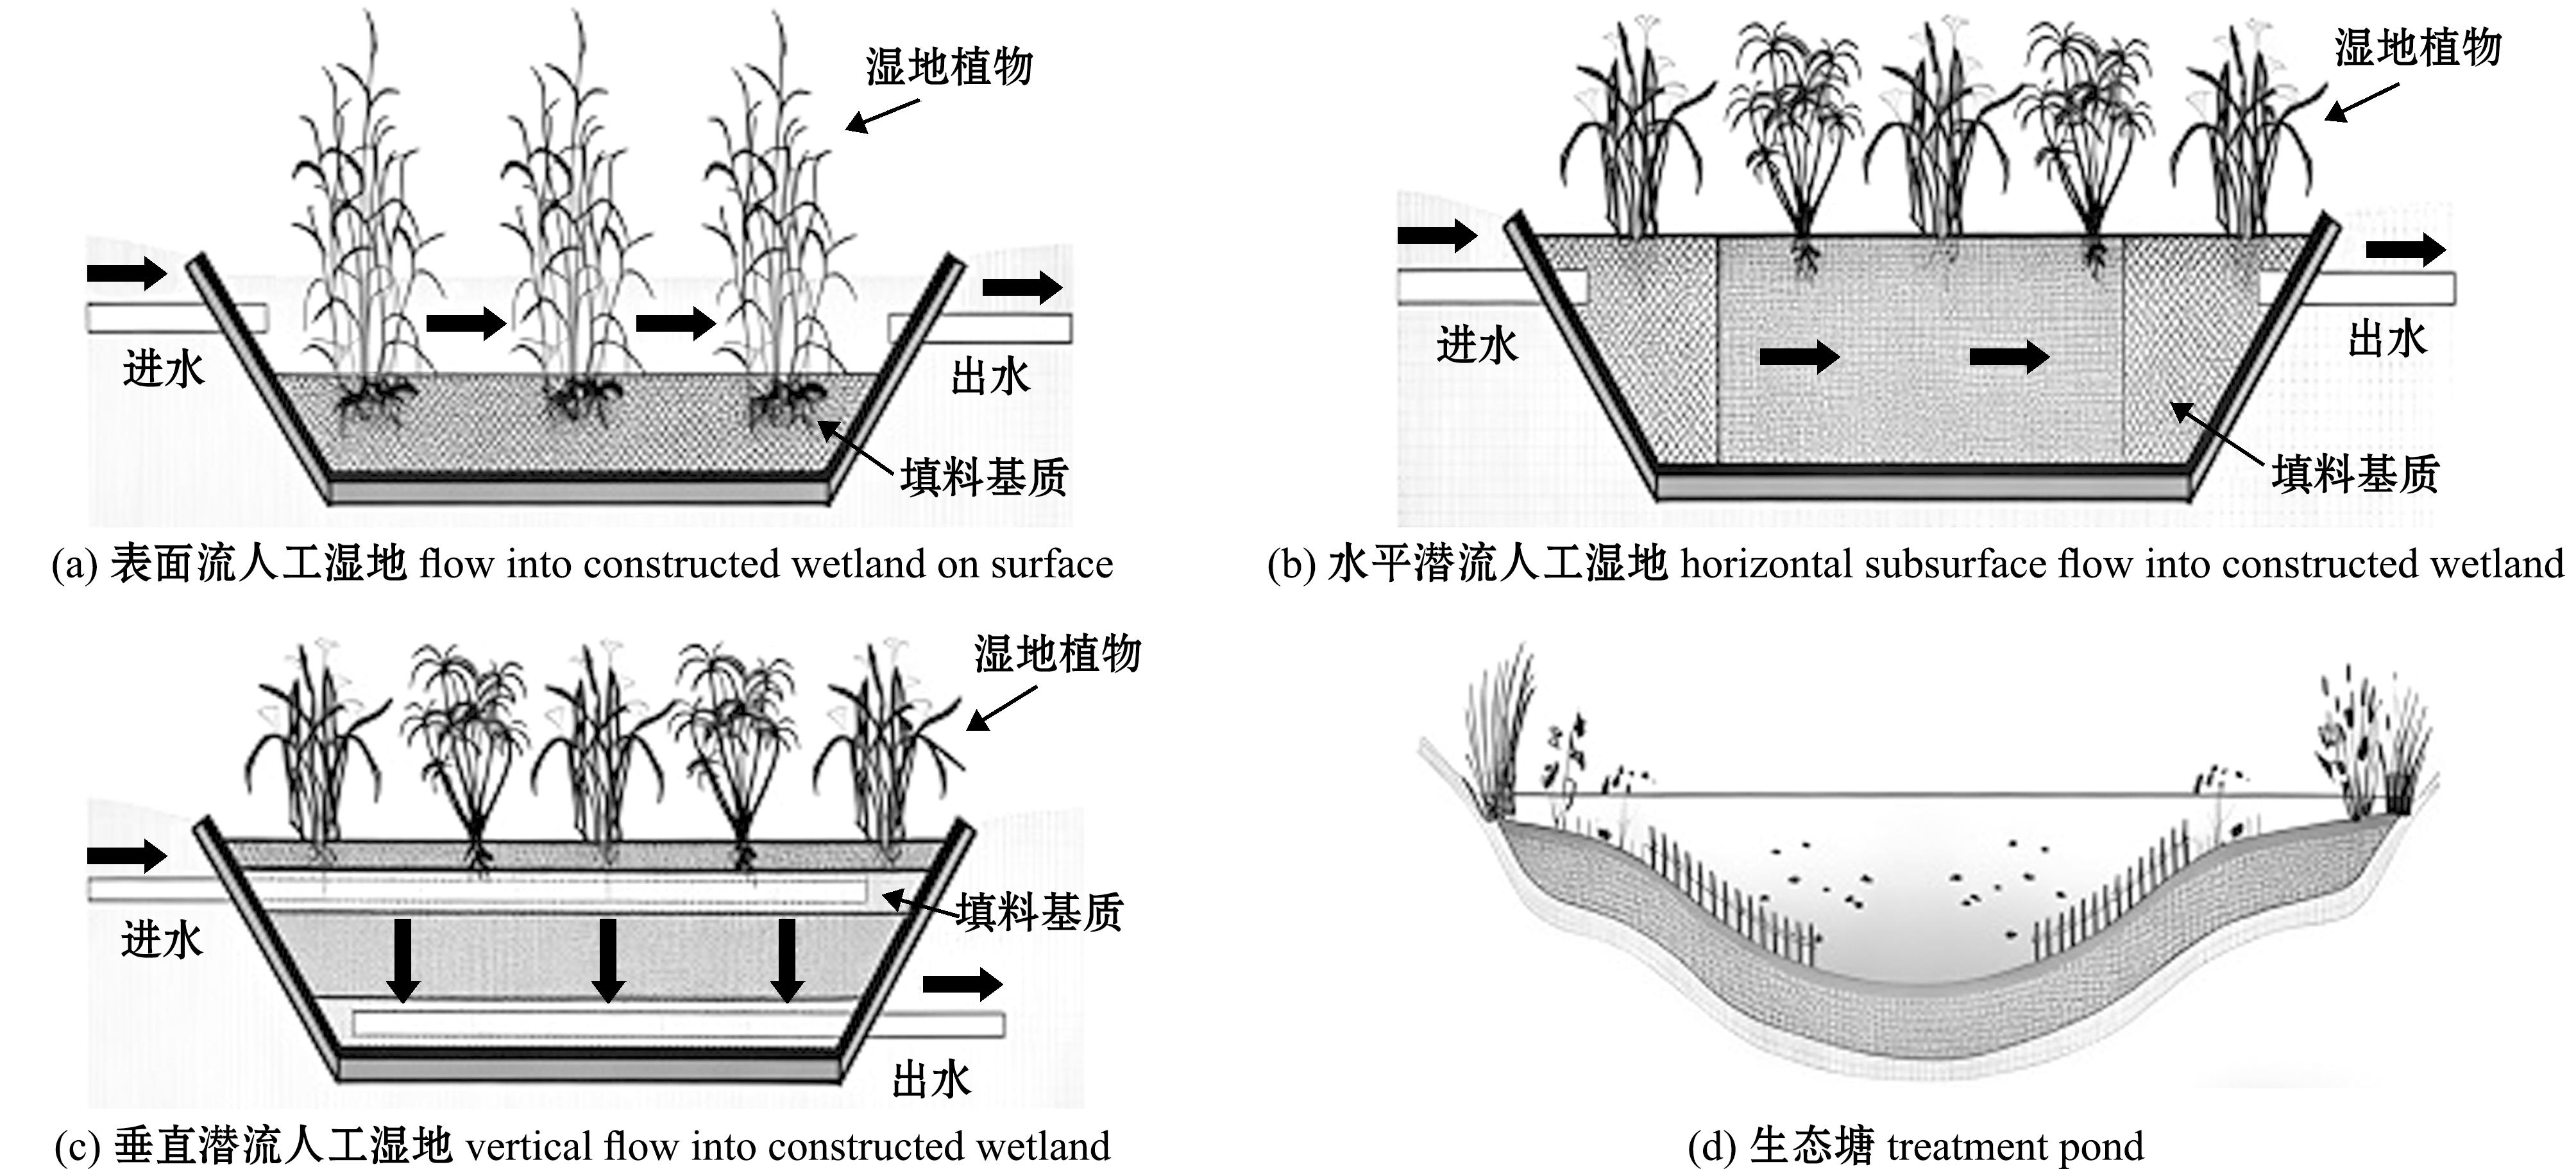
图3 不同类型人工湿地示意图[71]
Fig.3 Schematic diagram of different types of constructed wetlands[71]
3.4 Fenton氧化法
Fenton氧化法能够高效降解多种有毒有害的有机物,反应条件相对温和,且易于与其他技术方法联用。Karaolia等[70]将膜生物反应器与太阳能驱动的Fenton氧化法联用,处理后的污水中,目标细菌(大肠杆菌、铜绿假单胞菌Pseudomonas aeruginosa和克雷伯氏菌Klebsiella)的数量减少99%以上,总DNA浓度平均降低90%。Michael等[72]采用太阳能光芬顿技术(solar photo-fenton,SPF)与颗粒活性炭(granular activated carbon,GAC)组合工艺处理城市污水,发现经60 min的SPF处理后,ARB被完全灭活且24 h内无法恢复生长,废水中的ARGs含量降至检测限以下,而后续GAC工艺可进一步去除废水的毒性。然而,Fenton氧化技术在水产养殖尾水处理中的实际应用仍较为有限。其面临的主要挑战包括:H2O2利用率不高、处理过程可能对养殖生物产生毒性效应、运行成本较高,以及产生含铁污泥等二次污染物需妥善处置[73]。因此,要推动该技术在水产养殖中的广泛应用,还需要深入研究以优化工艺参数、降低处理成本,并最大限度减少其对养殖生态系统的不利影响。
3.5 新兴技术
噬菌体具有严格的宿主特异性,这一特性使其在调控细菌群落的多样性与组成方面发挥着关键作用[74]。在临床领域,噬菌体疗法已被视作对抗多重耐药细菌的潜在有效手段;而在农业场景中,噬菌体鸡尾酒疗法也展现出预防和治理部分土壤传播细菌性作物病害的应用潜力[75]。Liao等[53]从污水处理厂的活性污泥中分离得到一株特异性侵染链霉菌的噬菌体,并分别在重庆与福建的农田土壤中设置活性噬菌体处理组与灭活噬菌体对照组,以探究其对土壤微生物群落的影响。研究结果表明,噬菌体处理使土壤中链霉菌的相对丰度平均下降40%~60%,四环素类、β-内酰胺类等高风险ARGs的丰度降低2~4个数量级,整合子与转座子等可移动遗传元件(MGEs)的丰度也同步下降。这些结果说明,噬菌体可通过抑制链霉菌活性,有效减少ARGs在环境中的水平基因转移潜力。在水产养殖环境中,病原菌种类多样且菌株差异显著,噬菌体靶向单一,难以应对复杂菌群,在处理过程中难以达到预期效果。鉴于此,李馨[76]构建了基于CRISPR-Cas(clustered regularly interspaced short palindromic repeats/CRISPR-associated proteins system)靶向降解抗生素抗性基因的体系,实现了tetA基因的高效靶向降解。CRISPR-Cas系统是原核生物的获得性免疫系统,研究者利用噬菌体为载体构建了“噬菌体-CRISPR”系统,该体系包括pBBR1复制起始位点、选择标记基因、源自Streptococcus pyogenes的Cas9核酸酶及gRNA盒,改造后的噬菌体可以感染特定细菌,从而精准杀伤耐药菌。
生物质炭凭借其丰富的表面官能团、发达的孔隙结构和优异的吸附性能,已成为一种广泛应用于去除废水中有机污染物的新型高效吸附材料。其理化性质主要受制备原料和裂解温度调控。陈志文等[77]以小麦秸秆、芦苇秸秆和猪粪3种农业废弃物为原料制备生物质炭,系统探究了不同裂解温度及溶液阳离子类型对生物质炭去除水中ARGs的影响(表3)。研究发现,当区分原料时:小麦秸秆炭的去除效果受裂解温度和Zeta电位影响;芦苇秸秆炭受裂解温度和比表面积影响;猪粪炭则受裂解温度、pH及H/C与O/C比值影响。若不考虑原料差异,H/C(反映芳香性)、O/C及(O+N)/C(反映疏水性)是影响去除效率的核心因子,其值越高(即芳香性与疏水性越强),对ARGs的去除效率越高。然而,凝胶电泳结果表明,生物质炭无法降解ARGs,其对ARGs的去除主要依赖于吸附作用,在养殖塘内可能被水生生物摄入,引发肠道阻塞或氧化应激。此外,Xie等[78]的研究发现,纳米生物炭能够诱导蚯蚓肠道内的溶原性噬菌体向裂解性噬菌体转变,同时可降低ARB所携带的溶原性噬菌体及其编码的辅助代谢基因的丰度;这一转变过程通过“噬菌体分流”机制破坏了噬菌体与宿主间的互利关系,进而有效抑制ARGs的传播。该研究结果为有机废弃物处理生态系统中噬菌体-宿主协同适应机制探索及耐药性缓解策略制定提供了新的见解。基于以上研究,未来的研究中可进一步探讨不同材质生物质炭的ARGs去除潜力,以及生物炭-微生物耦合技术对ARGs的降解效能。
表3 不同生物质炭在裂解温度300 ℃~700 ℃下的ARGs去除效率
Tab.3 Removal efficiency of ARGs with the different biomass char at various pyrolysis temperatures(300 ℃~700 ℃)
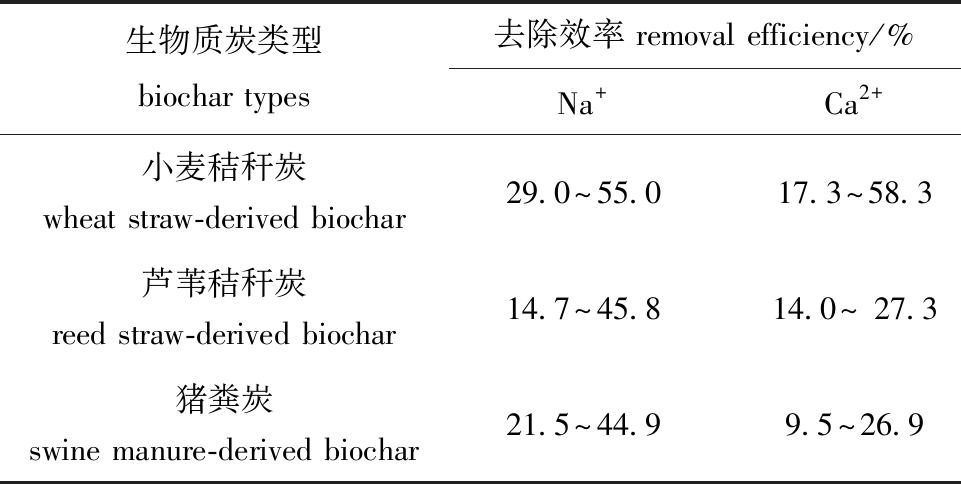
生物质炭类型biochar types去除效率 removal efficiency/%Na+Ca2+小麦秸秆炭wheat straw-derived biochar29.0~55.017.3~58.3芦苇秸秆炭reed straw-derived biochar14.7~45.814.0~ 27.3猪粪炭swine manure-derived biochar21.5~44.99.5~26.9
4 总结与展望
水产养殖环境中ARGs的污染问题日益凸显,已成为全球关注的焦点。ARGs在养殖环境中广泛存在,并可通过多种途径传播扩散,对人类和动物健康构成潜在威胁。目前,针对ARGs的消除技术(如氯消毒、紫外消毒、人工湿地、Fenton氧化法、噬菌体裂解和生物质炭吸附等)虽取得一定进展,但每种技术均存在一定的局限性,距离在水产养殖中的规模化应用与理想效果仍有差距。为应对这一挑战,未来亟需从多维度强化相关工作。
1)强化对水产养殖环境中ARGs污染水平的监测与风险评估,积极研发基于CRISPR与微流控芯片的现场快速检测技术,并构建融合大数据与人工智能的ARGs传播预测与预警平台,为实现精准防控提供科学支撑。
2)重点优化UV/氯联合消毒、人工湿地等现有ARGs控制技术,同步发展光催化、电化学、生物膜耦合等新型处理工艺,着力提升ARGs去除效率、降低运行成本,并尽可能减少对养殖生态系统及水生生物的不良影响。
3)明确抗生素使用量与“耐药性暴发”之间的临界值,制定科学合理的抗生素使用规范,并加强相关法规的执行力度,从源头抑制ARGs的产生与传播。
综上,只有通过上述综合性措施的协同实施,才能有效控制水产养殖环境中ARGs的污染风险,推动水产养殖业向绿色、健康和可持续的方向发展。
[1] YANG Y Y,SONG W J,LIN H,et al.Antibiotics and antibiotic resistance genes in global lakes:a review and meta-analysis[J].Environment International,2018,116:60-73.
[2] ADACHI F,YAMAMOTO A,TAKAKURA K I,et al.Occurrence of fluoroquinolones and fluoroquinolone-resistance genes in the aquatic environment[J].Science of the Total Environment,2013,444:508-514.
[3] GAO H,ZHANG L X,LU Z H,et al.Complex migration of antibiotic resistance in natural aquatic environments[J].Environmental Pollution,2018,232:1-9.
[4] 李兆新,董晓,孙晓杰,等.渔业养殖环境中抗生素残留检测与控制技术研究进展[J].食品安全质量检测学报,2017,8(7):2678-2686.LI Z X,DONG X,SUN X J,et al.Advances in the detection and control of antibiotic residues in aquaculture environments[J].Journal of Food Safety &Quality,2017,8(7):2678-2686.(in Chinese)
[5] WANG C,SONG Y Z,LIANG J X,et al.Antibiotic resistance genes are transferred from manure-contaminated water bodies to the gut microbiota of animals through the food chain[J].Environmental Pollution,2024,363:125087.
[6] 农业农村部渔业渔政管理局.2023中国水生动物卫生状况报告[M].北京:中国农业出版社,2023.Bureau of Fisheries,Ministry of Agriculture and Rural Affairs.2023 Aquatic Animal Health in China[M].Beijing:China Agriculture Press,2023.(in Chinese)
[7] DI CESARE A,LUNA G M,VIGNAROLI C,et al.Aquaculture can promote the presence and spread of antibiotic-resistant Enterococci in marine sediments[J].PLoS One,2013,8(4):e62838.
[8] LI Z,LI J Q,LIU J Q,et al.High carriage of extended-spectrum,beta lactamase-producing,and colistin-resistant Enterobacteriaceae in Tibetan outpatients with diarrhea[J].Antibiotics,2022,11(4):508.
[9] SHANKAR P R,BALASUBRAMANIUM R.Antimicrobial resistance:global report on surveillance[M].Australasian Medical Journal,2014,7(5):237.
[10] DAVIES J,DAVIES D.Origins and evolution of antibiotic resistance[J].Microbiology and Molecular Biology Reviews,2010,74(3):417-433.
[11] D’COSTA V M,KING C E,KALAN L,et al.Antibiotic resistance is ancient[J].Nature,2011,477(7365):457-461.
[12] SUCHLAND R J,SANDOZ K M,JEFFREY B M,et al.Horizontal transfer of tetracycline resistance among Chlamydia spp.in vitro[J].Antimicrobial Agents and Chemotherapy,2009,53(11):4604-4611.
[13] 弥春霞,许澍,王守现,等.糙皮侧耳覆土栽培对土壤中抗生素抗性基因的影响[J].生物技术通报,2025,41(6):335-343.MI C X,XU S,WANG S X,et al.Effect of soil-casing cultivation of Pleurotus ostreatus on antibiotic resistance genes in soil[J].Biotechnology Bulletin,2025,41(6):335-343.(in Chinese)
[14] CHEE-SANFORD J C,MACKIE R I,KOIKE S,et al.Fate and transport of antibiotic residues and antibiotic resistance genes following land application of manure waste[J].Journal of Environmental Quality,2009,38(3):1086-1108.
[15] PRUDEN A,PEI RT,STORTEBOOM H,et al.Antibiotic resistance genes as emerging contaminants:studies in northern Colorado[J].Environmental Science &Technology,2006,40(23):7445-7450.
[16] 曾贤良.黄颡鱼养殖池塘中抗生素抗性基因的分布特征和影响因素研究[D].南昌:江西农业大学,2024.ZENG X L.Distribution characteristics and influence factors of antibiotic resistance genes in yellow catfish aquaculture ponds[D].Nanchang:Jiangxi Agricultural University,2024.(in Chinese)
[17] YUAN J L,NI M,LIU M,et al.Occurrence of antibiotics and antibiotic resistance genes in a typical estuary aquaculture region of Hangzhou Bay,China[J].Marine Pollution Bulletin,2019,138:376-384.
[18] YE L T,LIU G F,YAO T,et al.Monitoring of antimicrobial resistance genes in the spotted sea bass (Lateolabrax maculatus):Association with the microbiome and its environment in aquaculture ponds[J].Environmental Pollution,2021,276:116714.
[19] OVIEDO-BOLA OS K,ABAD RODR
 GUEZ-RODRGUEZ J,SANCHO-BLANCO C,et al.Molecular identification of Streptococcus sp.and antibiotic resistance genes present in Tilapia farms (Oreochromis niloticus) from the Northern Pacific region,Costa Rica[J].Aquaculture International,2021,29(5):2337-2355.
[20] FERRI G,PENNISI L,OLIVIERI V,et al.Antibiotic resistance profiles of Enterococcus spp.isolates discovered from food-producing mussels (Mytilus galloprovincialis) farmed in Central Italy[J].Food Quality and Safety,2025,9:fyaf009.
[21] WU J J,SU Y L,DENG Y Q,et al.Spatial and temporal variation of antibiotic resistance in marine fish cage-culture area of Guangdong,China[J].Environmental Pollution,2019,246:463-471.
[22] HOU YR,DIAO W X,JIA R,et al.Variations in antibiotic resistomes associated with archaeal,bacterial,and viral communities affected by integrated rice-fish farming in the paddy field ecosystem[J].Environmental Research,2024,251:118717.
[23] LIU X,WANG H,ZHAO HM.Propagation of antibiotic resistance genes in an industrial recirculating aquaculture system located at northern China[J].Environmental Pollution,2020,261:114155.
[24] 张骞月,赵婉婉,吴伟.水产养殖环境中抗生素抗性基因污染及其研究进展[J].中国农业科技导报,2015,17(6):125-134.ZHANG Q Y,ZHAO W W,WU W.Antibiotics resistance gene pollution and its research progress acheived in aquaculture environment[J].Journal of Agricultural Science and Technology,2015,17(6):125-134.(in Chinese)
[25] SAAK C C,DINH C B,DUTTON R J.Experimental approaches to tracking mobile genetic elements in microbial communities[J].FEMS Microbiology Reviews,2020,44(5):606-630.
[26] HUDDLESTON J R.Horizontal gene transfer in the human gastrointestinal tract:potential spread of antibiotic resistance genes[J].Infection and Drug Resistance,2014,7:167-176.
[27] 蒋培余,潘劲草.细菌遗传元件水平转移与抗生素抗性研究进展[J].微生物学通报,2006,33(4):167-171.JIANG P Y,PAN J C.Progress in the studies of horizontal transfer of bacteria genetic elements related to antibiotic resistance[J].Microbiology,2006,33(4):167-171.(in Chinese)
[28] GILLINGS M R.Integrons:past,present,and future[J].Microbiology and Molecular Biology Reviews,2014,78(2):257-277.
[29] PARTRIDGE S R,KWONG S M,FIRTH N,et al.Mobile geneticelements associated with antimicrobial resistance[J].Clinical Microbiology Reviews,2018,31(4):e00088-e00017.
[30] OCHMAN H,LAWRENCE J G,GROISMAN E A.Lateral gene transfer and the nature of bacterial innovation[J].Nature,2000,405(6784):299-304.
[31] CABEZ N E,RIPOLL-ROZADA J,PEA A,et al.Towards an integrated model of bacterial conjugation[J].FEMS Microbiology Reviews,2015,39(1):81-95.
[32] 刘一帆,马小涵,刘柳青青,等.溶解性生物炭对水体中转化介导的抗生素抗性基因水平转移的影响[J].中国海洋大学学报(自然科学版),2025,55(3):70-82.LIU Y F,MA X H,LIU L Q Q,et al.Effect of DissolvedBiochar on the horizontal transfer of extracellular antibiotic resistance genes by transformation in aquatic environments[J].Periodical of Ocean University of China(Natural Science Edition),2025,55(3):70-82.(in Chinese)
[33] LORENZ M G,REIPSCHL GER K,WACKERNAGEL W.Plasmid transformation of naturally competent Acinetobacter calcoaceticus in non-sterile soil extract and groundwater[J].Archives of Microbiology,1992,157(4):355-360.
[34] BALC ZAR J L.How do bacteriophages promote antibiotic resistance in the environment [J].Clinical Microbiology and Infection,2018,24(5):447-449.
[35] 叶映仪,侯庆华,蓝东和,等.湛江湾抗生素抗性基因的时空分布及其影响因素[J].大连海洋大学学报,2023,38(2):291-301.YE Y Y,HOU Q H,LAN D H,et al.Spatiotemporal distribution and influencing factors of antibiotic resistance genes in Zhanjiang Bay[J].Journal of Dalian Ocean University,2023,38(2):291-301.(in Chinese)
[36] SUZUKI S,NAKANISHI S,TAMMINEN M,et al.Occurrence ofSul and Tet(M) genes in bacterial community in Japanese marine aquaculture environment throughout the year:Profile comparison with Taiwan residents and Finnish aquaculture waters[J].Science of the Total Environment,2019,669:649-656.
[37] HE X L,XU Y B,CHEN J L,et al.Evolution of corresponding resistance genes in the water of fish tanks with multiple stresses of antibiotics and heavy metals[J].Water Research,2017,124:39-48.
[38] 刘萱,赵慧敏,王华,等.大连典型滩涂养殖区沉积物中抗生素协同重金属和环境因素对抗性基因分布的影响[J].大连海洋大学学报,2020,35(2):229-238.LIU X,ZHAO H M,WANG H,et al.Impacts of heavy metals and environmental factors assisted antibiotics on antibiotic resistance genes in sediments in Dalian typical intertidal mudflat culture areas[J].Journal of Dalian Ocean University,2020,35(2):229-238.(in Chinese)
[39] 侯雨橙,张越,潘维强,等.水质因子对抗生素抗性基因水平转移的影响及生物炭阻控作用[J/OL].农业环境科学学报,1-19[2026-05-19].https://link.cnki.net/urlid/12.1347.S.20250923.1709.002.HOU Y C,ZHANG Y,PAN W Q,et al.Effects of water quality factors on horizontal transfer of antibiotic resistance genes and the blocking effect of biochar [J/OL].Journal of Agro-Environment Science,1-19[2026-05-19].https://link.cnki.net/urlid/12.1347.S.20250923.1709.002.(in Chinese)
[40] ZHANG J Y,BUHE C,YU D W,et al.Ammonia stress reduces antibiotic efflux but enriches horizontal gene transfer of antibiotic resistance genes in anaerobic digestion[J].Bioresource Technology,2020,295:122191.
[41] 唐振平,龚子璇,刘博阳,等.聚苯乙烯微(纳)塑料对抗生素抗性基因转移的影响及其机制[J].能源环境保护,2025,39(1):165-172.TANG Z P,GONG Z X,LIU B Y,et al.Influence and mechanisms of polystyrene micro/nanoplastics on the transfer of antibiotic resistance genes[J].Energy Environmental Protection,2025,39(1):165-172.(in Chinese)
[42] CZATZKOWSKA M,WOLAK I,HARNISZ M,et al.Impact of anthropogenic activities on the dissemination of ARGs in the environment:a review[J].International Journal of Environmental Research and Public Health,2022,19(19):12853.
[43] MUZIASARI W I,PITKNEN L K,SØRUM H,et al.The resistome of farmed fish feces contributes to the enrichment of antibiotic resistance genes in sediments below Baltic Sea fish farms[J].Frontiers in Microbiology,2017,7:2137.
[44] 朱文婷,宣雄智,张宇,等.常见水产养殖尾水处理技术与模式[J].河南农业,2025(1):80-82.ZHU W T,XUAN X Z,ZHANG Y,et al.Common aquaculture tail water treatment technologies and models[J].Agriculture of Henan,2025(1):80-82.(in Chinese)
[45] 刘扬.医院废水中耐药菌的消毒及其耐药性传播特征[D].杭州:浙江大学,2020.LIU Y.Disinfection of antibiotic resistant bacteria in hospital wastewater and its drug-resistant transmission characteristics[D].Hangzhou:Zhejiang University,2020.(in Chinese)
[46] ZHANG T Y,HU Y R,JIANG L,et al.Removal of antibiotic resistance genes and control of horizontal transfer risk by UV chlorination and UV/chlorination treatments of drinking water[J].Chemical Engineering Journal,2019,358:589-597.
[47] 苗风一,陈浪,曹雄晶,等.基于深紫外激光的水中大肠杆菌消杀灭活方法研究[J].机电工程技术,2025,54(5):93-96.MIAO F Y,CHEN L,CAO X J,et al.Research on the method of disinfecting and inactivating Escherichia coli in water based on deep ultraviolet laser[J].Mechanical &Electrical Engineering Technology,2025,54(5):93-96.(in Chinese)
[48] 张治国.紫外消毒对污水处理厂二级出水中抗生素抗性菌和抗性基因去除的影响和机理研究[D].南京:东南大学,2019.ZHANG Z G.Effects and mechanisms of UV disinfection on the removal of antibiotic-resistant bacteria and antibiotic resistance genes in secondary effluent from wastewater treatment plants[D].Nanjing:Southeast University,2019.(in Chinese)
[49] SHINGARE R P,THAWALE P R,RAGHUNATHAN K,et al.Constructed wetland for wastewater reuse:Role and efficiency in removing enteric pathogens[J].Journal of Environmental Management,2019,246:444-461.
[50] HUANG X F,LUO Y,LIU Z L,et al.Influence of two-stage combinations of constructed wetlands on the removal of antibiotics,antibiotic resistance genes and nutrients from goose wastewater[J].International Journal of Environmental Research and Public Health,2019,16(20):4030.
[51] MICHAEL-KORDATOU I,KARAOLIA P,FATTA-KASSINOS D.The role of operating parameters and oxidative damage mechanisms of advanced chemical oxidation processes in the combat against antibiotic-resistant bacteria and resistance genes present in urban wastewater[J].Water Research,2018,129:208-230.
[52] ZHANG Y Y,ZHUANG Y,GENG J J,et al.Reduction of antibiotic resistance genes in municipal wastewater effluent by advanced oxidation processes[J].Science of the Total Environment,2016,550:184-191.
[53] LIAO H P,WEN C,HUANG D,et al.Harnessing phage consortia to mitigate the soil antibiotic resistome by targeting keystone taxa Streptomyces[J].Microbiome,2025,13(1):127.
[54] 蒋宗宏,陈淼,李心清,等.改性生物炭对水体中抗生素的去除研究进展[J].环境化学,2021,40(12):3846-3860.JIANG Z H,CHEN M,LI X Q,et al.Research progress on the removal of antibiotics in water by modified biochar[J].Environmental Chemistry,2021,40(12):3846-3860.(in Chinese)
[55] FU Y H,WANG F,SHENG H J,et al.Removal of extracellular antibiotic resistance genes using magnetic biochar/quaternary phosphonium salt in aquatic environments:a mechanistic study[J].Journal of Hazardous Materials,2021,411:125048.
[56] 高艳莉.城市污水厂消毒工艺技术的选择和应用研究[J].科技资讯,2024,22(18):175-177.GAO Y L.Research on selection and application of disinfection technology for urban sewage treatment plants[J].Science &Technology Information,2024,22(18):175-177.(in Chinese)
[57] FURUKAWA T,JIKUMARU A,UENO T,et al.Inactivation effect of antibiotic-resistant gene using chlorine disinfection[J].Water,2017,9(7):547.
[58] YUAN Q B,GUO M T,YANG J.Fate of antibiotic resistant bacteria and genes during wastewater chlorination:implication for antibiotic resistance control[J].PLoS One,2015,10(3):e0119403.
[59] 成旭.水产养殖场沉积物中细菌群落和抗生素抗性基因的组成、丰度和消除研究[D].杨凌:西北农林科技大学,2022.CHENG X.Study on the composition,abundance,elimination of bacterial communities and antibiotic resistance genes from the aquaculture sediments[D].Yangling:Northwest A &F University,2022.(in Chinese)
[60] LIU S S,QU H M,YANG D,et al.Chlorine disinfection increases both intracellular and extracellular antibiotic resistance genes in a full-scale wastewater treatment plant[J].Water Research,2018,136:131-136.
[61] HE L Z,ZHANG M,LI J H,et al.Aquaculture oxidant (ClO2) or antibiotic disinfection induces unique bimodal aggregation and boosts exDNA sedimentation:a disinfection-driven great spatial shift of antibiotic resistance risk[J].Water Research,2025,270:122820.
[62] AL-JASSIM N,MANTILLA-CALDERON D,WANGtiannyu,et al.Inactivation and gene expression of a virulent wastewater Escherichia coli strain and the nonvirulent commensal Escherichia coli DSM1103 strain upon solar irradiation[J].Environmental Science &Technology,2017,51(7):3649-3659.
[63] ZHENG J,SU C,ZHOU J W,et al.Effects and mechanisms of ultraviolet,chlorination,and ozone disinfection on antibiotic resistance genes in secondary effluents of municipal wastewater treatment plants[J].Chemical Engineering Journal,2017,317:309-316.
[64] WANG H C,WANG J,LI S M,et al.Synergistic effect of UV/chlorine in bacterial inactivation,resistance gene removal,and gene conjugative transfer blocking[J].Water Research,2020,185:116290.
[65] 邵子轩,魏秋华,任哲,等.LED紫外消毒装置消毒效果及其影响因素研究[J].中国消毒学杂志,2024,41(7):481-484.SHAO Z X,WEI Q H,REN Z,et al.Study on the disinfection effect and influencing factors of LED ultraviolet disinfection device[J].Chinese Journal of Disinfection,2024,41(7):481-484.(in Chinese)
[66] 刘岩,陈永杰,尚怡君,等.人工湿地消减废水中抗生素抗性基因的研究进展[J].科技通报,2024,40(12):1-8.LIU Y,CHEN Y J,SHANG Y J,et al.A review on mitigating antibiotic resistance genes from waste water by constructed wetland[J].Bulletin of Science and Technology,2024,40(12):1-8.(in Chinese)
[67] CHEN J,WEI X D,LIU Y S,et al.Removal of antibiotics and antibiotic resistance genes from domestic sewage by constructed wetlands:Optimization of wetland substrates and hydraulic loading[J].Science of the Total Environment,2016,565:240-248.
[68] FENG L K,WU H M,ZHANG J,et al.Simultaneous elimination of antibiotics resistance genes and dissolved organic matter in treatment wetlands:Characteristics and associated relationship[J].Chemical Engineering Journal,2021,415:128966.
[69] PATIL J R,MHATRE K J,YADAV K,et al.Flavonoids in plant-environment interactions and stress responses[J].Discover Plants,2024,1(1):68.
[70] KARAOLIA P,MICHAEL-KORDATOU I,HAPESHI E,et al.Investigation of the potential of a membrane BioReactor followed by solar Fenton oxidation to remove antibiotic-related microcontaminants[J].Chemical Engineering Journal,2017,310:491-502.
[71] 杨晶涵,余凯锋.人工湿地组合技术用于污水处理的研究进展[J].应用化工,2021,50(3):769-773.YANG J H,YU K F.Research progress on combined constructed wetland technologies in wastewater treatment[J].Applied Chemical Industry,2021,50(3):769-773.(in Chinese)
[72] MICHAEL S G,MICHAEL-KORDATOU I,BERETSOU V G,et al.Solar photo-Fenton oxidation followed by adsorption on activated carbon for the minimisation of antibiotic resistance determinants and toxicity present in urban wastewater[J].Applied Catalysis B:Environmental,2019,244:871-880.
[73] JIA W Q,SONG J Y,WANG J,et al.Fenton oxidation treatment of oxytetracycline fermentation residues:Harmless performance and bioresource properties[J].Chemosphere,2023,336:139201.
[74] CHEVALLEREAU A,PONSB J,VAN HOUTE S,et al.Interactions between bacterial and phage communities in natural environments[J].Nature Reviews Microbiology,2022,20(1):49-62.
[75] STRATHDEES A,HATFULL G F,MUTALIK V K,et al.Phage therapy:From biological mechanisms to future directions[J].Cell,2023,186(1):17-31.
[76] 李馨.基于CRISPR-Cas的抗生素抗性基因靶向降解研究[D].济南:山东大学,2022.LI X.Tailoring CRISPR-cas immunity for the targeted degradation of antibiotic resistance gene[D].Jinan:Shandong University,2022.(in Chinese)
[77] 陈志文,高旋,侯雨橙,等.生物质炭对水中抗生素抗性基因的去除及影响因素[J].农业资源与环境学报,2025,42(2):421-429.CHEN Z W,GAO X,HOU Y C,et al.Removal of antibiotic resistance genes from water by biochar and its influencing factors[J].Journal of Agricultural Resources and Environment,2025,42(2):421-429.(in Chinese)
[78] XIE T,LIN D,CAI X D,et al.Nano-biochar regulates phage-host interactions,reducing antibiotic resistance genes in vermicomposting systems[J].Proceedings of the National Academy of Sciences of the United States of America,2025,122(34):e2511986122.