扇贝是中国重要的海洋生物资源和水产品之一,不仅具有显著的经济价值,还在海洋生态系统中扮演着重要的生态角色,根据《2025中国渔业统计年鉴》,2024年全国扇贝产量为194.7万t,养殖面积达35万hm2。扇贝的闭壳肌是实现快速闭壳运动的核心器官,其结构和功能的完整性对扇贝的生存至关重要[1]。同时,扇贝闭壳肌因具有较好的风味和丰富的营养物质,成为主要的食用部位和加工部位[1-2]。研究表明,栉孔扇贝(Chlamys farreri)的养殖周期为24个月,其中12月龄(翌年4月)为栉孔扇贝稚贝闭壳肌的快速发育时期[3]。然而,由于扇贝以滤食方式摄食海洋颗粒物质,其极易受到镉(Cadmium,Cd)等重金属污染物的影响,甚至有学者将扇贝称为Cd的超级富集生物[4]。有研究发现,扇贝在未受污染的水体(高于海水Ⅱ类水质标准)中也会不断蓄积Cd至较高浓度,生物富集系数(BCF-Cd)超过10 000,是其他重金属的10~1 000倍,确证了扇贝对Cd的超富集能力[5]。
Cd是一种广泛存在的重金属污染物,因其毒性强、累积性高,对生态系统、食品安全和人类健康具有严重影响进而引发了广泛关注。Cd可通过多种途径(包括工业排放、农业活动和城市废弃物等)进入海洋环境,还可能通过食物链传递,从而对人类健康造成潜在威胁[6]。已有研究证实,海洋生物长期接触Cd会导致过度生物蓄积,从而产生多种不利影响[7]:在生理层面上,Cd会导致新陈代谢、生殖过程和免疫应答等功能紊乱,引发氧化应激、能量代谢功能障碍、组织病理学变化及生长抑制等一系列毒理学影响[8-10];在细胞与分子层面,Cd不仅会干扰正常的细胞信号转导,诱导细胞凋亡[11],还可能引起DNA损伤、细胞自噬[12]。近年来,应用代谢组学技术探究双壳贝类中Cd的积累特征与毒性机制方面取得了重要进展,如Cd暴露会引起牡蛎脂肪酸、丙氨酸和精氨酸代谢的变化[10],显著干扰蛤蜊的糖酵解过程和三羧酸循环(tricarboxylic acid cycle,TCA cycle)[13],造成扇贝的脂质过氧化、磷脂类代谢等生化途径发生改变[14]。但是,上述关于双壳贝类在Cd胁迫下的代谢响应研究主要集中于内脏团和鳃,而闭壳肌作为决定扇贝生理活性的主要运动器官和影响经济价值的重要可食组织,其在Cd暴露下的组织特异性代谢响应变化及其调控机制研究仍较为缺乏,也未筛选出明确的诊断标志物。这一研究空白限制了对扇贝高Cd累积能力内在机制及其代谢适应策略的认知。
本研究中通过代谢组学方法,对高Cd积累的扇贝进行代谢特征分析,系统探讨了Cd积累对扇贝闭壳肌代谢路径的影响,并筛选与高Cd积累相关的潜在诊断标志物,为探究扇贝中Cd高累积机制和海洋环境重金属污染防控提供了参考依据。
1 材料与方法
1.1 材料
暴露试验采用快速生长期的栉孔扇贝稚贝(12月龄),稚贝购自山东省青岛市黄岛区龙门顶码头聚大洋集团。
1.2 方法
1.2.1 暴露试验设计 Cd室内暴露试验设置2个浓度组:1)对照组,使用清洁自然海水;2)暴露试验组,使用氯化镉(CdCl2·2.5H2O,分析纯,国药集团化学试剂有限公司)配制浓度为1 mg/L的母液,用于配制Cd2+浓度为0.5 mg/L的海水。每个浓度设置3个平行,每个平行放养40只扇贝,试验所用养殖箱规格为50 cm×40 cm×30 cm的塑料转运箱。胁迫试验暴露期为14 d,试验期间每天更换海水,同时补充损失的Cd2+。分别取对照组和暴露组第0 d(CK组)、7 d(Expo7 &CK7)、14 d(Expo14 &CK14)的扇贝,每组各放置10只,取其闭壳肌,液氮速冻后转移至-80 ℃冰箱中以供测试分析。
1.2.2 代谢物提取 于冰上将闭壳肌充分切碎混匀后,精确称取20 mg置于离心管中,使用冷冻研磨仪(SCIENTZ研磨仪,宁波新芝生物科技股份有限公司)进行匀浆。随后4 ℃下以3 000 r/min离心30 s。加入400 μL预冷的70%甲醇(质谱纯,德国Merck公司)水溶液(含内标)进行提取,以1 500 r/min振荡5 min,冰浴静置15 min。之后在4 ℃下以12 000 r/min离心10 min,吸取300 μL上清液,于-20 ℃静置30 min。再次在4 ℃下以12 000 r/min离心3 min,最终取200 μL上清至内衬管,供上机分析。
1.2.3 色谱条件及质谱条件 色谱条件:使用高效液相色谱(LC-30A,Shimadzu公司)进行色谱分析。色谱分离采用Waters ACQUITY Premier HSS T3色谱柱(2.1 mm×100 mm,1.8 μm),柱温维持40 ℃。流速设定为0.40 mL/min,进样体积为4 μL。流动相由0.1%甲酸(质谱纯,美国Fisher公司)水溶液(A)和0.1%甲酸乙腈(B)(质谱纯,德国Merck公司)组成,梯度洗脱程序如下:0 min,5%B;2.0 min,20%B;5.0 min,60%B;6.0~7.5 min,99%B;7.6~10.0 min,5%B。
质谱条件:使用质谱仪(TripleTOF 6600+,SCIEX公司)进行质谱分析。采用正、负离子扫描模式采集质谱信号。离子源温度(正离子模式)为550 ℃,离子源温度(负离子模式)为450 ℃;喷雾气压50 psi;辅助气压50 psi;气帘气压35 psi;喷雾电压(正离子模式)为5 500 V,喷雾电压(负离子模式)为-4 500 V;去簇电压为60 V;离子碰撞能量10 eV;质量扫描范围50~1 000 m/z。
1.3 数据处理
将暴露试验样品的质谱数据导入Peak View进行筛查,通过精确的质量比和同位素丰度比确定了常见离子的分子式,并在Master View中结合代谢物数据库建立的目标筛查列表开展非靶向代谢组学代谢物匹配,最终得到包含保留时间、质荷比和峰强度等信息的数据矩阵用于后续分析。
采用MetaboAnalyst 6.0(https://www.metaboanalyst.ca/MetaboAnalyst/)对预处理后的代谢组学数据进行主成分分析(principal component analysis,PCA),以判定各样本间的差异大小。并对差异代谢物进行筛选,其中变量重要性投影(variable importance in projection,VIP)大于1且P value<0.05(student’s T-test)的代谢物为显著差异代谢物。通过功能分析和富集分析两大模块进行的代谢通路富集分析,以P<0.05为条件筛选显著富集的通路。
2 结果与分析
2.1 代谢组数据分析及差异代谢物筛选
为了探明扇贝闭壳肌在Cd胁迫下的代谢组表征及筛选潜在诊断标志物,采用LC-QTOF对样品进行代谢组分的非靶向筛查与鉴定,所有样本在正离子和负离子模式下分别检测到1 751、991种代谢产物,所有鉴定出来的代谢物类别主要包括氨基酸及其代谢物、碳水化合物及其代谢物、核苷酸及其代谢物、有机酸及其衍生物,以及脂类等。以VIP>1,P<0.05为条件筛选差异代谢物(DAMs,differentially abundant metabolites),结果如图1(a)、(b)所示,与对照组(CK)相比,Expo7组(Expo7 vs CK7组,以下简称“Expo7组”)筛选出154种差异代谢物,其中107种上调、47种下调;Expo14组(Expo14 vs CK14组,以下简称“Expo14组”)筛选出232种差异代谢物,其中123种上调、109种下调;将Expo7组和Expo14组差异代谢物对比分析,发现共有157种代谢物发生显著改变,其中68种上调、89种下调。与Expo7组相比,Expo14组有更多的差异代谢物。为了展示不同暴露时间下的代谢响应,将差异代谢物进行聚类分析,并以热图的方式直观表达(图1(c)~(e)),结果表明,不同组间的差异代谢物表达丰度呈现动态变化,证明Cd暴露使栉孔扇贝稚贝闭壳肌细胞中众多代谢过程发生了显著改变。
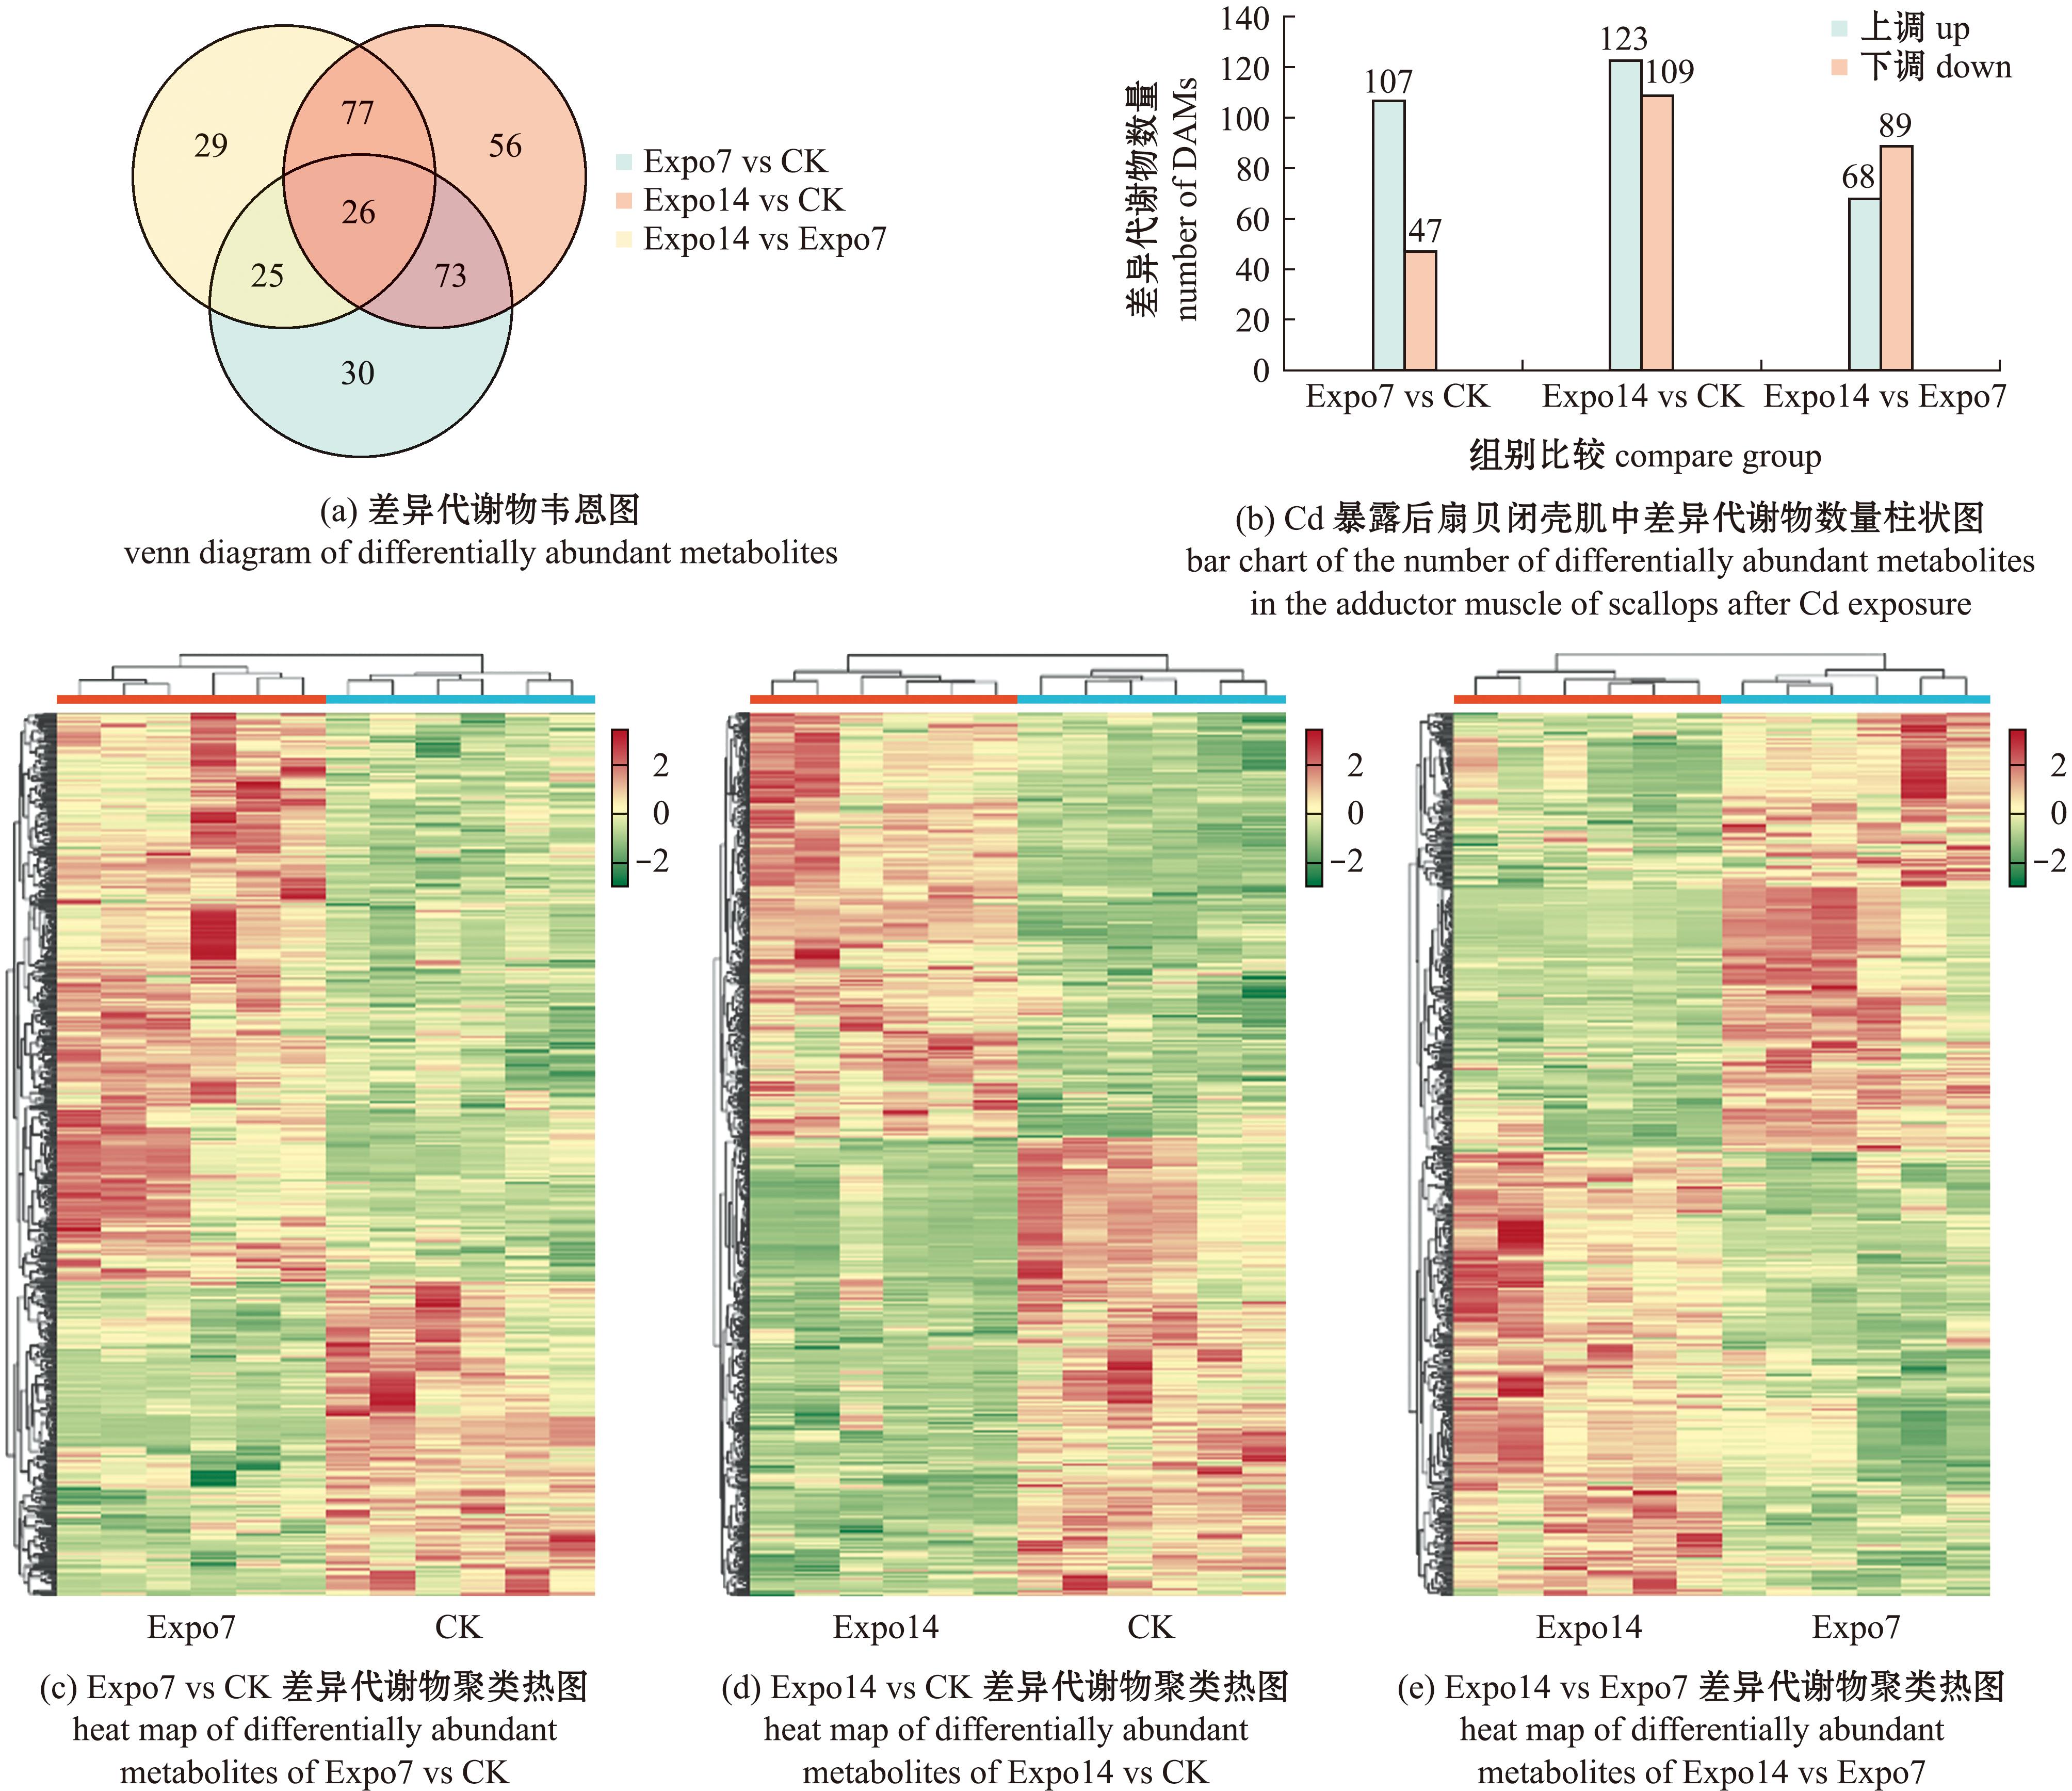
图1 扇贝闭壳肌响应Cd暴露的差异代谢物分析
Fig.1 Analysis of differentially abundant metabolitess in the adductor muscle of scallops in response to Cd exposure
2.2 多元统计分析
对扇贝闭壳肌代谢物进行PCA分析,结果如图2所示,各组的代谢轮廓能够明显区分,且组内重复性大于组间重复性,表明各代谢组存在显著性差异。
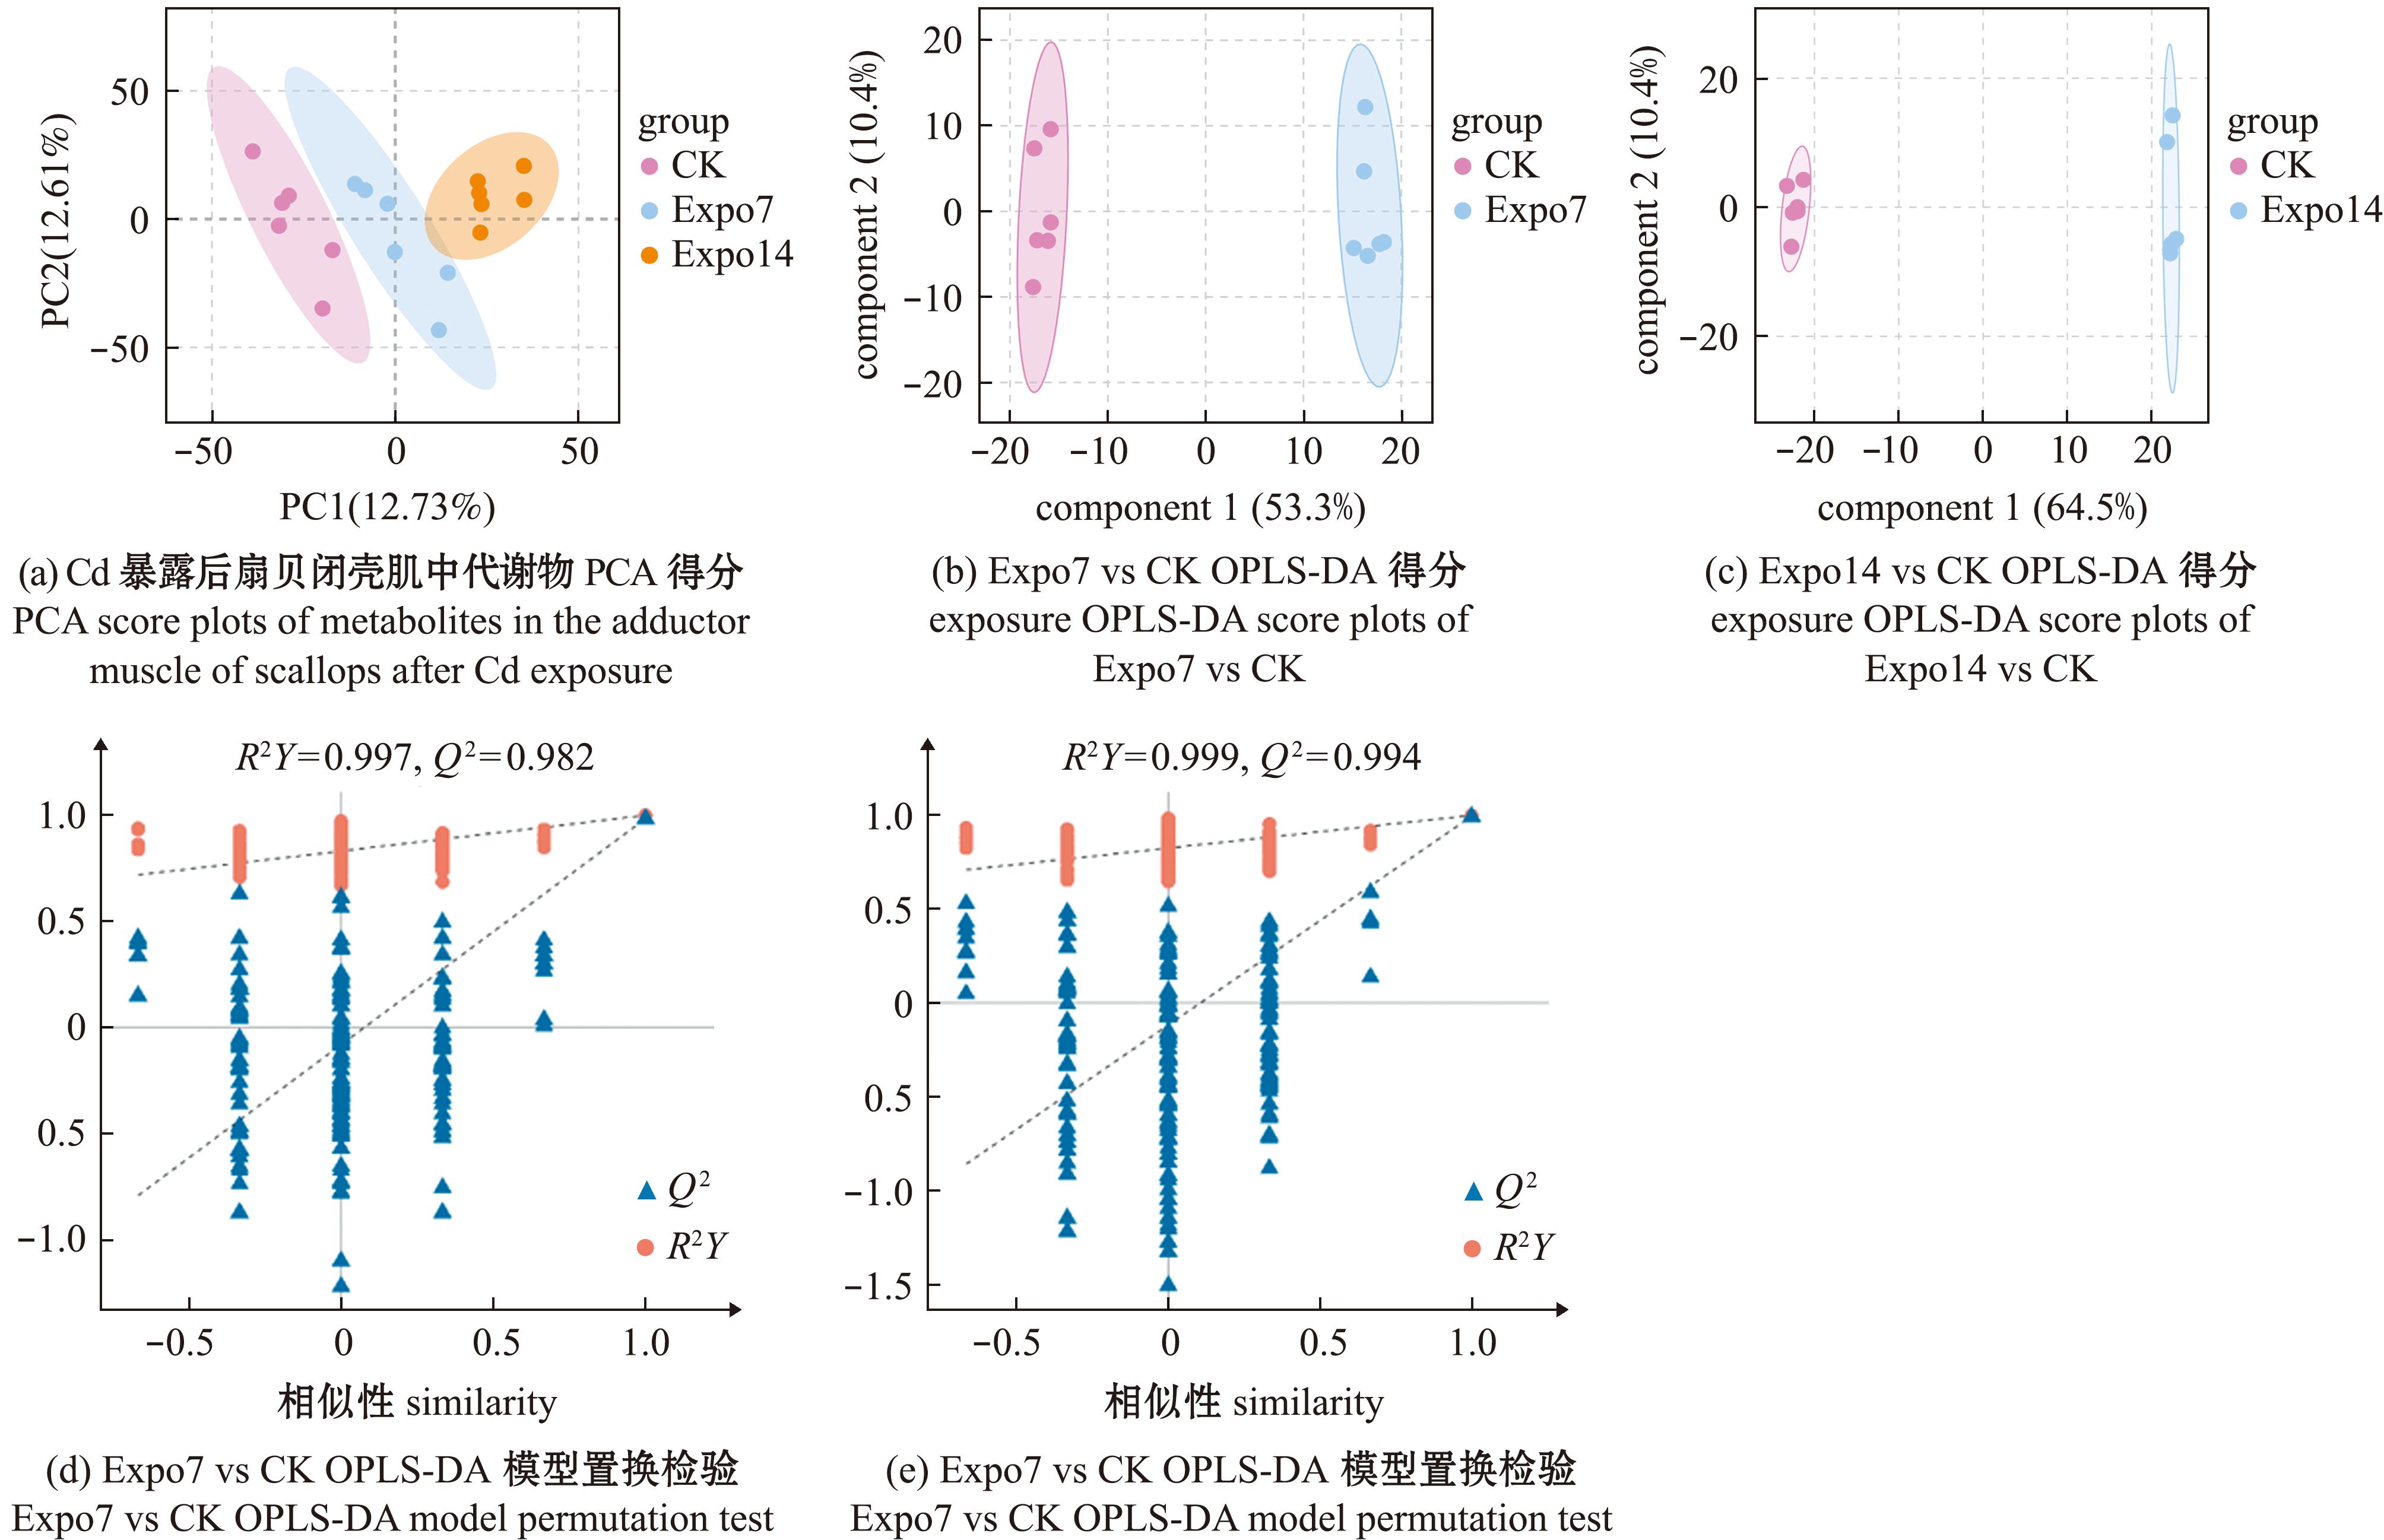
图2 Cd暴露后扇贝闭壳肌中代谢物PCA得分
Fig.2 PCA score plots of metabolites in the adductor muscle of scallops after Cd exposure
为增加代谢组数据的解释力和可信度,基于PCA进一步进行OPLS-DA分析,结果显示,空白组与两个暴露组间均能明显分离,说明空白组样本和暴露组样本有明显的组间差异。对OPLS-DA模型进行200次置换检验分析,得到Expo7组的R2和Q2为0.997和0.982,Expo14组的R2和Q2为0.999和0.994,证明OPLS-DA模型稳定性较好,不存在过度拟合现象。
2.3 代谢通路分析
为了探明不同暴露时间下差异代谢物的代谢途径,将Expo7组和Expo14组筛选出来的差异代谢物进行KEGG富集分析,选择P<0.05代谢通路绘制气泡图(图3),图中气泡大小表示代谢物个数,颜色深浅表示P值大小,富集因子是差异代谢物与该通路中总代谢物数量之比。Expo7组差异代谢物富集的Top 20通路中,组氨酸代谢、半胱氨酸和蛋氨酸的代谢、赖氨酸降解,ABC转运是极显著且差异代谢物数量较多的通路,表明在暴露7 d后氨基酸的代谢发生了显著变化。Expo14组富集的Top 20通路中,甘油磷脂代谢,赖氨酸降解,D-氨基酸代谢,氨酰基-tRNA生物合成,丙氨酸、天冬氨酸和谷氨酸的代谢,以及不饱和脂肪酸的生物合成这6条代谢通路富集差异极显著(P<0.01),表明暴露14 d后不仅氨基酸的代谢受到影响,脂类代谢同样发生了变化。
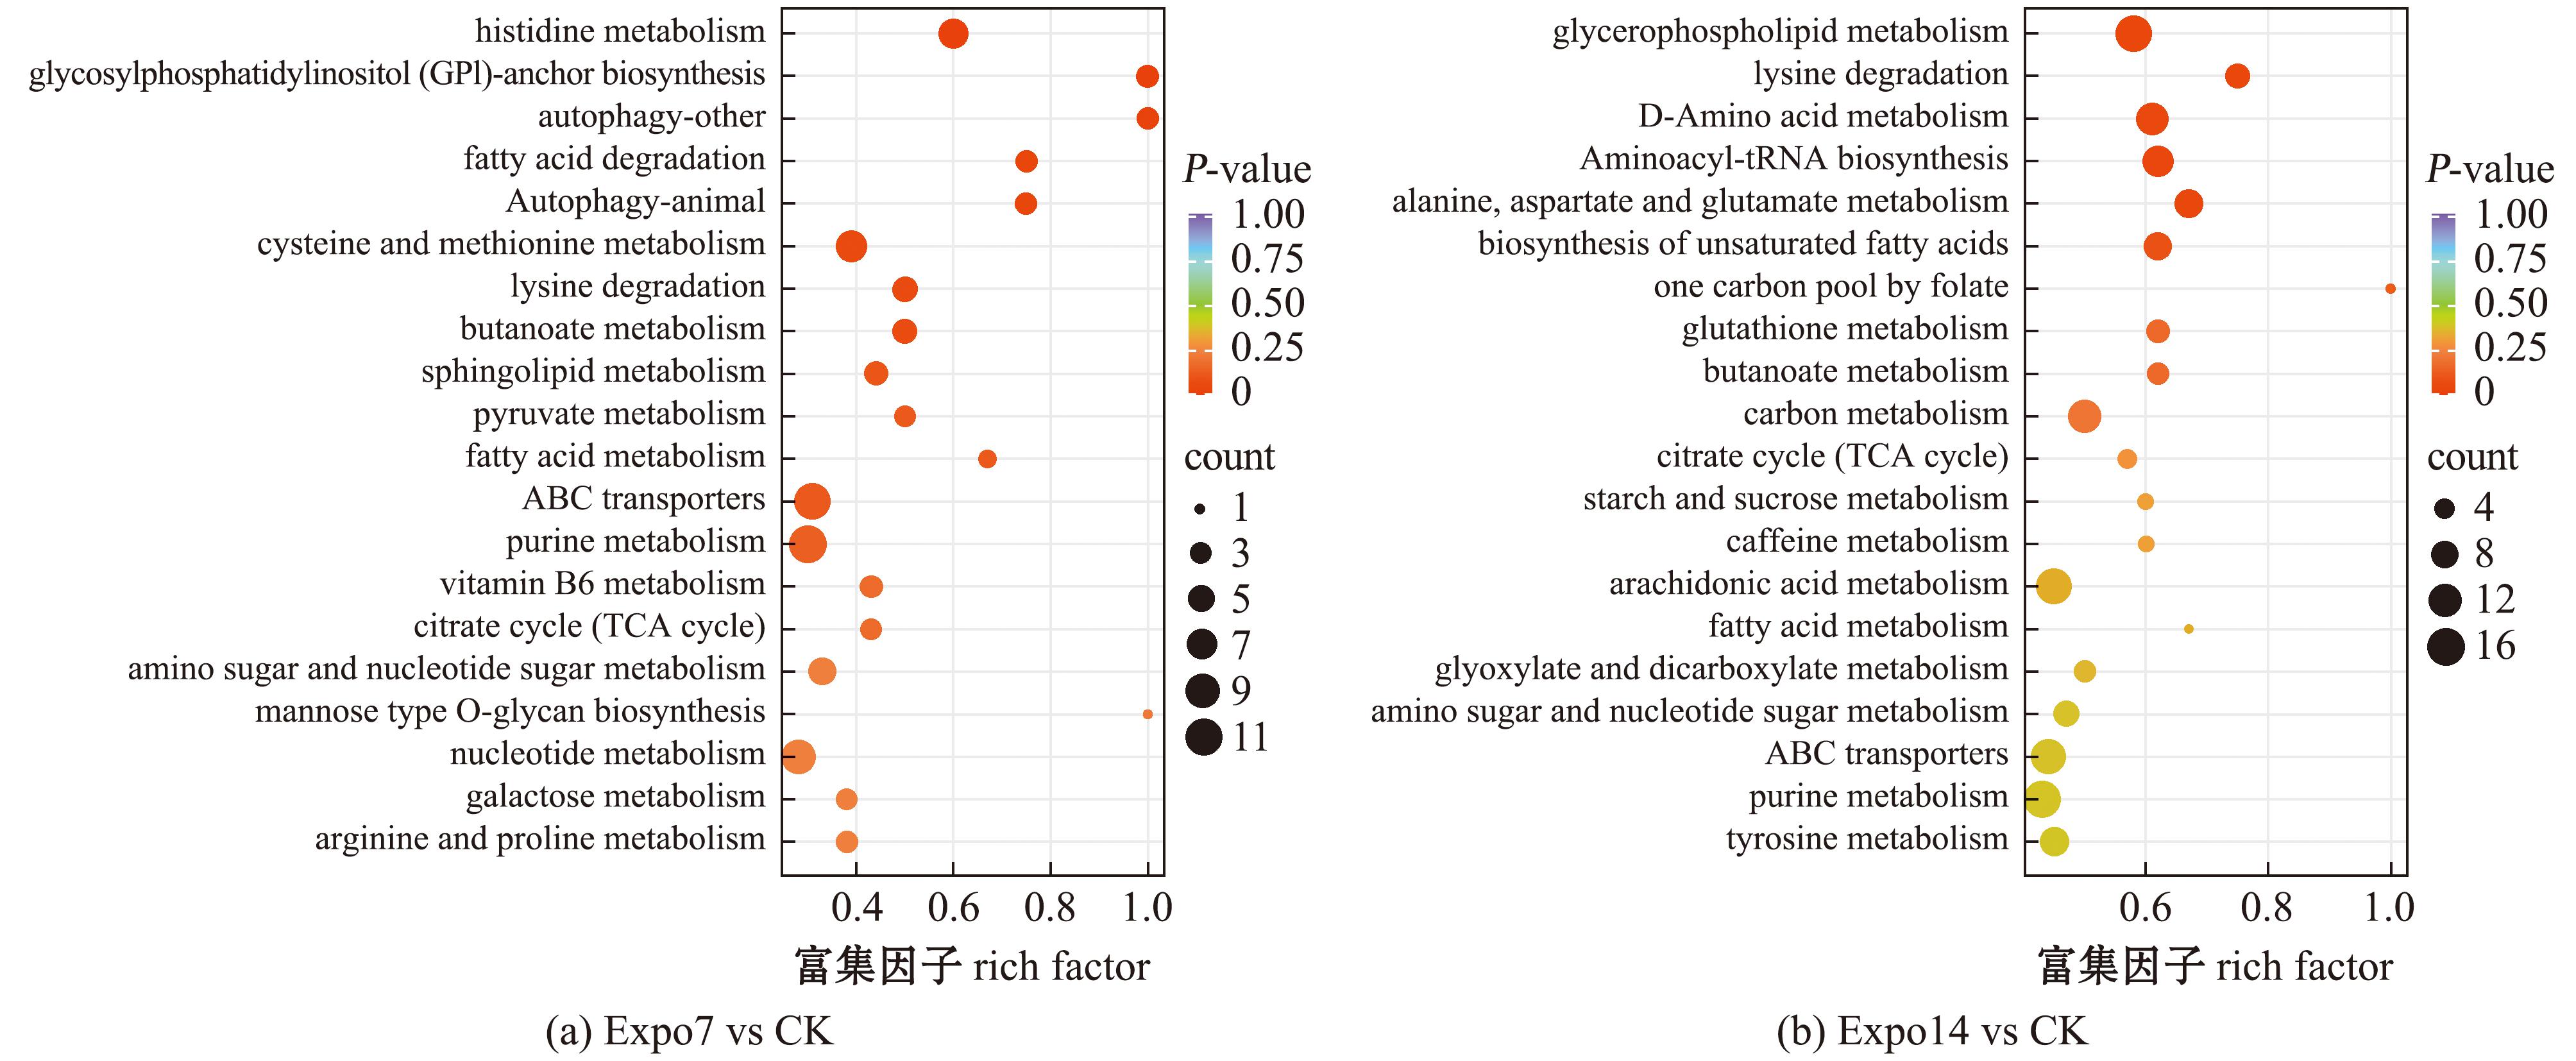
图3 Expo7 vs CK和Expo14 vs CK差异代谢物通路富集分析气泡图
Fig.3 Bubble plots of enrichment analysis of differentially abundant metabolites pathways in Expo7 vs CK and Expo14 vs CK
综上可见,高浓度Cd暴露7 d后,扇贝闭壳肌中氨基酸代谢相关通路发生最为显著的改变;至暴露14 d后,氨基酸代谢与脂质代谢相关通路均出现显著性调整;此外两个阶段均出现TCA循环等碳水化合物代谢改变。上述代谢通路的变化可能会影响蛋白质合成与降解、细胞能量供应等重要生命活动过程。代谢组学作为揭示生物体终端表型的重要手段,其检测到的代谢物变化反映了基因表达调控的下游效应。本课题组前期研究中,Zhang等[15]对Cd暴露后栉孔扇贝的差异表达基因进行了KEGG富集分析,结果显示,共有406、380、315个差异基因分别显著富集于碳水化合物代谢、脂质代谢和氨基酸代谢的关键代谢通路。本研究中代谢物的通路富集分析结果与上述转录组学结果形成了多组学层面的相互印证,表明在Cd胁迫下,这些代谢通路在基因表达与代谢响应两个层次上均发生显著改变。因此,本研究中进一步从代谢物层面验证了前期转录组的发现,强化了相关代谢通路在栉孔扇贝Cd胁迫响应中的重要作用。
2.4 高浓度Cd胁迫下关键代谢途径分析
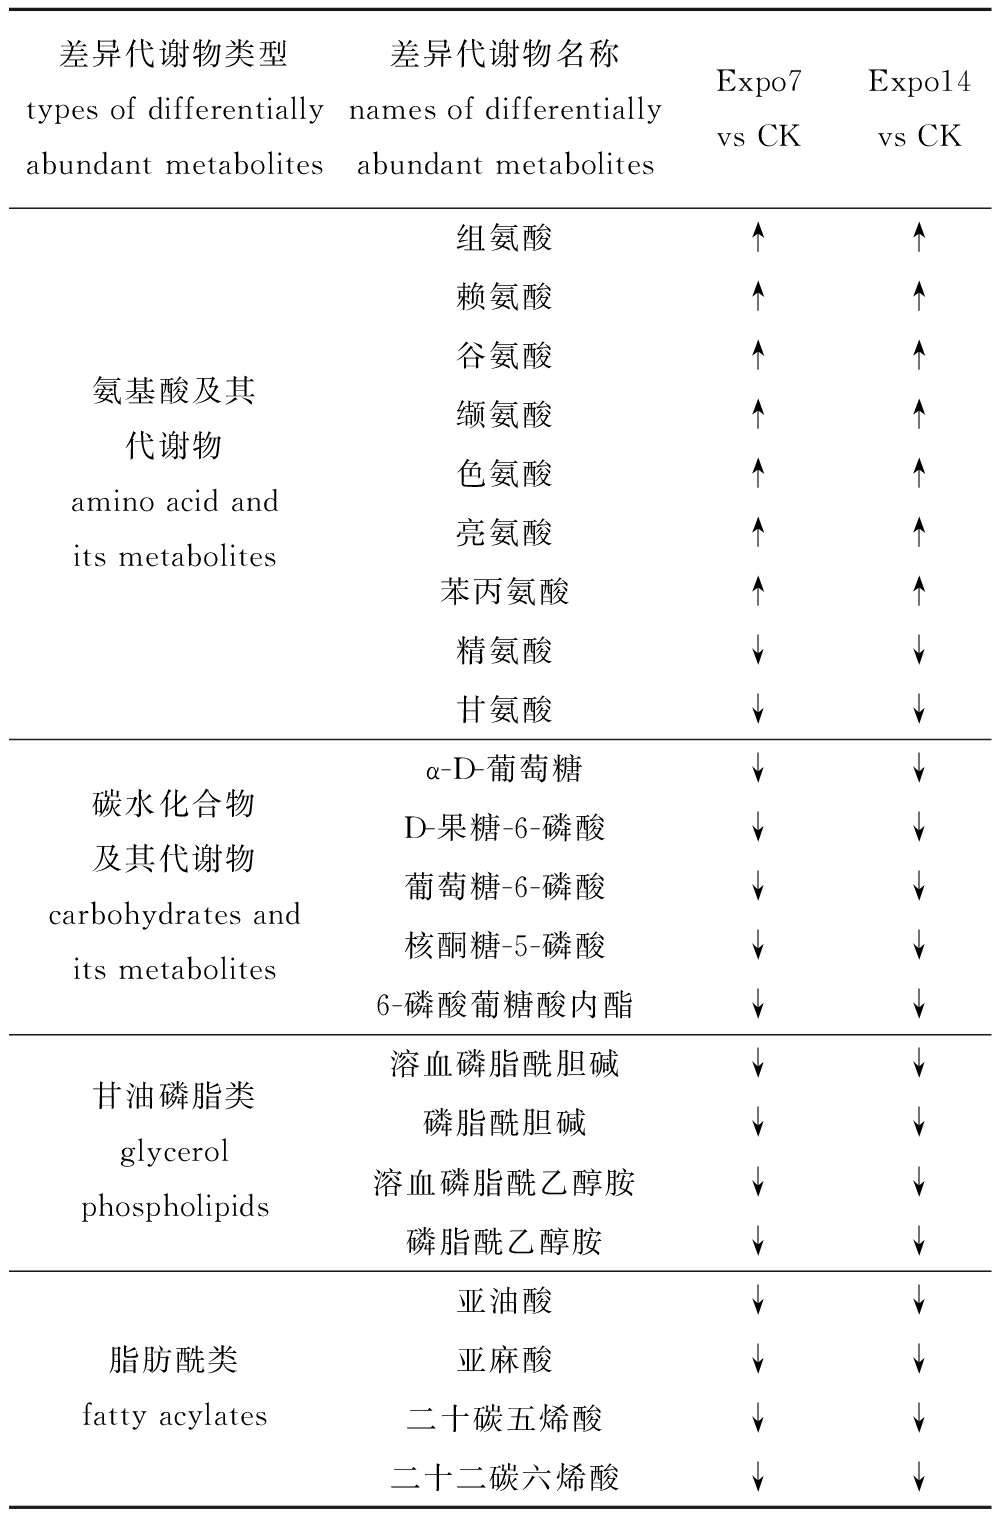
从KEGG分析中可以得知,Cd暴露下导致栉孔扇贝的多个代谢过程发生变化,筛选出的显著变化(VIP>1.2,P<0.05,且|log2FC|>0.5)的差异代谢物见表1,主要涉及氨基酸代谢、碳水化合物代谢和脂质代谢三大重要生理过程。
在本研究不同Cd暴露时间处理组所呈现的代谢特征变化中,最显著的变化发生于氨基酸代谢水平。扇贝闭壳肌处于快速发育阶段时,正是蛋白质生物合成活跃、氨基酸代谢与转运过程最为旺盛的关键时期,在此阶段,Cd高积累胁迫会对闭壳肌组织的正常合成代谢功能造成显著影响。Expo7组中有37种氨基酸或其衍生物受到影响,其中27种上调,10种下调;在Expo14组中有51种氨基酸及其衍生物发生变化,其中38种上调,13种下调。从表1可见,筛选出的具有显著变化(P<0.05)的氨基酸中,组氨酸、赖氨酸、谷氨酸、缬氨酸、色氨酸、亮氨酸、苯丙氨酸显著上调,精氨酸、甘氨酸显著下调。
除氨基酸代谢外,Cd胁迫亦引发了扇贝闭壳肌中碳水化合物代谢谱的显著调整。Expo7组有13种碳水化合物及其代谢物发生变化,其中7种上调,6种下调;Expo14组有18种碳水化合物及其代谢物发生改变,其中7种上调,11种下调。经筛选分析,糖代谢的中间代谢产物α-D-葡萄糖、D-果糖-6-磷酸、葡萄糖-6-磷酸、核酮糖-5-磷酸、6-磷酸葡糖酸内酯的浓度水平显著降低(表1),表明栉孔扇贝的正常碳水化合物代谢过程受到破坏。
表1 显著差异代谢物分析结果(P<0.05)
Tab.1 Results of significant differentially abundant metabolites analysis (P<0.05)
差异代谢物类型types of differentially abundant metabolites差异代谢物名称names of differentially abundant metabolitesExpo7 vs CKExpo14 vs CK组氨酸↑↑赖氨酸↑↑谷氨酸↑↑缬氨酸↑↑氨基酸及其代谢物amino acid and its metabolites色氨酸↑↑亮氨酸↑↑苯丙氨酸↑↑精氨酸↓↓甘氨酸↓↓α-D-葡萄糖↓↓D-果糖-6-磷酸↓↓碳水化合物及其代谢物carbohydrates and its metabolites葡萄糖-6-磷酸↓↓核酮糖-5-磷酸↓↓6-磷酸葡糖酸内酯↓↓溶血磷脂酰胆碱 ↓↓甘油磷脂类glycerol phospholipids磷脂酰胆碱 ↓↓溶血磷脂酰乙醇胺 ↓↓磷脂酰乙醇胺↓↓亚油酸↓↓脂肪酰类fatty acylates亚麻酸↓↓二十碳五烯酸↓↓二十二碳六烯酸↓↓
同时,脂质代谢层面亦观察到明显的代谢改变,主要体现在多种脂类分子含量的调整。Expo7组有39种脂类物质发生变化,其中31种上调,8种下调;Expo14组有64种脂类物质发生改变,其中23种上调,41种下调。本研究结果显示,与空白组相比,两个不同暴露时间的扇贝闭壳肌中的甘油磷脂和脂肪酰类发生了下调。从表1可见,显著下调的甘油磷脂类物质为溶血磷脂酰胆碱、磷脂酰胆碱、溶血磷脂酰乙醇胺、磷脂酰乙醇胺;显著下调的脂肪酰类物质为亚油酸,亚麻酸,二十碳五烯酸(eicosapentaenoic acid,EPA),二十二碳六烯酸(docosahexaenoic acid,DHA)。
2.5 潜在诊断标志物ROC曲线分析
采用MetaboAnalyst进行受试者工作特征(receiver operating characteristic,ROC)曲线分析,揭示9种ROC曲线下面积(area under the curve,AUC)超过0.9的代谢物(图4(a))可以作为潜在的诊断标志物,分别为十二烷酰肉碱(Carnitine C12:0)、3-羟基十四烷酰肉碱(3-Hydroxytetradecanoylcarnitine)、棕榈酰乙醇胺(Palmitoleoyl Ethanolamide)、缬氨酸(Valine)、亮氨酸(Leucine)、苹果酸(D-Malic acid)、琥珀酸(Succinic acid)、乙酰左旋肉碱(Acetyl-carnitine,ALC)、鞘氨醇(Sphingosine)。分别对筛选出来的差异代谢物绘制箱线图,能够看出其相对浓度随时间的变化关系,研究发现,所有潜在标志物在暴露于Cd时发生显著失调。其中乙酰左旋肉碱与Cd暴露呈现负相关,其余物质均表现为正相关(图4(b))。
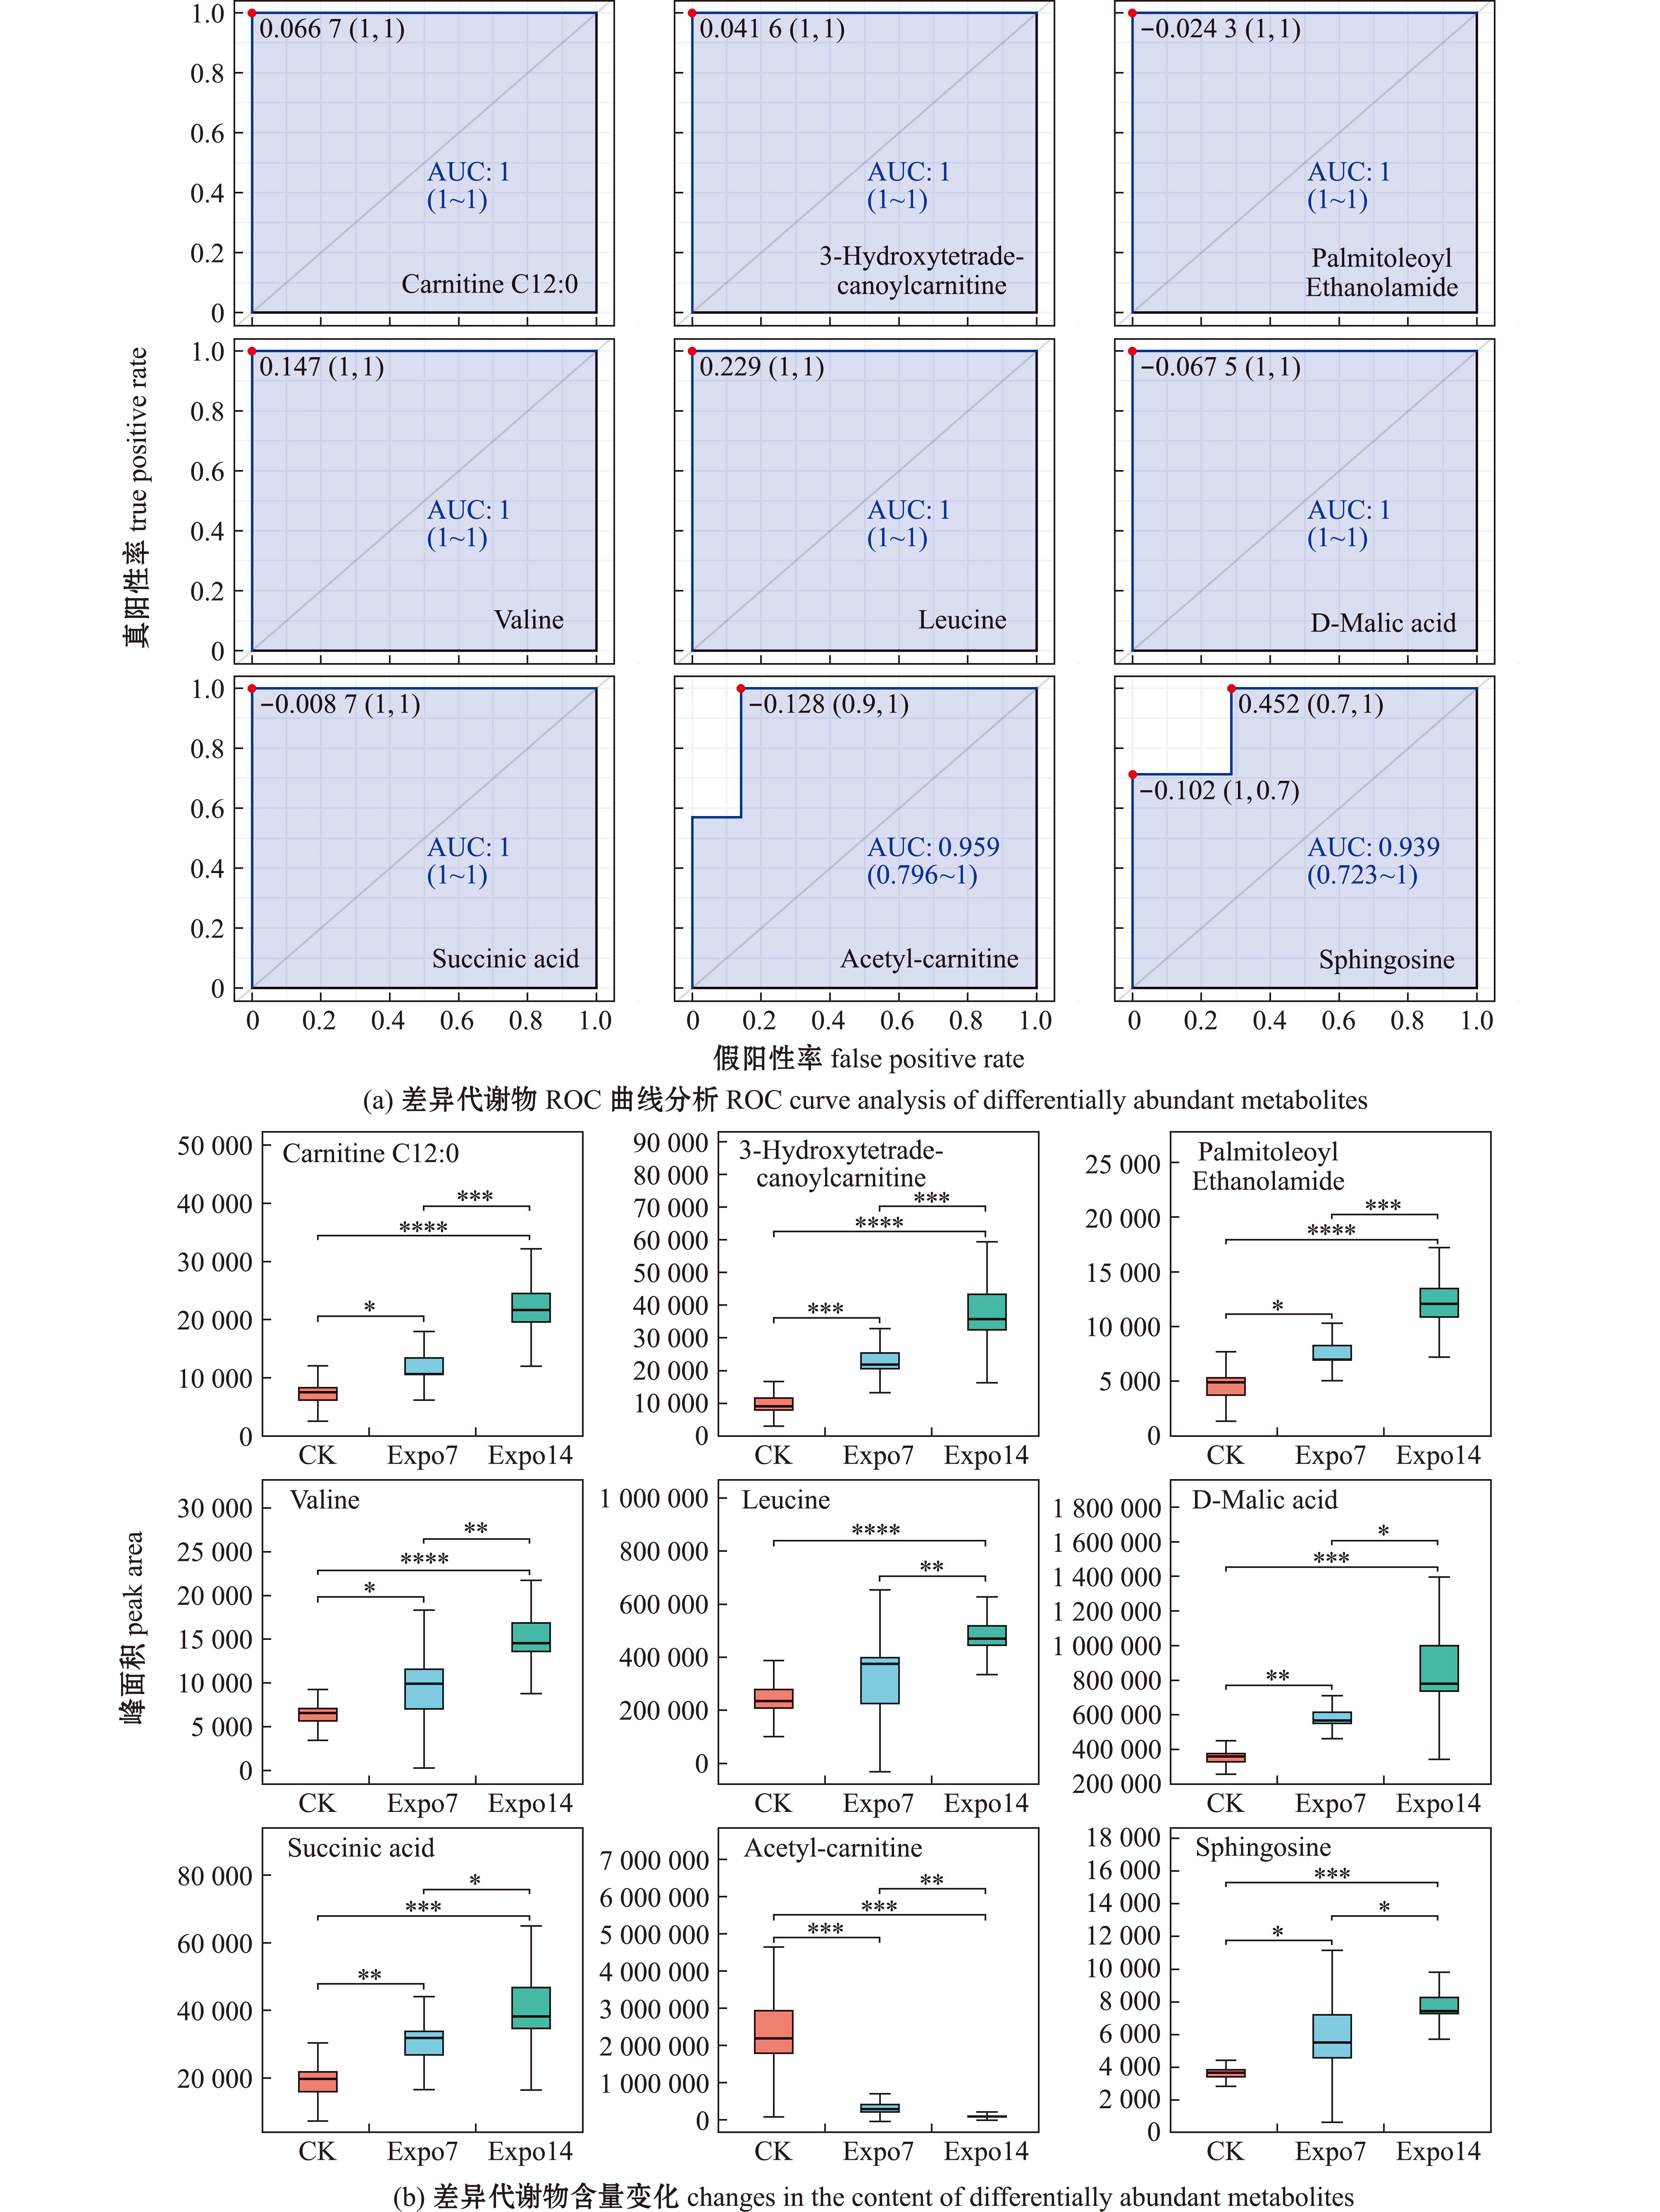
*表示有显著性差异(P<0.05);**,***,****表示有极显著性差异(P<0.01)。
*means significant difference(P<0.05);**,***,****means very significant difference(P<0.01).
图4 差异代谢物ROC曲线分析和差异代谢物含量变化
Fig.4 ROC curve analysis of differentially abundant metabolites and changes in the content of differentially abundant metabolites
3 讨论
3.1 高Cd积累下的氨基酸代谢改变
氨基酸代谢对于维持机体代谢稳态至关重要,该途径的紊乱会导致有毒代谢物的积累,并阻碍蛋白质的合成[16]。本研究中,组氨酸、赖氨酸、谷氨酸、缬氨酸、色氨酸、亮氨酸、苯丙氨酸显著上调,精氨酸、甘氨酸显著下调。Aru等[17]将菲律宾蛤仔(Ruditapes philippinarum)暴露于10~100 μg/L的Pb2+溶液和20~150 μg/L的Zn2+溶液中48 h后,发现有多种氨基酸及其衍生物如支链氨基酸、苯丙氨酸等发生改变,其中,铅暴露组的氨基酸类代谢物变化与暴露浓度呈显著关联,表明重金属暴露会影响氨基酸类代谢物,与本研究结果相符。双壳贝类中,氨基酸在渗透调节和能量代谢等其他生理过程中起着至关重要的作用[18]。有研究表明,海洋软体动物可以利用细胞内游离的赖氨酸、亮氨酸及苯丙氨酸作为渗透剂来平衡它们的渗透压与周围环境[19],同时,苯丙氨酸作为一种同时具有生糖和生酮作用的氨基酸,通常作为无脊椎动物在能量供应不足情况下的主要能源物质[20]。组氨酸则具有能与金属高亲和力结合的有益特性[21],因此推测组氨酸可能是栉孔扇贝缓解Cd毒性的有效解毒剂。此外,氨基酸也具有一定的能量补偿作用,故为了减轻因糖酵解和磷酸戊糖途径等受到抑制而导致的能量供应减少,扇贝体内的部分氨基酸水平上升,通过作为乙酰辅酶A和葡萄糖合成的前体,氨基酸也可以被降解并用作体内的能量来源,这与前期研究中发现当能量供应不足时,一些氨基酸被用作维持代谢活性底物的结果一致[22]。
因此,在高浓度Cd蓄积条件下,快速发育期的稚贝闭壳肌进行了氨基酸代谢调整,一方面可与Cd2+络合以降低其毒性,另一方面可参与维持细胞渗透压平衡与能量代谢稳态,从而增强机体对高Cd胁迫的抵抗能力。
3.2 高Cd积累下的碳水化合物代谢改变
碳水化合物是无脊椎动物最主要的能量来源[23],碳水化合物分解代谢尤其是细胞内葡萄糖代谢(如三羧酸循环路径等)可以大量合成ATP(adenosine triphosphate),为机体细胞生物合成、离子转运及组织运动等各种关键生理活动供能。本研究中,α-D-葡萄糖、D-果糖-6-磷酸、葡萄糖-6-磷酸、核酮糖-5-磷酸、6-磷酸葡糖酸内酯等糖代谢相关代谢物的浓度水平显著降低。在重金属胁迫下,这一能量代谢过程可能被显著扰乱[24]。Cd胁迫下,碳水化合物代谢中的关键酶会受到抑制[25],可能导致机体能量短缺,从而迫使机体调用脂质和蛋白质等替代性能量储备,以满足代谢需求并支持解毒机制的运行。Lei等[26]的研究也发现,重金属汞会诱导斑马鱼幼虫线粒体损伤,中断TCA循环和糖代谢,导致整体能量代谢受损。糖酵解作为细胞内分解葡萄糖生成能量的主要代谢途径,产生ATP和NADH(nicotinamide adenine dinucleotide,reduced),同时为进一步的能量代谢(如三羧酸循环和氧化磷酸化)提供底物。本研究中,α-D-葡萄糖、D-果糖-6-磷酸、葡萄糖-6-磷酸均下调,表明Cd暴露抑制了扇贝闭壳肌中的糖酵解作用。Zhou等[27]的研究同样发现,在Cd与铜单独暴露及联合暴露条件下,葡萄糖-6-磷酸和果糖-6-磷酸含量显著降低,进一步证实糖酵解途径在Cd胁迫下受到抑制。还有研究报道,将海参暴露于0.022~0.440 mg/mL的Cd溶液时,胁迫初期会促进糖酵解,但随着胁迫时间的延长,糖酵解受到抑制,且暴露浓度越高,抑制作用发生得越早[28]。此外,与磷酸戊糖途径有关的代谢产物(葡萄糖-6-磷酸、核酮糖-5-磷酸、6-磷酸葡糖酸内酯)也显著下调,表明在Cd胁迫下,磷酸戊糖途径也受到抑制。磷酸戊糖途径是一种葡萄糖氧化途径,产生核糖-5-磷酸和烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate,NADPH)。Abdel-Tawwab等[29]将罗非鱼暴露于浓度为0.5 mg/L的Cd溶液时,发现其磷酸戊糖途径被抑制,与本研究结果相符。
因此,在高浓度Cd蓄积条件下,快速发育期的稚贝闭壳肌中以糖酵解途径、磷酸戊糖途径为代表的碳水化合物代谢受到抑制,进而导致其能量调节失衡,机体可能通过调用蛋白质等代替性能源储备,以维持机体解毒和正常生理功能。
3.3 高Cd积累下的脂质代谢改变
本研究中发现,溶血磷脂酰胆碱、磷脂酰胆碱、溶血磷脂酰乙醇胺、磷脂酰乙醇胺显著下调。甘油磷脂不仅是质膜的重要组成部分,还具有能量供应及储存的功能。有研究指出,重金属蓄积可诱导产生大量活性氧自由基,进而引发脂质过氧化反应,最终导致细胞膜完整性受损[30],如Cd等重金属元素会改变蠓幼虫的细胞膜脂质组成,从而导致其流动性降低[31]。因此,甘油磷脂作为细胞膜的关键组分,其表达下调证实了脂质过氧化对膜结构的损害。还有研究表明,当蛤蜊分别暴露于10、100 μg/L的Cd溶液时,其甘油磷脂化合物均发生下调[32],与本研究结果相符。同时,本研究中亚油酸、亚麻酸、EPA、DHA等多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs)也显著下调,说明Cd胁迫下扇贝闭壳肌细胞发生脂肪酸代谢紊乱。脂肪酸作为脂肪酰类的基本组成成分,其不仅是重要的营养素,还在细胞功能、脂质代谢和炎症反应中发挥重要作用。PUFAs作为细胞膜的重要组成部分,在维持细胞膜的流动性和完整性方面起到重要作用,其含量降低进一步证明了Cd蓄积导致的细胞膜结构受损。还有研究表明,PUFAs尤其是EPA、DHA能够抑制炎症反应的发生[33],本研究中PUFAs含量降低的另一原因可能是其参与了抵御Cd胁迫的炎症反应被消耗减少。
因此,在高浓度Cd蓄积条件下,快速发育期的稚贝闭壳肌细胞处于过氧化环境中,造成细胞膜结构受损和脂肪酸代谢调整,从而表现出了脂质代谢的改变,进而影响信号转导和物质运输,抑制扇贝的正常生理活动和细胞稳态。
3.4 高Cd积累下的潜在诊断标志物筛选
本研究中揭示了以下9种ROC曲线下面积超过0.9的代谢物:十二烷酰肉碱、3-羟基十四烷酰肉碱、棕榈酰乙醇胺、缬氨酸、亮氨酸、苹果酸、琥珀酸、乙酰左旋肉碱、鞘氨醇。酰基肉碱是脂肪酸代谢产物,在细胞能量代谢途径中起重要作用。十二烷肉碱、3-羟基十四烷酰肉碱作为酰基肉碱的一类,在脂肪酸代谢和能量代谢中发挥着重要作用。本研究中发现,十二烷肉碱、3-羟基十四烷酰肉碱水平升高,表明在Cd胁迫下,扇贝肌肉细胞的脂肪酸β-氧化过程可能受到抑制,导致相关酰基肉碱中间体积累。该结果也与KEGG分析(“2.3.1节”)中脂肪酸代谢和能量代谢紊乱的结果相符。乙酰左旋肉碱是线粒体中的一种内源性化合物,其乙酰基部分的运输对β氧化过程至关重要,因此对于能量代谢和ATP生成也至关重要。ALC还具备清除自由基的能力,能够通过充当抗氧化剂有效保护细胞免受氧化损伤。本研究结果显示,ALC在Cd胁迫下呈现显著下调趋势,表明扇贝的氧化应激反应增强,为缓解氧化损伤,ALC被大量消耗。Cd具有显著的神经毒性,而ALC凭借其抗氧化和抗凋亡特性,对神经毒性损伤发挥保护作用[34]。亦有研究表明,ALC能以浓度依赖性方式缓解砷诱导的氧化应激,增强抗氧化防御能力,改善线粒体功能,并显著降低死亡相关蛋白和炎症标志物的表达[35]。综上,本研究结果表明,ALC在扇贝应对Cd胁迫过程中起到了关键作用。
鞘氨醇是鞘脂的一种代谢产物,不仅是细胞膜的重要组成部分,更是关键的信号分子。鞘脂是一类能够调节多种类型细胞命运的生物活性分子,与多种生理和病理过程密切相关,包括免疫反应和炎症。棕榈酰乙醇胺则是一种内源性脂肪酰胺分子,在调节炎症和免疫反应中发挥重要作用。本研究中,在Cd胁迫条件下,扇贝体内棕榈酰乙醇胺含量显著升高,与CdCl2处理后大鼠体内棕榈酰乙醇胺含量显著增加的报道相符[36]。该变化可能源于Cd胁迫引发的细胞膜损伤激活了相关代谢途径,导致棕榈酰乙醇胺被大量合成,进而通过其抗炎作用来缓解Cd毒性。另外,鞘氨醇作为鞘脂代谢的关键中间体,其积累表明应激信号传递增强,扇贝通过调动防御机制来对抗Cd毒性。
亮氨酸、缬氨酸含量在Cd胁迫下显著上调,原因可能是细胞在应激条件下加速蛋白质分解,提高体内氨基酸水平,补偿糖酵解和TCA循环被抑制导致的能量供应减少,以减轻受Cd暴露造成的损害。缬氨酸作为支链氨基酸,它是蛋白质合成和糖异生底物丙氨酸最重要的来源,并且也在能量代谢和信号传导中发挥重要作用。前期研究中同样报道,重金属暴露后,亮氨酸和缬氨酸水平升高,且被认为是免疫应激的生物标志物[37]。因此,缬氨酸和亮氨酸的相对上调与扇贝闭壳肌缓解高Cd积累带来的损伤有重要关联。
苹果酸和琥珀酸作为重要的有机酸,是TCA循环的重要组成部分,在能量代谢中发挥重要的作用,通过为线粒体提供NADH和FADH2(flavin adenine dinucleotide,reduced),支持细胞的ATP合成,满足生物体的能量需求。本研究中,Cd胁迫后苹果酸和琥珀酸含量上调,表明TCA循环受阻,细胞呼吸转向厌氧呼吸,能量供应不足。Jay等[38]的研究中发现,琥珀酸能够保护琥珀酸脱氢酶免受Cd2+的抑制。本研究中Cd胁迫后扇贝体内琥珀酸含量显著升高,与重金属暴露导致贻贝体内琥珀酸水平升高的报道一致[27]。还有研究表明,有机酸可以通过螯合作用减轻重金属对生物体的毒性[39]。综上,Cd胁迫下琥珀酸的积累源于TCA循环中琥珀酸脱氢酶活性受抑制,同时积累的琥珀酸和苹果酸又能够缓解Cd带来的抑制作用,因此琥珀酸和苹果酸的含量变化对于识别扇贝受到Cd污染有一定提示作用。
4 结论
本研究中以闭壳肌快速发育期的栉孔扇贝为研究对象,利用非靶向代谢组学技术结合多元统计分析方法,系统揭示了高浓度Cd暴露不同时间(7、14 d)下扇贝闭壳肌的代谢响应特征与机制,从代谢层面系统阐释了扇贝闭壳肌对Cd胁迫的动态适应机制,为扇贝Cd污染早期预警技术提供了理论依据与数据支撑。主要结论如下。
1)将暴露组与对照组比较分析发现,Cd胁迫后栉孔扇贝闭壳肌细胞代谢轮廓发生显著变化,主要代谢差异物包括氨基酸及其代谢物、碳水化合物及其代谢物、有机酸及脂质等多种类别,表明Cd胁迫引发了扇贝闭壳肌明显的代谢调整改变。
2)KEGG通路富集分析进一步表明,扇贝闭壳肌细胞可能通过调控氨基酸、脂质和碳水化合物代谢等关键通路,抵御Cd蓄积导致的氧化还原稳态破坏、渗透压失衡、生物膜结构受损和能量代谢紊乱等问题。
3)通过ROC曲线分析,筛选出9种具有较高判别能力的潜在诊断标志物,包括十二烷肉碱、3-羟基十四烷酰肉碱、棕榈酰乙醇胺、缬氨酸、苹果酸、琥珀酸、亮氨酸、乙酰左旋肉碱和鞘氨醇,有望成为诊断Cd胁迫下扇贝生理状态变化的潜在诊断标志物簇。
[1] YIN M Y,MATSUOKA R,YANAGISAWA T,et al.Effect of different drying methods on free amino acid and flavor nucleotides of scallop (Patinopecten yessoensis) adductor muscle[J].Food Chemistry,2022,396:133620.
[2] GRONINGER H S,BRANDT K B.Some observations on the quality of the weathervane scallop (Platinopecten caurinus)[J].Journal of Milk and Food Technology,1970,33(6):232-236.
[3] 宋冬茹.栉孔扇贝全生长周期营养品质变化特征及评价研究[D].上海:上海海洋大学,2023.SONG D R.Study on the characteristics and evaluation of nutritional quality of Chlamys farreri during the whole growth cycle[D].Shanghai:Shanghai Ocean University,2023.(in Chinese)
[4] PAN K,WANG W X.Validation of biokinetic model of metals in the scallop Chlamys nobilis in complex field environments[J].Environmental Science &Technology,2008,42(16):6285-6290.
[5] 林怡辰.重金属在近岸海域海产品中的富集及其影响机制研究[D].烟台:中国科学院大学(中国科学院烟台海岸带研究所),2021.LIN Y C.Bioaccumulation and influential mechanisms of heavy metals in offshore seafood[D].Yantai:University of Chinese Academy of Sciences(Yantai Institute of Coastal Zone Research,Chinese Academy of Sciences),2021.(in Chinese)
[6] KOTNALA S,TIWARI S,NAYAK A,et al.Impact of heavy metal toxicity on the human health and environment[J].Science of the Total Environment,2025,987:179785.
[7] TIAN Y X,LI C J,FU Y,et al.Comparative transcriptome analysis reveals the response mechanism of the typical marine ciliate Euplotes vannus to heavy metal cadmium exposure[J].Marine Environmental Research,2025,208:107153.
[8] CUYPERS A,PLUSQUIN M,REMANS T,et al.Cadmium stress:an oxidative challenge[J].Biometals,2010,23(5):927-940.
[9] TIAN J,LI Y J,FU H R,et al.Physiological role of CYP17A1-like in cadmium detoxification and its transcriptional regulation in the Pacific oyster,Crassostrea gigas[J].Science of the Total Environment,2021,796:149039.
[10] DONG L Y,SUN Y N,CHU M Y,et al.Exploration of response mechanisms in the gills of Pacific oyster (Crassostrea gigas) to cadmium exposure through integrative metabolomic and transcriptomic analyses[J].Animals,2024,14(16):2318.
[11] WAISBERG M,JOSEPH P,HALE B,et al.Molecular and cellular mechanisms of cadmium carcinogenesis[J].Toxicology,2003,192(2/3):95-117.
[12] WANG S H,SHIH Y L,KO W C,et al.Cadmium-induced autophagy and apoptosis are mediated by a calcium signaling pathway[J].Cellular and Molecular Life Sciences,2008,65(22):3640-3652.
[13] ZHANG X Y,LI F,JI C L,et al.Toxicological mechanism of cadmium in the clam Ruditapes philippinarum using combined ionomic,metabolomic and transcriptomic analyses[J].Environmental Pollution,2023,323:121286.
[14] 刘欢.基于多组学的镉和无机砷对栉孔扇贝毒性效应研究[D].上海:上海海洋大学,2022.LIU H.Toxicogical effects of cadmium and inorganic arsenic in Chlamys farreri based on multi-omics approach[D].Shanghai:Shanghai Ocean University,2022.(in Chinese)
[15] ZHANG H,ZHAI Y X,YAO L,et al.Comparative transcriptomics reveals genes involved in metabolic and immune pathways in the digestive gland of scallop Chlamys farreri following cadmium exposure[J].Chinese Journal of Oceanology and Limnology,2017,35(3):603-612.
[16] ZHANG Y S,LIN S Y,PENG J Y,et al.Amelioration of hepatic steatosis by dietary essential amino acid-induced ubiquitination[J].Molecular Cell,2022,82(8):1528-1542.e10.
[17] ARU V,SARAIS G,SAVORANI F,et al.Metabolic responses of clams,Ruditapes decussatus and Ruditapes philippinarum,to short-term exposure to lead and zinc[J].Marine Pollution Bulletin,2016,107(1):292-299.
[18] LIU H,TIAN X H,GONG X H,et al.Analyzing toxicological effects of AsIII and AsV to Chlamys farreri by integrating transcriptomic and metabolomic approaches[J].Marine Pollution Bulletin,2023,186:114385.
[19] ORY P,HAMANI V,BODET P E,et al.The variegated scallop,Mimachlamys varia,undergoes alterations in several of its metabolic pathways under short-term zinc exposure[J].Comparative Biochemistry and Physiology Part D:Genomics and Proteomics,2021,37:100779.
[20] SOKOLOVA I M,FREDERICH M,BAGWE R,et al.Energy homeostasis as an integrative tool for assessing limits of environmental stress tolerance in aquatic invertebrates[J].Marine Environmental Research,2012,79:1-15.
[21] YOUNG T,GALE S L,RAGG N L C,et al.Metabolic regulation of copper toxicity during marine mussel embryogenesis[J].Metabolites,2023,13(7):838.
[22] HE W P,LI P P,YAN H G,et al.Long-term fasting leads to preferential catabolism of His,Arg,and branched-chain amino acids in the dorsal muscle of gibel carp (Carassius auratus gibelio):Potential preferential use of amino acids as energy substrates[J].Aquaculture,2022,552:737967.
[23] RIGOULET M,BOUCHEZ C L,PAUMARD P,et al.Cell energy metabolism:an update[J].Biochimica et Biophysica Acta Bioenergetics,2020,1861(11):148276.
[24] JIN P,ZHANG J L,WAN J F,et al.The combined effects of ocean acidification and heavy metals on marine organisms:a meta-analysis[J].Frontiers in Marine Science,2021,8:801889.
[25] DEVI R,MUNJRAL N,GUPTA A K,et al.Cadmium induced changes in carbohydrate status and enzymes of carbohydrate metabolism,glycolysis and pentose phosphate pathway inpea[J].Environmental and Experimental Botany,2007,61(2):167-174.
[26] LEI Y J,LI X,MAO X F.Microplastics aggravate the adverse effects of methylmercury than inorganic mercury on zebrafish (Danio rerio)[J].Environmental Pollution,2025,367:125559.
[27] ZHOU L,LI M N,ZHONG Z S,et al.Biochemical and metabolic responses of the deep-sea mussel Bathymodiolus platifrons to cadmium and copper exposure[J].Aquatic Toxicology,2021,236:105845.
[28] LI L,TIAN X L,YU X,et al.Effects of acute and chronic heavy metal (Cu,Cd,and Zn) exposure on sea cucumbers (Apostichopus japonicus)[J].BioMed Research International,2016,2016:4532697.
[29] ABDEL-TAWWAB M,WAFEEK M.Fluctuations in water temperature affected waterborne cadmium toxicity:Hematology,anaerobic glucose pathway,and oxidative stress status of Nile Tilapia,Oreochromis niloticus(L.)[J].Aquaculture,2017,477:106-111.
[30] WINSTON G W,DI GIULIO R T.Prooxidant and antioxidant mechanisms in aquatic organisms[J].Aquatic Toxicology,1991,19(2):137-161.
[31] ARAMBOUROU H,LLORENTE L,MORENO-OCIO I,et al.Exposure to heavy metal-contaminated sediments disrupts gene expression,lipid profile,and life history traits in the midge Chironomus riparius[J].Water Research,2020,168:115165.
[32] TROMBINI C,RODR GUEZ-MORO G,RAMREZ ACOSTA S,et al.Single and joint effects of cadmium and selenium on bioaccumulation,oxidative stress and metabolomic responses in the clam Scrobicularia plana[J].Chemosphere,2022,308:136474.
[33] CONIGLIO S,SHUMSKAYA M,VASSILIOU E.Unsaturated fatty acids and their immunomodulatory properties[J].Biology,2023,12(2):279.
[34] SMELAND O B,MEISINGSET T W,BORGES K,et al.Chronic acetyl-L-carnitine alters brain energy metabolism and increases noradrenaline and serotonin content in healthy mice[J].Neurochemistry International,2012,61(1):100-107.
[35] KESHAVARZ-BAHAGHIGHAT H,SEPAND M R,GHAHREMANI M H,et al.Acetyl-L-carnitine attenuates arsenic-induced oxidative stress and hippocampal mitochondrial dysfunction[J].Biological Trace Element Research,2018,184(2):422-435.
[36] KONDO S,SUGIURA T,KODAKA T,et al.Accumulation of various N-acylethanolamines including N-arachidonoylethanolamine (anandamide) in cadmium chloride-administered rat testis[J].Archives of Biochemistry and Biophysics,1998,354(2):303-310.
[37] JI C L,WU H F,ZHOU M,et al.Multiple biomarkers of biological effects induced by cadmium in clam Ruditapes philippinarum[J].Fish &Shellfish Immunology,2015,44(2):430-435.
[38] JAY D,ZAMORANO R,MU OZ E,et al.Study of the interaction of cadmium with membrane-bound succinate dehydrogenase[J].Journal of Bioenergetics and Biomembranes,1991,23(2):381-389.
[39] MA Q J,SUN M H,LU J,et al.Phosphorylation of a malate transporter promotes malate excretion and reduces cadmium uptake in apple[J].Journal of Experimental Botany,2020,71(12):3437-3449.