鲫(Carassius auratus)作为中国淡水养殖体系中的重要经济鱼类,具有生长适应性强、肉质细嫩等特征[1]。然而,随着中国养殖业规模化发展,生产过程中的高密度养殖导致鲫疾病频发,不仅造成严重经济损失,还制约了淡水渔业的绿色可持续发展[2]。在此背景下,免疫增强剂因具有绿色环保、无副作用等显著优势,被认为是增强鱼类免疫力的有效手段,相关研究已成为水产养殖领域的热点方向[3]。
目前,水产养殖中被当作免疫增强剂使用的有多种天然化合物,如益生菌、益生元、合生元和功能性寡糖等[4]。其中,功能性寡糖在促进动物生长、增强免疫、提升抗氧化活性及抗菌能力等方面表现出优异效果,同时还能调节其肠道菌群结构,改善肠道健康[5-7]。果胶寡糖(pectic oligosaccharide,POS)作为一类重要的功能性寡糖,是天然果胶经降解后产生的低分子量寡糖,具有分子质量小、溶解度高、结构明确等特点,不仅更易被生物体吸收利用,还展现出更强的生物活性[8]。近年来,果胶寡糖的生物活性研究已广泛涉及抗氧化、抗糖尿病、抗肥胖及抗肿瘤等多个领域[9-10]。研究证实,果胶寡糖作为新兴益生元,可增加肠道绒毛长度并促进肠道益生菌增殖,改善肠道健康,且能显著降低胆固醇[11-12]。黑莓果胶寡糖DPPH自由基和ABTS自由基具有强效清除作用,呈现显著抗氧化活性且存在明显量效关系[13]。这些研究成果为果胶寡糖在功能食品、饲料添加剂及药物分子研发等领域的应用提供了重要理论支撑,但目前其在水产养殖中的研究仍较为匮乏。在前期研究中,本试验团队已明确所涉果胶寡糖的结构特征,表明其属于低酯化低分子量的聚半乳糖醛酸,并通过预试验(饲喂分别添加0、0.1、1.0、2.0 g/kg果胶寡糖的饲料,养殖56 d后测定鲫生长指标)发现,饲喂2 g/kg果胶寡糖组的鲫生长指标提升显著,故确定该剂量为后续的试验用量。本试验旨在研究果胶寡糖作为饲料添加剂对鲫生长、抗氧化及免疫能力的影响,研究结果可为果胶寡糖在水产养殖中的实际应用提供科学参考。
1 材料与方法
1.1 材料
试验用果胶寡糖(DM=30.72%±1.19%)由中国科学院大连化学物理研究所天然产物及糖工程研究组提供。试验用鲫体长为6~8 cm,体质量为(29.63±8.39)g,购于大连市香炉礁花草虫鱼市场。
1.2 方法
1.2.1 试验设计 养殖试验前,鲫暂养1周以适应环境。将66尾活力强、外观健康的鲫随机分为2组,每组设置3个平行,每个平行放置11尾鱼,对照组饲喂基础饲料,试验组饲喂添加2 g/kg果胶寡糖的饲料(该添加量经前期饲喂试验确定为最适剂量),养殖周期为56 d,试验结束后检测各项相关指标。采用6个白色聚乙烯水槽(30 L)养殖,试验均在大连海洋大学黄海校区进行,期间每天投喂2次(投喂量控制在鱼体质量的3%~5%),吸污换水1次。养殖条件如下:水温18 ℃~19 ℃,pH 6.5~7.0,溶解氧>6.0 mg/L,氨氮<0.2 mg/L,亚硝酸盐浓度<0.1 mg/L。基础饲料及试验饲料的主要营养水平见表1。
表1 基础饲料及试验饲料的主要营养水平
Tab.1 Main nutritional levels of basal feed and experimental feed %
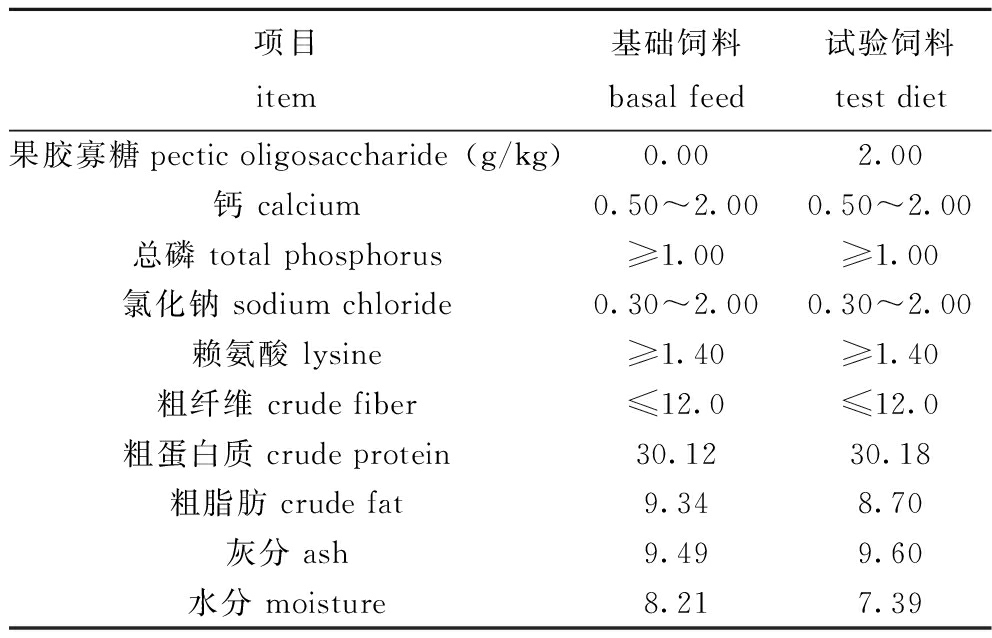
项目item基础饲料basal feed试验饲料test diet果胶寡糖pectic oligosaccharide(g/kg)0.002.00钙 calcium0.50~2.000.50~2.00总磷 total phosphorus≥1.00≥1.00氯化钠 sodium chloride0.30~2.000.30~2.00赖氨酸 lysine≥1.40≥1.40粗纤维 crude fiber≤12.0≤12.0粗蛋白质 crude protein30.1230.18粗脂肪 crude fat9.348.70灰分 ash9.499.60水分 moisture8.217.39
注:水分、灰分、粗蛋白质和粗脂肪为自测数值。
Note:moisture,ash,crude protein and crude fat are self-test indicators.
1.2.2 样品采集 养殖试验开始前记录初始体质量(IBW)。养殖期间,每隔两周随机抽取健康鱼体,采集尾部静脉血:一部分新鲜血液直接用于检测血细胞的吞噬活性和呼吸爆发能力;另一部分血液经4 000 r/min离心5 min制备血清,于-80 ℃冰箱中保存待测。56 d养殖试验结束后,所有试验用鱼停喂24 h,逐尾称量并记录终末体质量(FBW),每组随机选取6尾健康鱼体于冰上解剖,取其肝脏、头肾,一部分组织浸泡于4%多聚甲醛溶液固定48 h后,用于后续组织切片观察;另一部分组织迅速保存于-80 ℃冰箱中,用于免疫相关指标和抗氧化酶活性的测定。
1.2.3 生长指标测定 养殖试验结束后,计算其相对增重率(weight gain rate,WGR)、特定生长率(specific growth rate,SGR)、肝体比(hepatosmatic index,HSI)、肾体比(renal volume ratio,RSI),计算公式为
RWGR=(最终鱼体质量-初始鱼体质量)/
初始鱼体质量×100%,
(1)
RSGR=[ln(试验终鱼体质量)-ln(试验初鱼体
质量)]/饲养天数×100%,
(2)
IHSI=肝脏质量/最终鱼体质量×100%,
(3)
IRSI=肾脏质量/最终鱼体质量×100%。
(4)
1.2.4 血液生化指标测定 血清中总蛋白(TP)含量参照Anderson等[14]的考马斯亮蓝法测定。用紫外可见分光光度计(Agilent Cary 60 UV-Vis,Malaysia)在 595 nm 波长测吸光度,以牛血清白蛋白(0~1 mg/mL)为标准曲线,计算血清中总蛋白含量。总免疫球蛋白(Ig)含量参照Sharma等[15]的方法测定。取血清0.2 mL加0.2 mL 12%聚乙二醇,室温静置2 h后以5 000 r/min离心10 min(4 ℃),测上清液蛋白含量,总免疫球蛋白含量=血清总蛋白含量-上清液蛋白。采用中性红法测定血细胞吞噬活性,以每106个细胞的吸光度值表示吞噬活力,采用氮蓝四唑(NBT)还原法测定呼吸爆发,以每106个细胞的吸光度值表示呼吸爆发活力[16-17]。
1.2.5 酶活性测定 取试验鱼肝脏和头肾组织,按1∶9比例加入生理盐水,充分研磨制备10%组织匀浆液,4 ℃下以5 000 r/min 离心后取上清液待测。酸性磷酸酶(ACP)、碱性磷酸酶(AKP)、总一氧化氮合酶(T-NOS)、溶菌酶(LZM)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)的活性及丙二醛(MDA)含量、总抗氧化能力(T-AOC)均采用南京建成生物工程研究所试剂盒测定,具体操作严格按照试剂盒说明书进行。
1.2.6 肝脏和头肾组织学 取固定于4%多聚甲醛溶液中的肝脏和头肾组织,常规石蜡包埋后切片,经苏木精-伊红(HE)染色,在光学显微镜下观察组织学形态并拍照记录。
1.2.7 攻毒试验 嗜水气单胞菌(Aeromonas hydrophila)菌株由大连海洋大学水生动物医院提供,于-80 ℃冰箱中保存。试验前将菌株取出置于4 ℃融化,用灭菌接种环接种于LB固体培养基,28 ℃恒温培养箱中培养24 h。挑取形态良好的单菌落接种于10 mL LB液体培养基,在 28 ℃、180 r/min 恒温振荡培养箱中培养至对数期。培养结束后,采用梯度稀释法将菌液浓度调整为1×10⁶ CFU/mL 备用。攻毒试验中,试验组每尾背部肌肉注射200 μL上述菌液,每个养殖水槽注射5尾鱼;对照组每尾背部肌肉注射200 μL生理盐水。试验持续14 d,每日记录鱼体发病及死亡情况。
1.3 数据处理
试验数据以平均值±标准差(mean±S.D.)表示,所有测定指标均设3次重复,试验数据通过SPSS 26软件进行分析,并进行独立样本t检验分析,显著性差异设为0.05。
2 结果与分析
2.1 低酯化果胶寡糖对鲫生长性能的影响
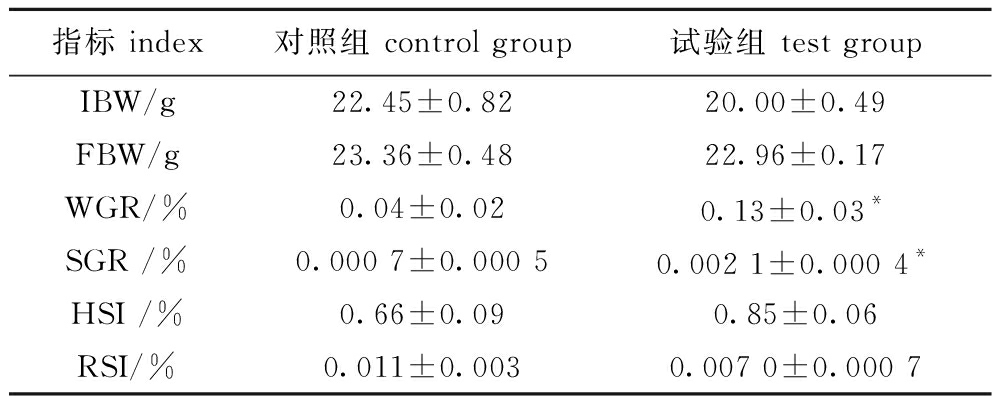
从表2可见,试验组的WGR和SGR相较于对照组有显著性差异(P<0.05),但HSI和RSI无显著性差异。
表2 添加果胶寡糖喂养8周后鲫的生长性能
Tab.2 Growth performance of Carassius auratus after eight weeks of feeding with POS diets
指标 index对照组 control group试验组 test groupIBW/g22.45±0.8220.00±0.49FBW/g23.36±0.4822.96±0.17WGR/%0.04±0.020.13±0.03*SGR /%0.000 7±0.000 50.002 1±0.000 4*HSI /%0.66±0.090.85±0.06RSI/%0.011±0.0030.007 0±0.000 7
注:IBW表示初体质量;FBW表示末体质量;WGR表示相对增重率;SGR表示特定生长率;HSI表示肝体比;RSI表示肾体比;*表示P<0.05,下同。
Note:IBW means initial body weight;FBW means final body weight;WGR means weight gain rate;SGR means specific growth rate;HSI means hepatosmatic index;RSI means renal volume ratio;* means P<0.05,et sequentia.
2.2 低酯化果胶寡糖对鲫血液生化指标的影响
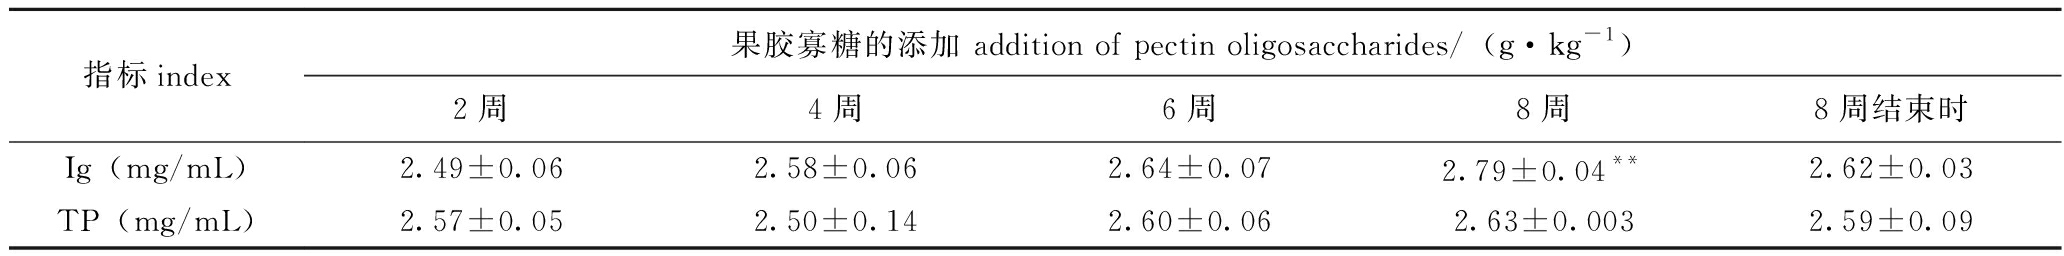
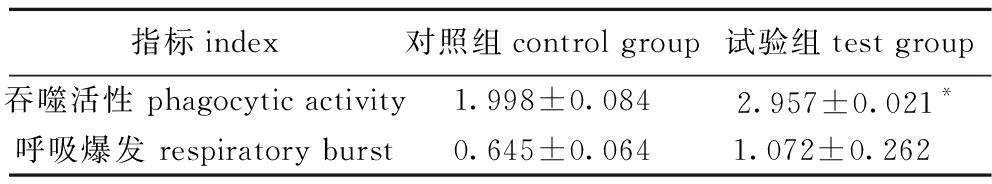
血清的生化参数见表3:在试验过程中鲫血清中的总免疫球蛋白和总蛋白随着养殖时间延长而增加。第8周,试验组中的血清总免疫球蛋白含量与对照组比较极显著升高(P<0.01),但试验组中血清的总蛋白含量与对照组比较并无显著性差异。表4为吞噬活性和呼吸爆发的结果,从表4可见,试验组与对照组相比较吞噬活力和呼吸爆发均显著提高(P<0.05)。
表3 试验过程中鲫血清的生化参数
Tab.3 Biochemical parameters of crucian carp serum during the experiment
指标index果胶寡糖的添加 addition of pectin oligosaccharides/(g·kg-1)2周4周6周8周8周结束时Ig(mg/mL)2.49±0.062.58±0.062.64±0.072.79±0.04**2.62±0.03TP(mg/mL)2.57±0.052.50±0.142.60±0.062.63±0.0032.59±0.09
注:Ig表示血清中免疫球蛋白;TP表示血清中总蛋白;**表示P<0.01,下同。
Note:Ig means serum immunoglobulin ;TP means serum total protein ;** means P<0.01,et sequentia.
表4 血细胞的吞噬活性和呼吸爆发
Tab.4 Phagocytic activity and respiratory burst of hemocytes
指标index对照组control group试验组test group吞噬活性 phagocytic activity1.998±0.0842.957±0.021*呼吸爆发 respiratory burst0.645±0.0641.072±0.262
2.3 低酯化果胶寡糖对鲫免疫酶和抗氧化酶活性的影响
从图1(a)可见,鲫头肾中,试验组中ACP活性与对照组相比显著升高(P<0.05),AKP、T-NOS、LZM活性相较于对照组有所提高但无显著性差异。从图1(b)可见,鲫肝脏中,试验组中ACP、AKP、T-NOS和LZM活性与对照组相比较极显著升高(P<0.01)。从图1(c)可见,鲫头肾中,试验组中SOD、CAT活性与对照组相比极显著升高(P<0.01),T-AOC、GSH-PX活性和MDA含量均有提高但无显著性差异。从图1(d)可见,鲫肝脏中,试验组中SOD、CAT和T-AOC活性与对照组相比极显著升高(P<0.01),GSH-PX活性和MDA含量与对照组相比显著升高(P<0.05)。
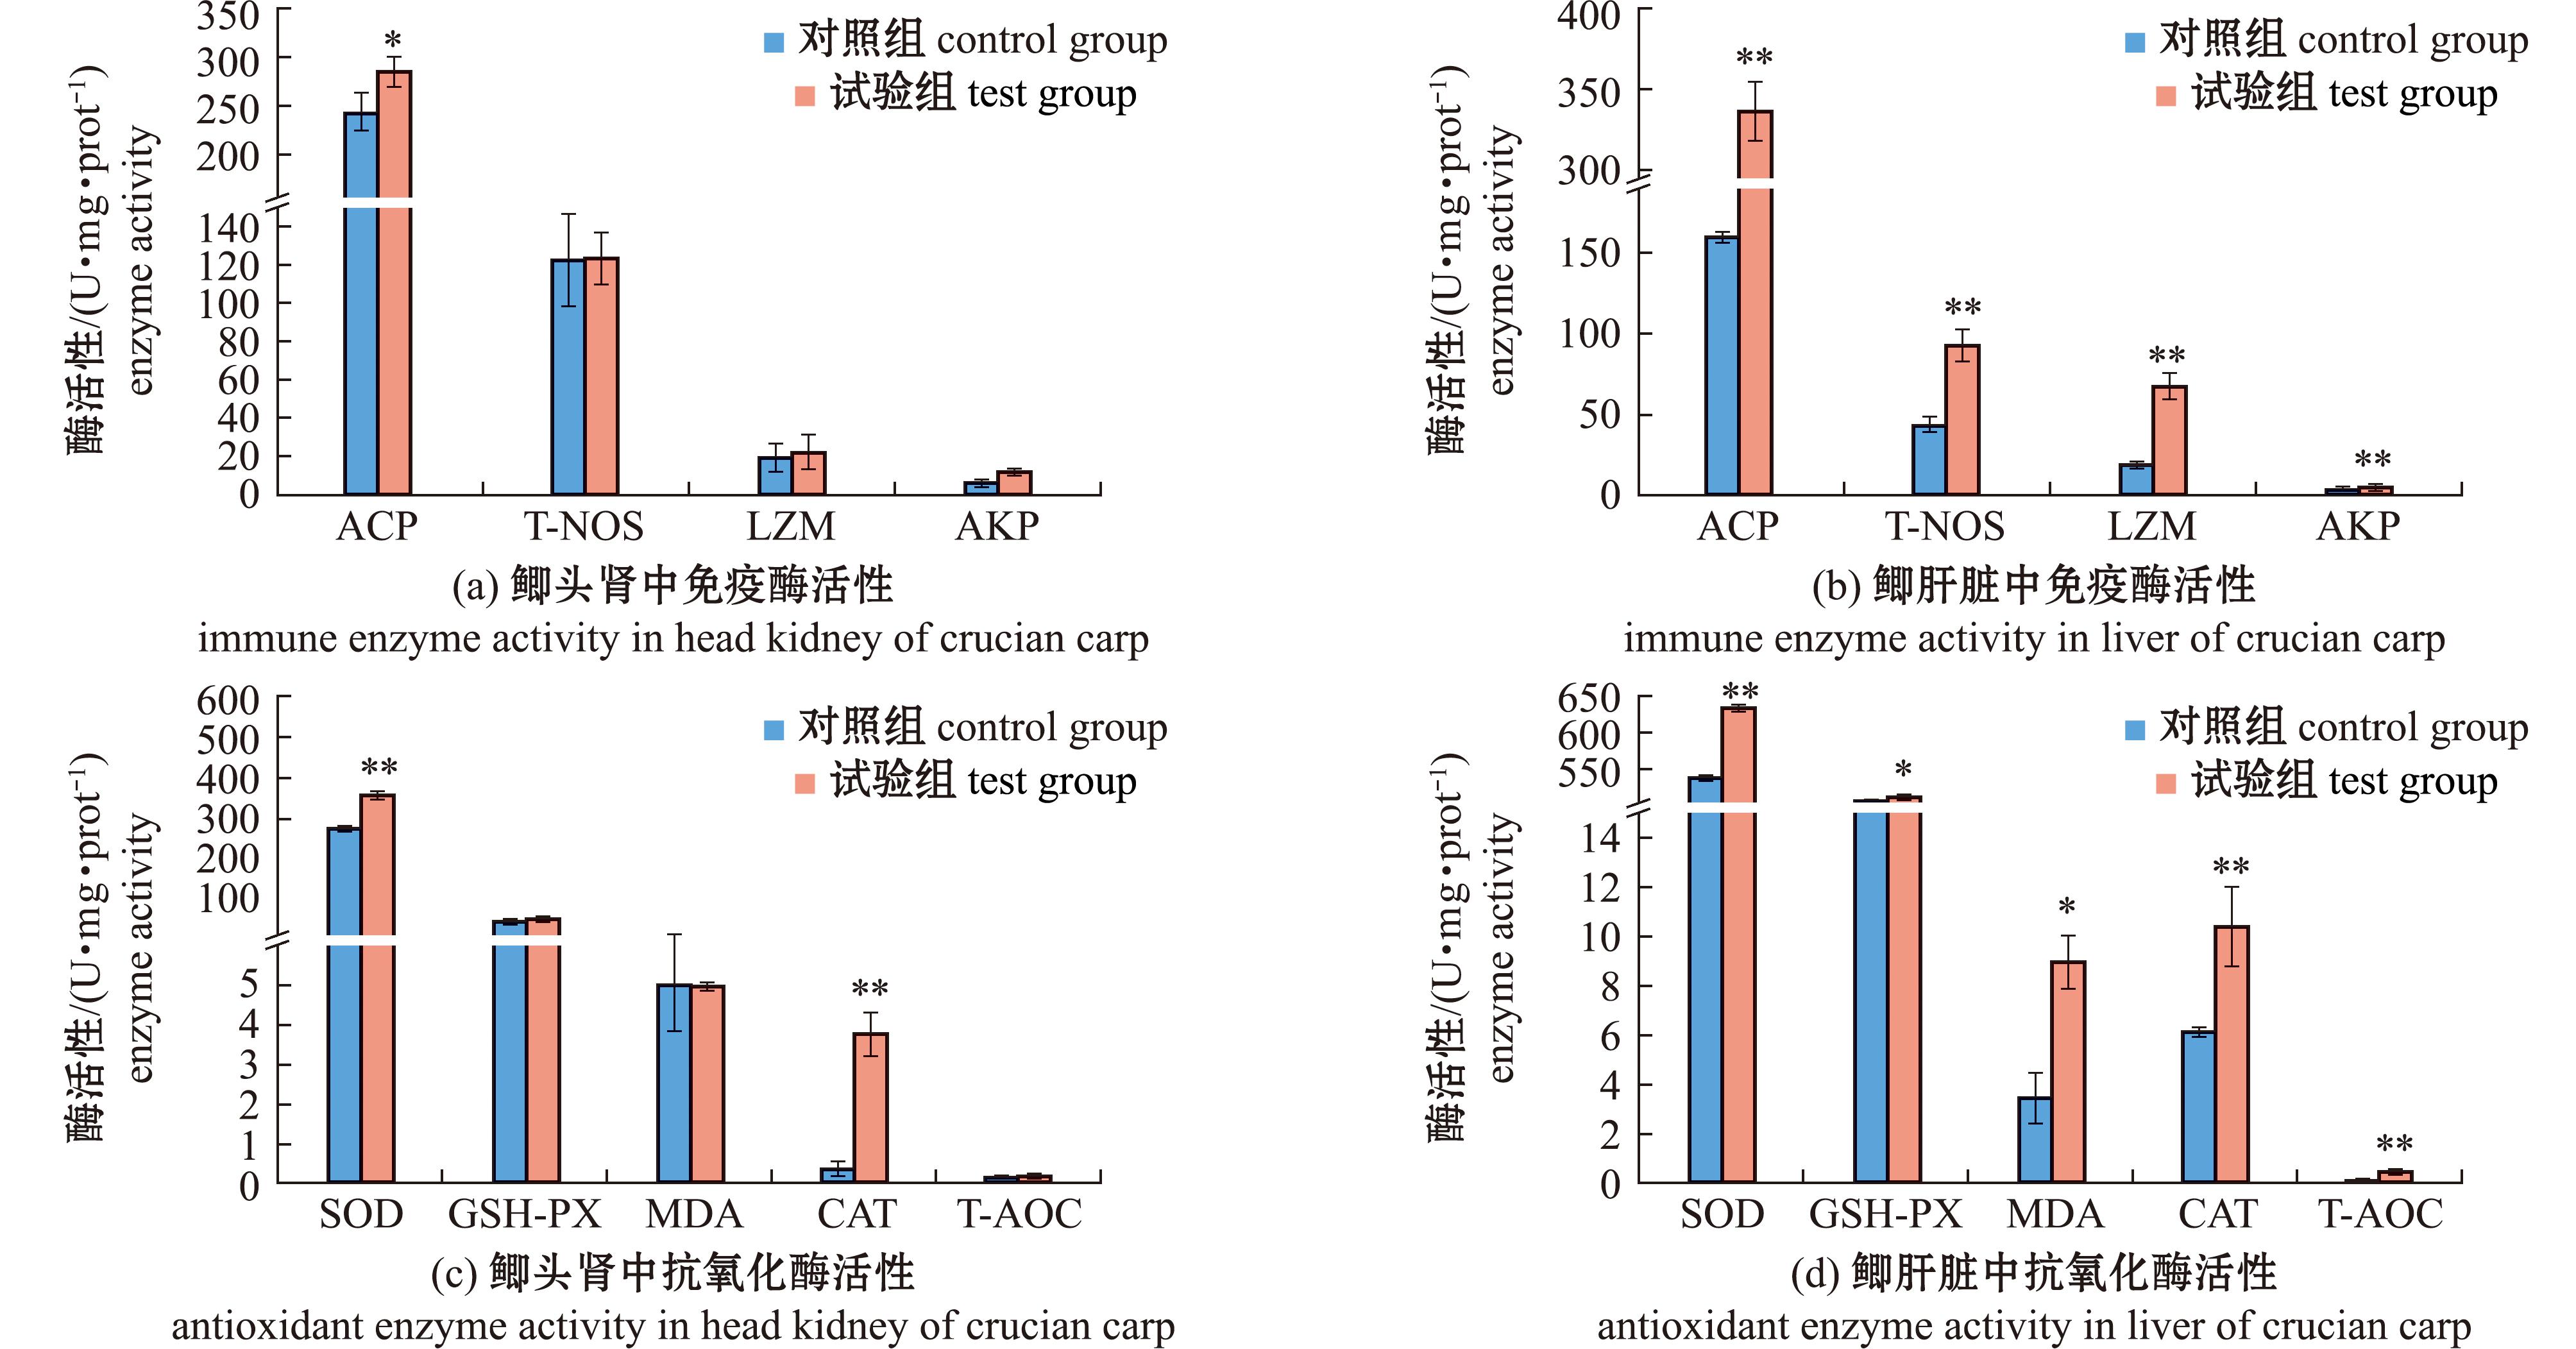
*表示P<0.05,**表示P<0.01。* means P<0.05,** means P<0.01.
图1 果胶寡糖对鲫免疫酶和抗氧化物酶的影响
Fig.1 Effects of pectin oligosaccharides on immune enzymes and antioxidant enzymes in Carassius auratus
2.4 低酯化果胶寡糖对鲫肝脏和头肾组织切片的影响
图2为鲫肝脏的组织切片,通过组织学观察,发现对照组的肝脏组织较为松散,其中肝细胞体积较大有水肿,肝板结构较为清晰;血管收缩且里面充满红细胞,部分区域出现空泡和细胞坏死(图2A~C)。试验组降低了肝细胞的空泡率和坏死率,肝细胞纹路清晰且紧密,未见其他明显变化(图2D~F)。相比于对照组,果胶寡糖作为饲料添加剂对鲫肝脏具有一定保护作用。
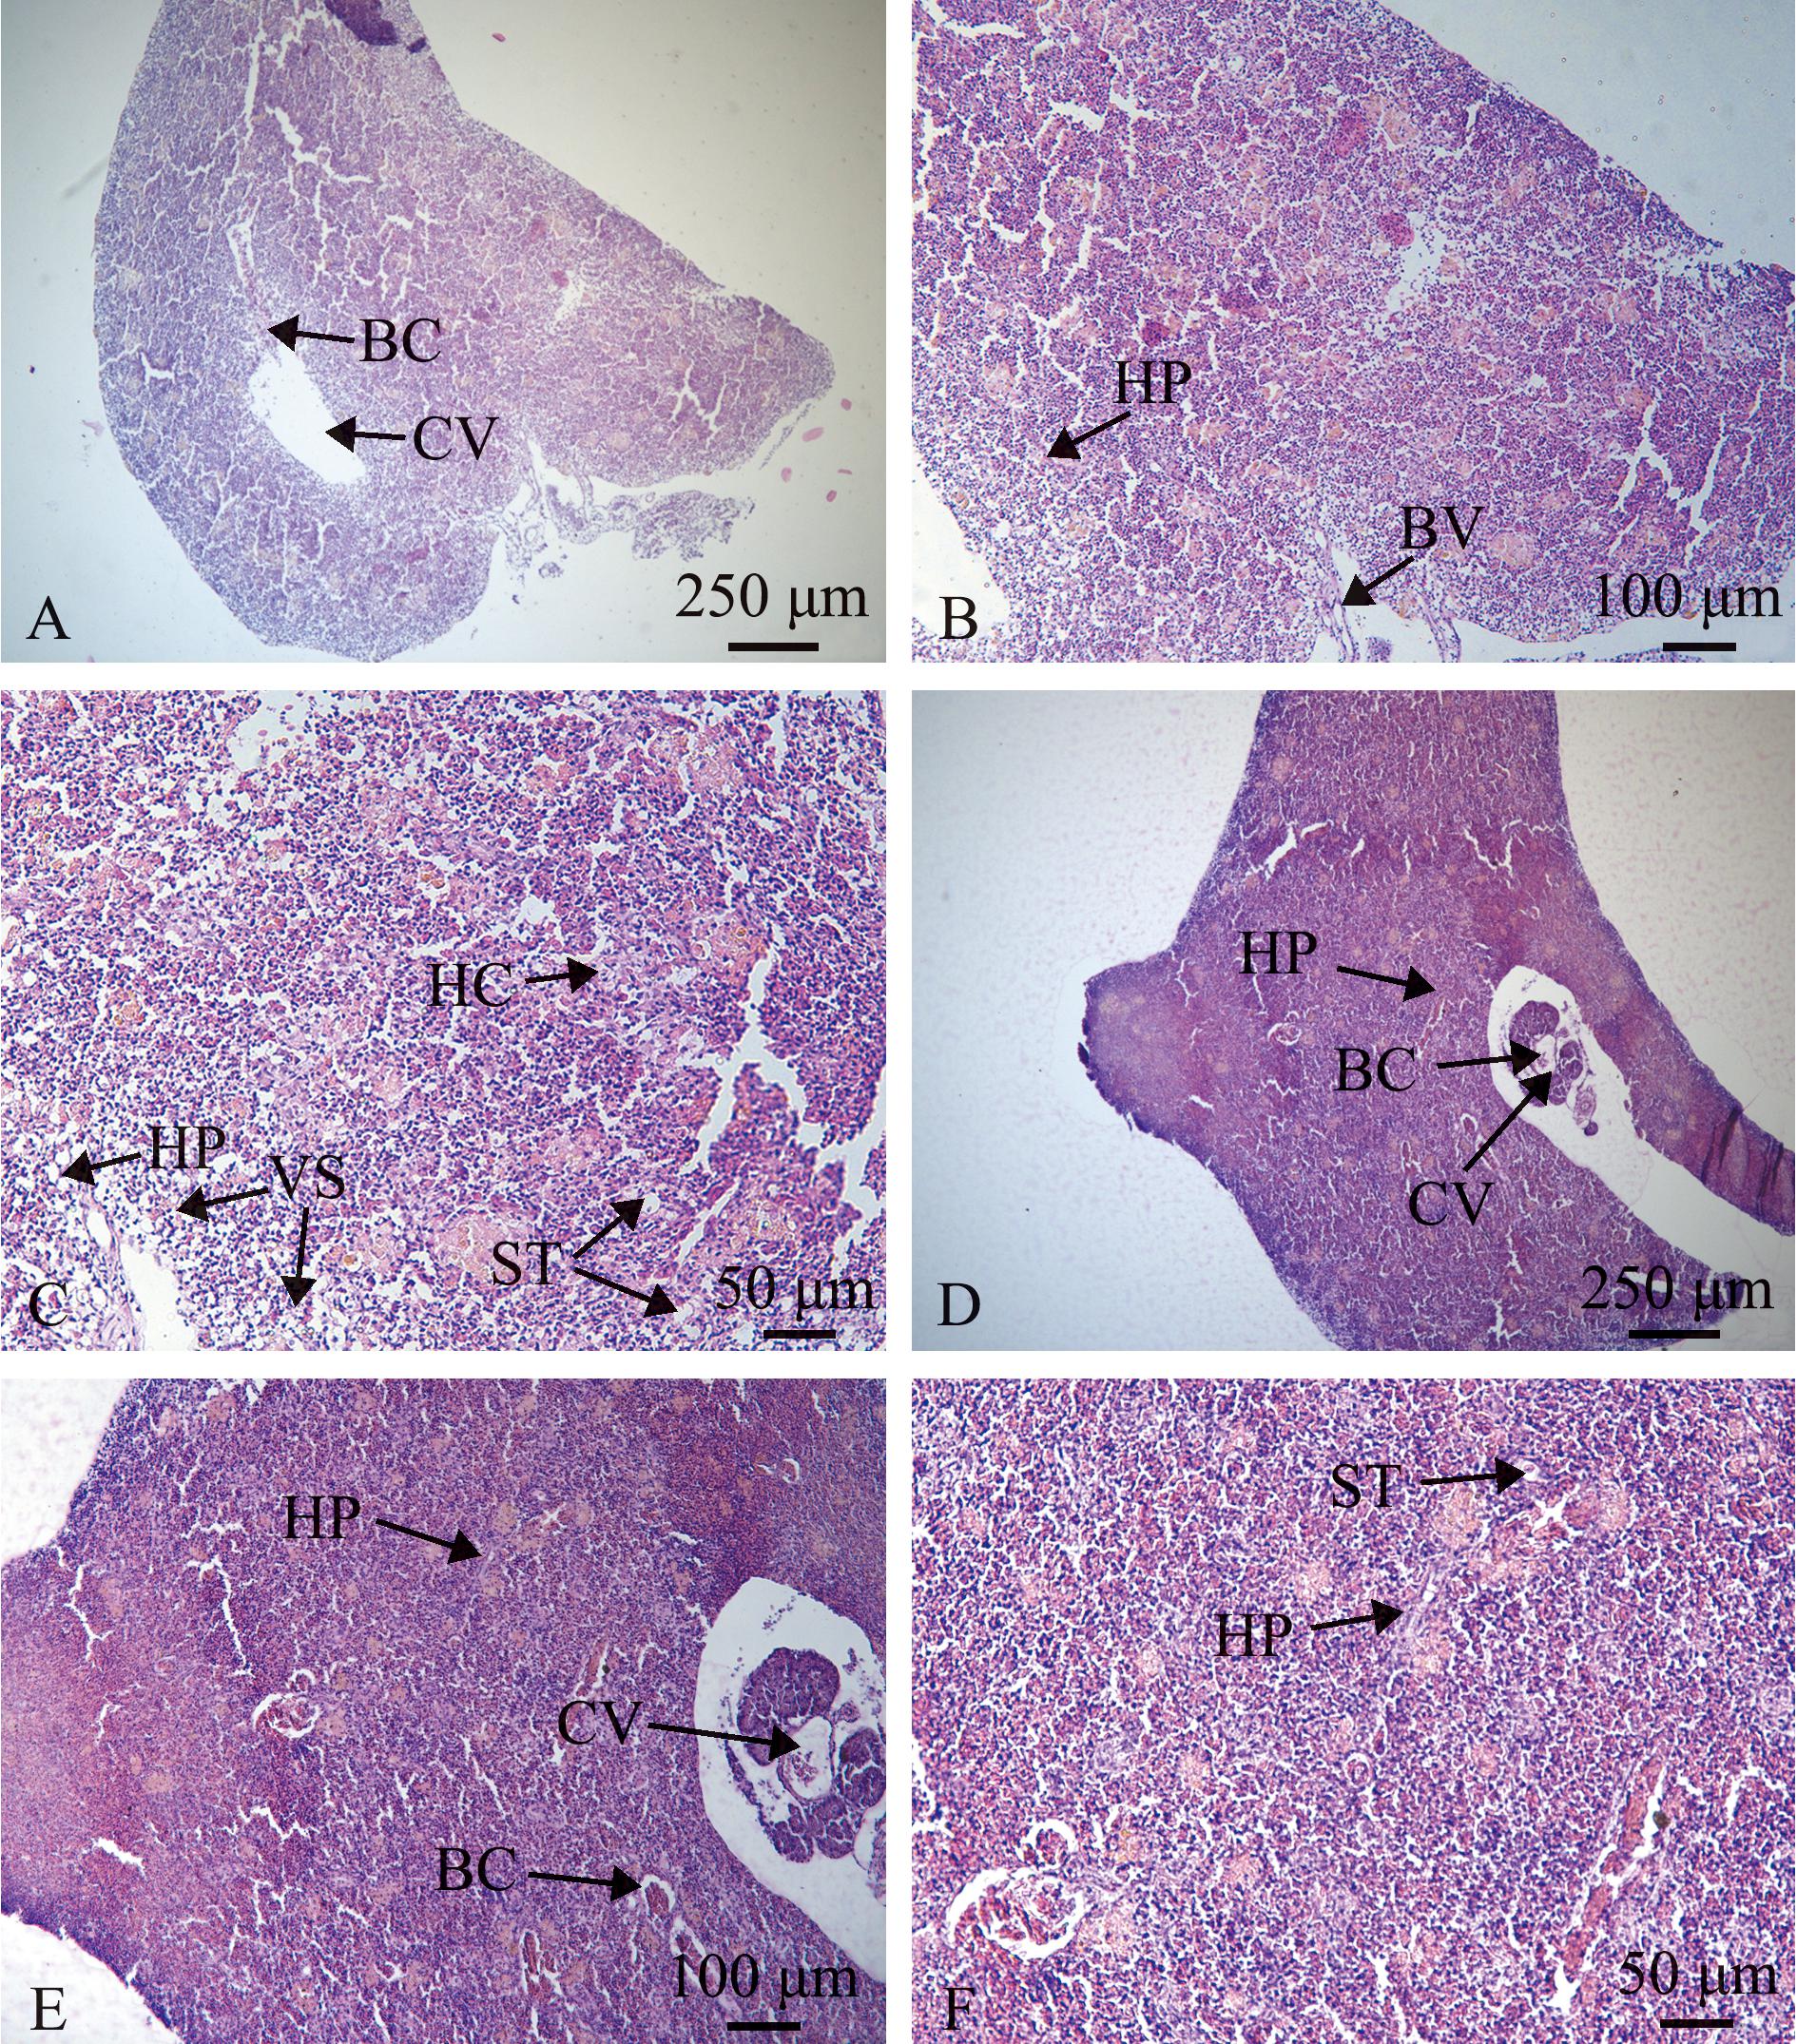
A~C—对照组肝脏切片,其中A为5×下观察,B为10×下观察,C为20×下观察;D~F—试验组的肝脏切片,其中D为5×下观察,E为10×下观察,F为20×下观察。BC—红细胞;CV—中央静脉;BV—血管;HP—肝板;HC—肝细胞;VS—空泡。
A-C—liver slices of control group,A—5×lower observation,B—10×lower observation,and C—20×lower observation;D-F—liver slices of test group,D—5×observation,E—10×observation,F—20×observation.BC—red blood cell;CV—central vein;BV—blood vessel;HP—liver plate;HC—liver cell;VS—vacuole.
图2 肝脏组织切片
Fig.2 Liver tissue slices
图3为头肾的组织切片,对照组肾小管出现收缩和坏死的现象,有少量的肾小球上皮细胞出现萎缩并造成空泡变性(图3A~C)。试验组肾小管结构完好,与对照组相比,肾小管的坏死率降低,肾小管无肿胀变形,管腔正常;肾小球较为饱满、大小正常,细胞核分布均匀,无异常(图3D~F)。相比于对照组,果胶寡糖作为饲料添加剂对鲫头肾具有一定保护作用。
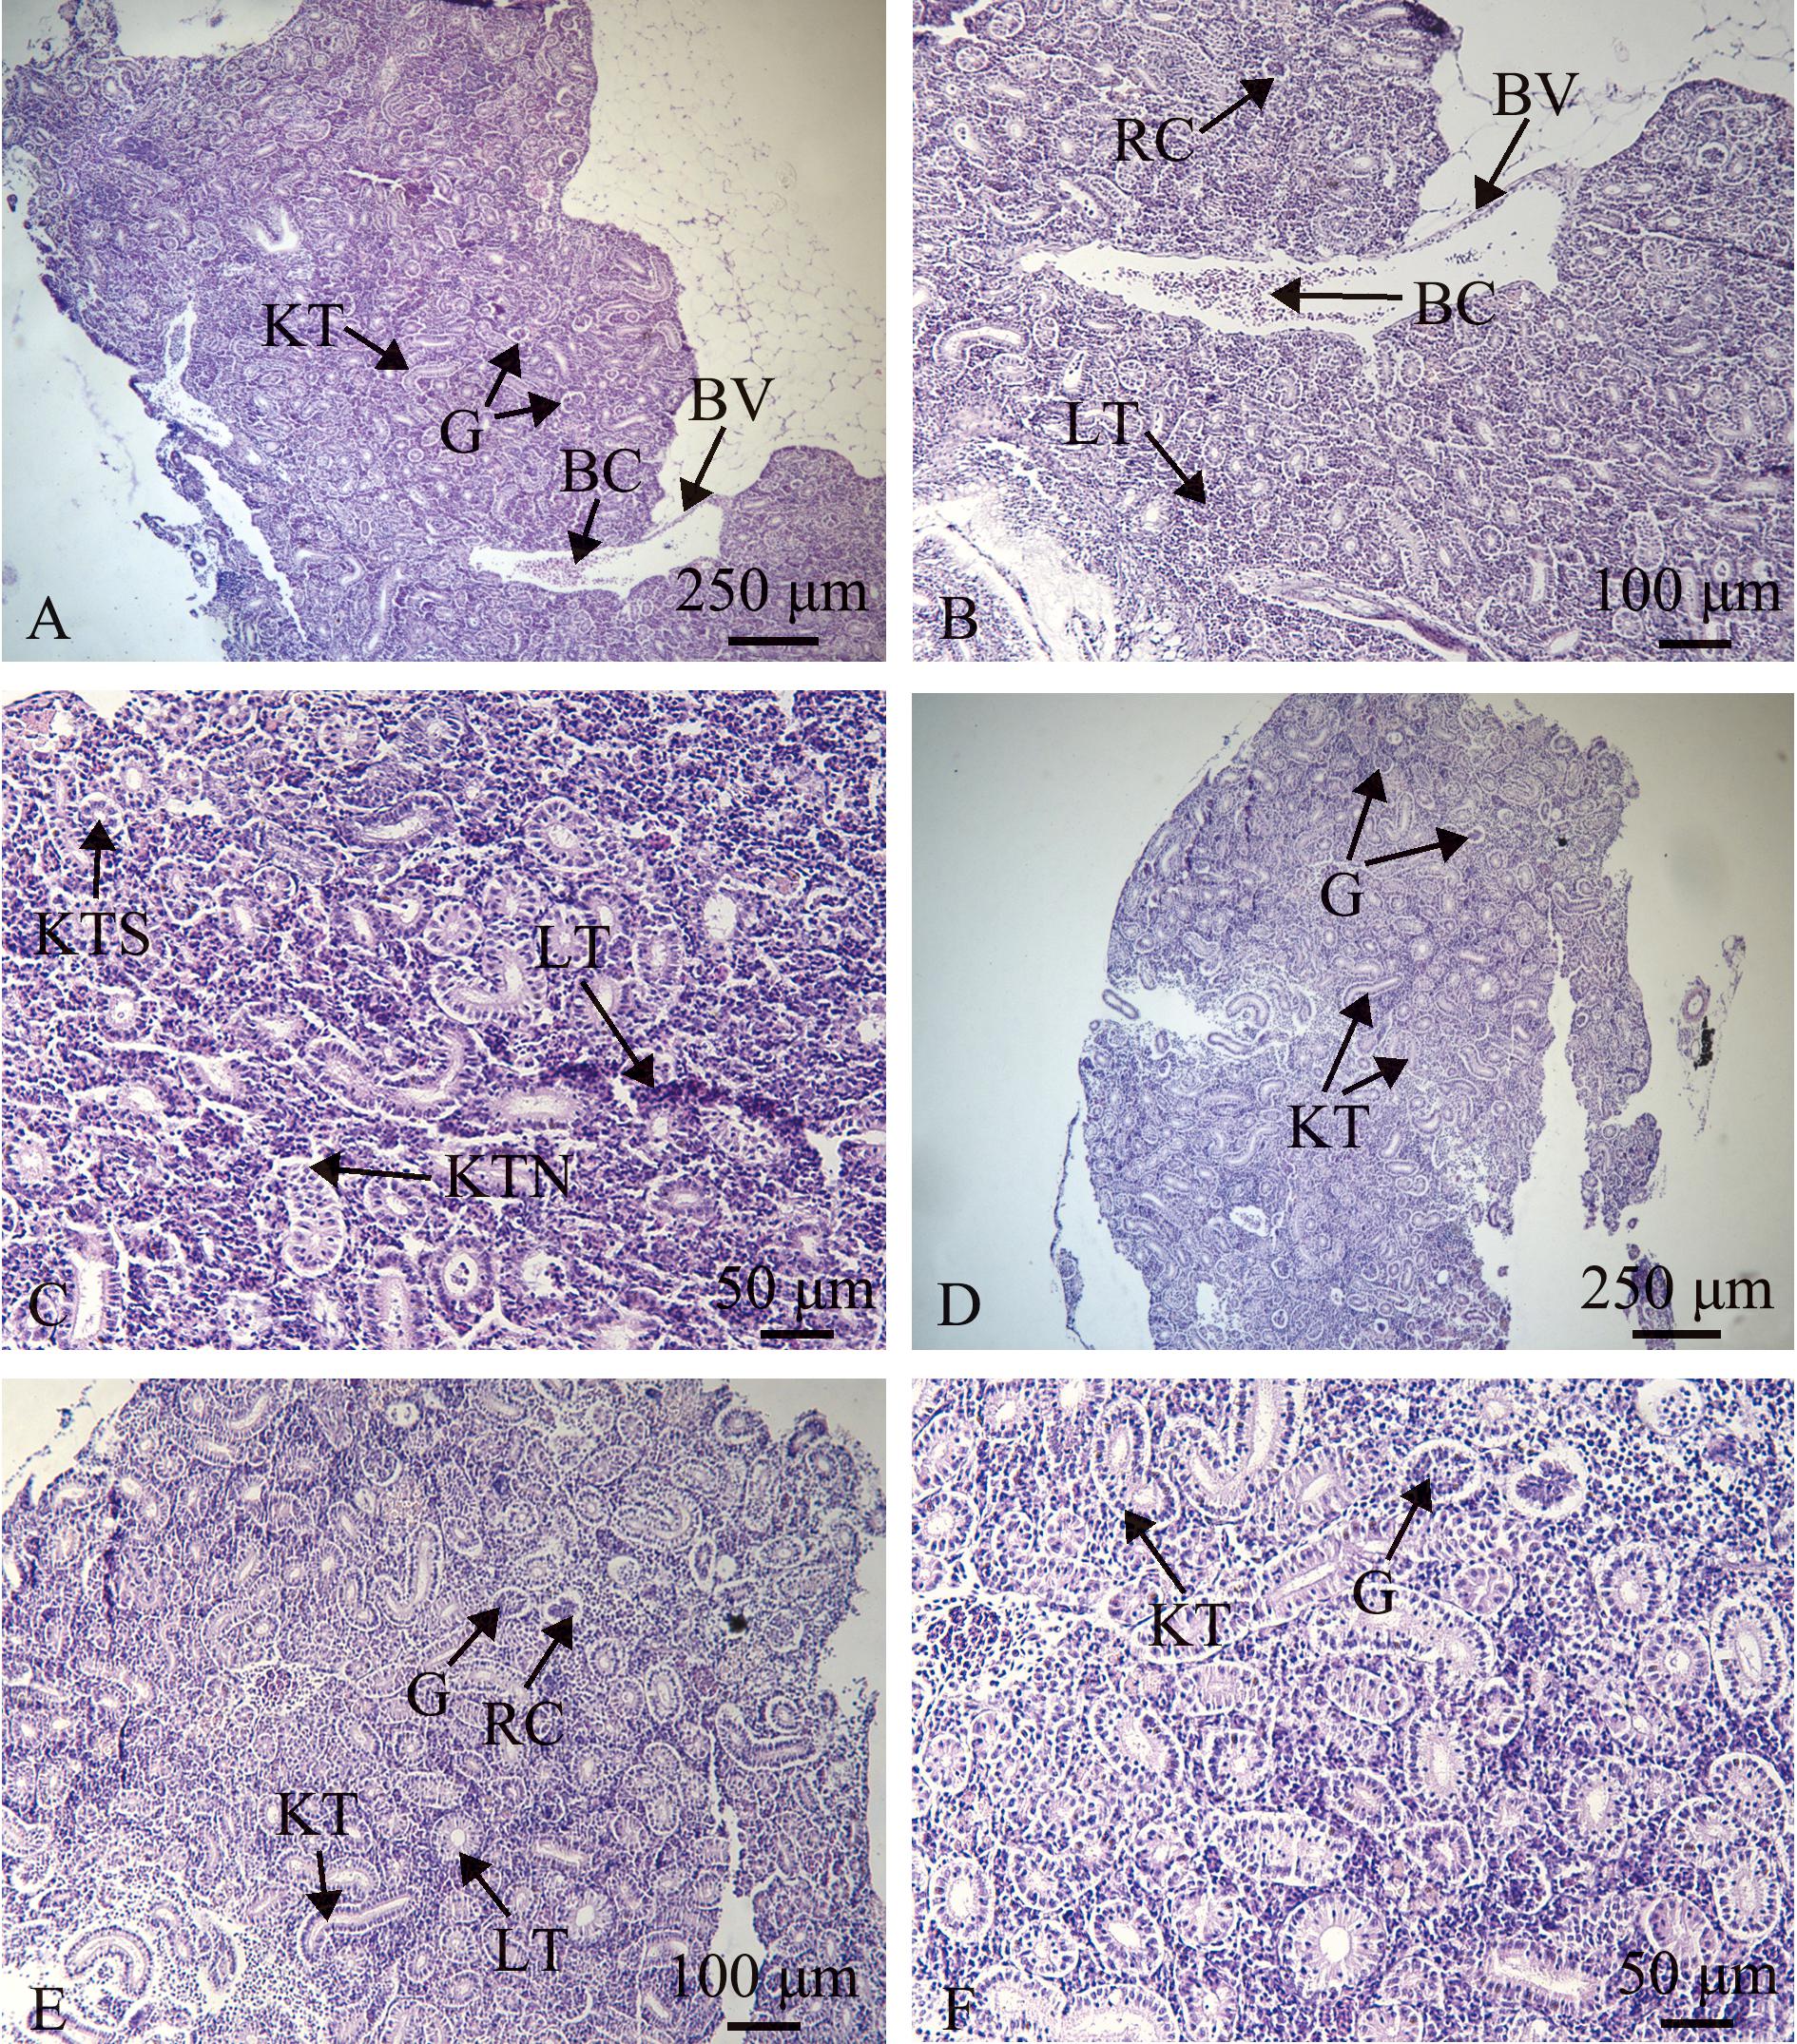
A~C—对照组头肾切片,其中A为5×下观察,B为10×下观察,C为20×下观察;D~F—试验组的头肾切片,其中D为5×下观察,E为10×下观察,F为20×下观察。KT—肾小管;G—肾小球;LT—拟淋巴组织;RC—肾小囊;KTS—肾小管收缩;KTN—肾小管坏死。
A-C—head kidney slices of control group,A—5×lower observation,B—10×lower observation,C—20×lower observation;D-F—the head kidney slices of test group,D—5×lower observation,E—10×lower observation,F—20×lower observation.KT—renal tubular;G—glomerular;LT—lymphoid tissue;RC—capsule;KTS—tubular contraction;KTN—tubular necrosis.
图3 头肾组织切片
Fig.3 Renal tissue slices
2.5 攻毒试验
从图4可见,经过56 d喂养,由嗜水气单胞菌攻毒后显示,试验组与对照组的生存函数对比,试验组可有效增强鲫对嗜水气单胞菌的抵抗力。
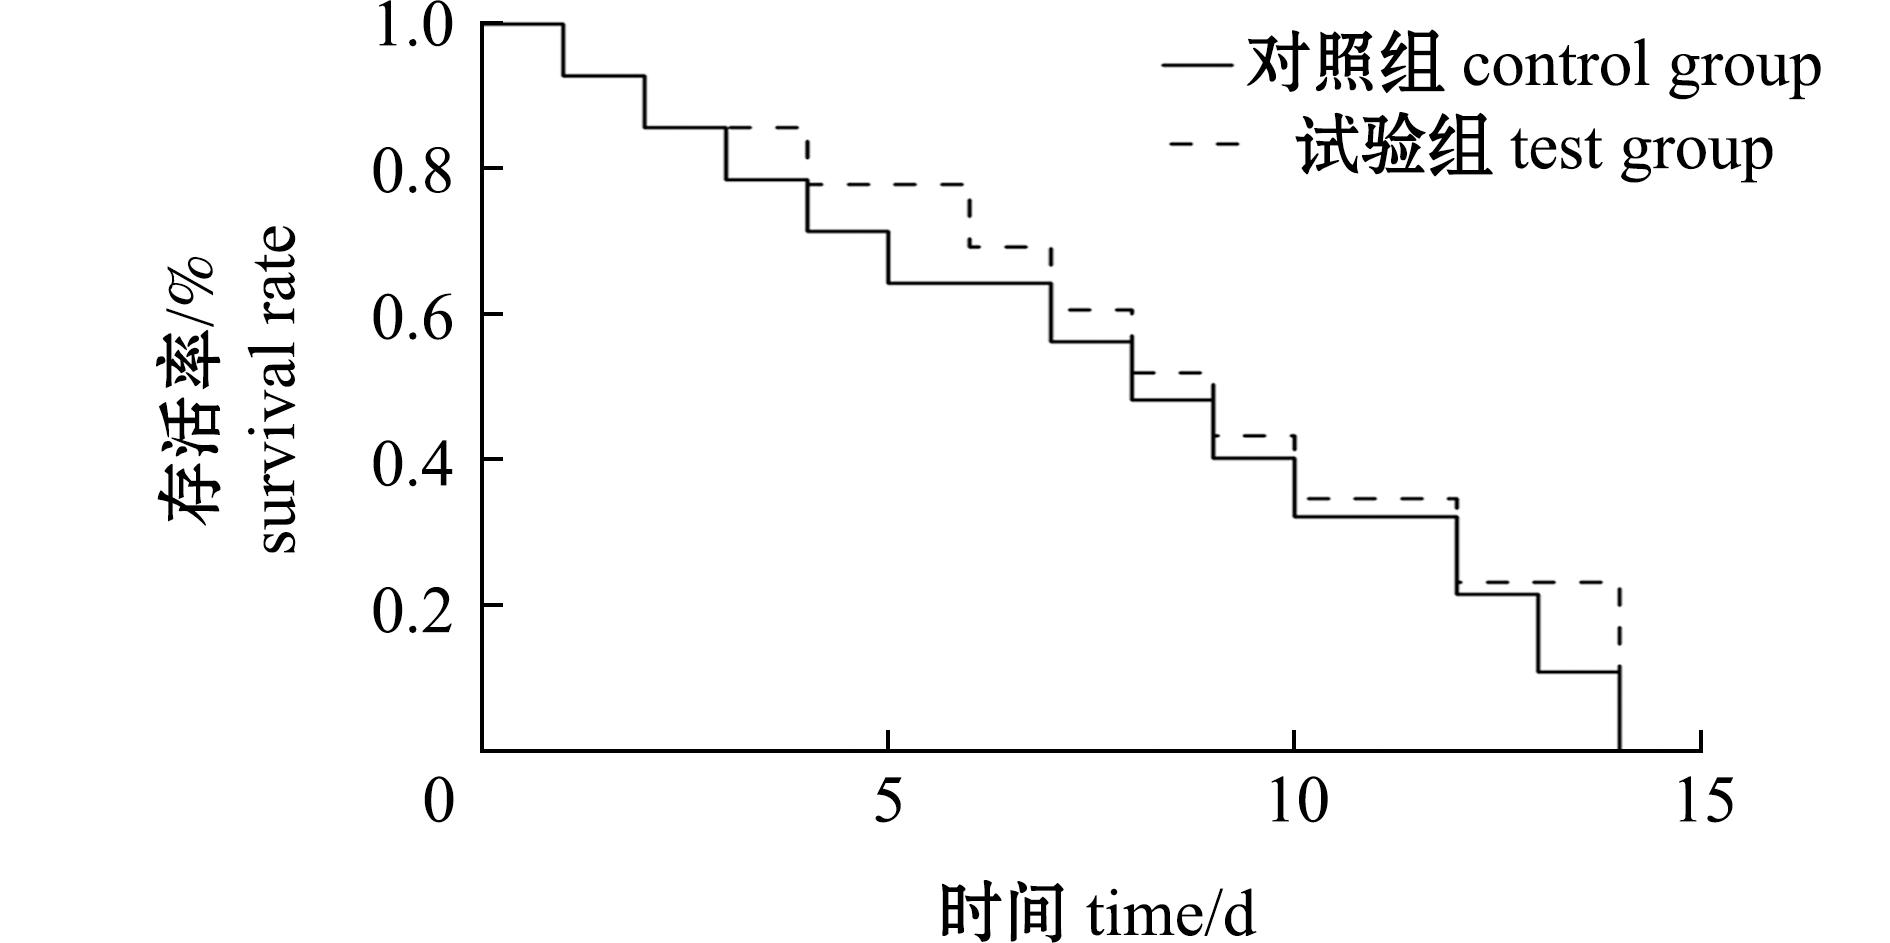
图4 嗜水气单胞菌攻毒后鲫鱼的生存函数
Fig.4 Survival function of crucian carp after challenge with Aeromonas hydrophila
3 讨论
3.1 低酯化果胶寡糖对鲫生长性能的影响
试验组WGR和SGR显著高于对照组(P<0.05),与前期预试验结果一致,且与Cisse等[18]在肉鸡中的研究结论相似。果胶寡糖作为一种功能性寡糖,可改善肠道健康,进而提高饲料中营养物质的利用率,为鲫生长提供能量和营养供给,这与功能性寡糖在反刍动物中的生长促进机制相符[5,19]。两组中HSI和RSI无显著性差异,可能是因为幼鱼的代谢能量优先分配给躯体发育,而内脏器官发育相对滞后,因此即使添加果胶寡糖提升了整体生长性能,内脏器官与体质量的比值仍未出现显著变化,这与Di等[20]对鲽幼鱼的研究结果一致。此外,对照组IBW略高于试验组,但统计分析结果显示两组无显著性差异,且试验组WGR显著增高。这排除了初始体质量差异对于生长指标的干扰,进一步证实了果胶寡糖对鲫生长性能的促进作用。
值得注意的是,试验饲料与基础饲料的主要营养水平(如粗蛋白质、总磷、赖氨酸等)基本一致,仅在果胶寡糖的添加方面存在差异,这表明试验组生长性能的提升并非源于饲料营养水平的差异,而是源于果胶寡糖的作用。
3.2 低酯化果胶寡糖对鲫抗氧化能力的影响
试验组鲫肝脏和头肾的SOD、CAT活性极显著升高(P<0.01),肝脏的GSH-Px活性显著升高(P<0.05),表明果胶寡糖可增强鲫的抗氧化能力。SOD和CAT是生物体清除活性氧自由基(ROS)的关键抗氧化酶,SOD将机体内产生的ROS分解成过氧化氢,CAT和GSH-Px作为过氧化氢的清除剂,将过氧化氢还原成氧分子和水,从而维持机体的正常生理活动,故可作为鱼类机体在氧化应激状态的重要指示物[21-22]。试验组鲫肝脏T-AOC极显著升高(P<0.01),进一步证实POS可提升机体整体抗氧化水平,这与黑莓POS清除DPPH自由基的体外研究结果一致,表明POS的抗氧化作用在体内外均有效[23]。
值得注意的是,试验组鲫肝脏MDA含量显著升高(P<0.05)。MDA是脂质过氧化产物,能够反映细胞氧化应激的损伤程度,但其含量需结合组织病理和抗氧化酶活性综合判断[3]。本研究中,试验组肝细胞空泡和坏死减少,且SOD、CAT活性极显著升高(P<0.01),说明ROS未造成组织损伤,MDA含量升高并非单纯因氧化损伤,而可能与脂质代谢有关。刘杰等[24]研究发现,大蒜多糖促进小鼠肝脏脂质代谢时,MDA含量会轻微升高但组织损伤减少;Jia等[25]也证实,原花青素可通过增强鲤肝脏脂质代谢导致MDA含量短暂升高。
3.3 低酯化果胶寡糖对鲫免疫能力的影响
试验组血清Ig极显著升高(P<0.01),与Zhang等[26]发现POS可以提升小鼠血清免疫球蛋白的结果一致,表明POS可激活鱼类的体液免疫。Ig是鱼类先天性免疫的重要抗体(如IgM),可特异性结合病原菌表面抗原,阻止其黏附宿主细胞,为后续攻毒试验中存活率提升奠定基础[27-29]。研究发现,芫荽提取物和甘露寡糖也可使血清中的免疫球蛋白升高[30-31]。两组TP无显著性差异,果胶寡糖作为生物活性物质可以有效提升小鼠血清中免疫球蛋白的含量,可以增加Ig的产生,激活免疫系统,且不会对总蛋白含量造成影响,本研究结果与其一致。
试验组血细胞吞噬活性和呼吸爆发显著升高(P<0.05),揭示了POS对细胞免疫的激活作用。吞噬活性是细胞反应的第一道防线,在先天性免疫中发挥重要作用[32]。本研究中使用的果胶寡糖属于低酯化寡糖且含有大量的糖醛酸,而低酯化(DM)果胶已被证明可以通过果胶上的非酯化半乳糖醛酸(GalAs)与Toll样受体2(TLR2)上的正电荷之间的相互作用来减轻巨噬细胞的炎症,增强吞噬活性,具有高半乳糖醛酸(HG)结构的多糖通过TLR-4/MyD88途径进行免疫刺激[33-34]。本研究中吞噬活性的升高表明机体免疫系统的激活,呼吸爆发的升高可能与吞噬活性的升高有关。因此,果胶寡糖可以通过激活鲫机体的免疫系统,提高免疫力。此外,试验组肝脏T-NOS、LZM极显著升高(P<0.01),进一步佐证细胞免疫激活,T-NOS催化产生的NO是巨噬细胞杀伤病原体的重要效应分子,LZM是巨噬细胞的标志性杀菌酶[35-36]。两种酶活性升高可能归因于吞噬细胞群的增多,表明果胶寡糖可以提高巨噬细胞的吞噬活性[21]。
本研究中试验组肝脏和头肾的病理损伤显著改善,其机制与免疫-抗氧化协同作用密切相关。肝脏和肾脏是机体营养物质吸收和代谢的主要器官,肝脏具有免疫功能,可调节机体凝血和抗凝血的动态平衡[37]。肝脏免疫酶的升高可增强对病原菌清除能力,抗氧化酶的升高可减少ROS损伤,二者共同维持肝细胞结构完整,这与Wang等[38]在肉鸡研究中发现POS具有保护肝脏减少坏死功能的结论相一致;头肾的SOD、CAT活性升高可减少肾小管氧化损伤,ACP活性升高则能促进肾细胞的代谢修复,避免肾小管收缩和肾小球萎缩,这与Outtandy等[39]研究发现抗氧化酶活性与斑马鱼肾小管完整性正相关的结论一致。
攻毒试验中,试验组可以提高感染嗜水气单胞菌鲫的存活率,前期对果胶寡糖生物活性的研究多为体外抗菌研究,而对体内抗病机制的研究较少[40-41]。本试验结果可能是“免疫-抗氧化-组织保护”协同作用的集中体现,体液免疫阻止病原菌黏附,细胞免疫清除病原菌,抗氧化系统减轻感染引发的氧化应激,肝和头肾损伤减少维持器官功能,确保免疫和代谢正常运行。
4 结论
1)在饲料中添加POS可显著提升鲫的WGR和SGR(P<0.05),但对HSI和RSI无显著影响,说明饲料中添加POS有利于鲫的生长。
2)在饲料中添加POS可极显著提高鲫血清Ig含量(P<0.01),显著增强血细胞吞噬活性和呼吸爆发(P<0.05),极显著提升肝脏ACP、AKP、T-NOS、LZM、SOD、CAT、T-AOC活性(P<0.01),显著提升肝脏GSH-Px活性和MDA含量(P<0.05),显著提升头肾ACP活性(P<0.05),极显著提升头肾SOD和CAT活性(P<0.01),说明POS可提高鲫的抗氧化和免疫能力。
3)在饲料中添加POS可降低鲫肝细胞空泡率、坏死率及头肾肾小管坏死率,改善肝脏及头肾病理损伤,维持组织结构完整性。
4)在饲料中添加POS可提高鲫感染嗜水气单胞菌后的存活率,增强抗病性。
5)本试验条件下,鲫饲料中POS的适宜添加量为2 g/kg。
[1] 杨云磊,陈永进,薛雪,等.鲫不同地理种群的生长特征及其环境影响因子研究[J].水生生物学报,2026,50(1):165-176.YANG Y L, CHEN Y J, XUE X, et al.Growth characteristics of different geographic populations of crucian carp (Carassius auratus) and their environmental influencing factors[J].Acta Hydrobiologica Sinica,2026,50(1):165-176.(in Chinese)
[2] 陈海英,徐澜姿,张坤,等.我国水产养殖典型生态模式发展现状初步研究[J].中国水产,2025(5):27-28.CHEN H Y,XU L Z,ZHANG K,et al.A preliminary study on the development status of typical ecological models in Chinese aquaculture[J].China Fisheries,2025(5):27-28.(in Chinese)
[3] 符广才,李道君,杨宏伟,等.饲料中添加壳寡糖对斑马鱼肝肠健康和抗病能力的影响[J].中国农业科技导报,2025,27(5):222-230.FU G C,LI D J,YANG H W,et al.Effects of chitosan oligosaccharides in dietary on hepatointestinal health and disease resistance of zebrafish[J].Journal of Agricultural Science and Technology,2025,27(5):222-230.(in Chinese)
[4] MOHAN K N,RAJAN D K,GANESAN A R,et al.Chitin,chitosan and chitooligosaccharides as potential growth promoters and immunostimulants in aquaculture:a comprehensive review[J].International Journal of Biological Macromolecules,2023,251:126285.
[5] 夏元鸿,甄玉国,王涛,等.功能性寡糖的特性、代谢途径及其在反刍动物中的应用研究进展[J].黑龙江畜牧兽医,2024(16):23-27,37.XIA Y H,ZHEN Y G,WANG T,et al.Research progress on the characteristics,metabolic pathways,and application of functional oligosaccharides in ruminant feed[J].Heilongjiang Animal Science and Veterinary Medicine,2024(16):23-27,37.(in Chinese)
[6] LIU L X,YANG D Q,LIU H L,et al.Proliferation of probiotics and antioxidant effects of functionaloligosaccharides added in fermented dairy product[J].International Journal of Dairy Technology,2024,77(3):893-904.
[7] CHEN Y J,SUI X,WANG Y,et al.Preparation,structural characterization,biological activity,and nutritional applications of oligosaccharides[J].Food Chemistry:X,2024,22:101289.
[8] 孔慧,张达莉,徐海山,等.果胶寡糖的制备、分离纯化及其生物活性研究进展[J].食品科学,2023,44(5):321-337.KONG H,ZHANG D L,XU H S,et al.Progress in preparation,purification,and biological activities of pectic oligosaccharides[J].Food Science,2023,44(5):321-337.(in Chinese)
[9] LIU Y L,DONG M,YANG Z Y,et al.Anti-diabetic effect of Citrus pectin in diabetic rats and potential mechanism via PI3K/Akt signaling pathway[J].International Journal of Biological Macromolecules,2016,89:484-488.
[10] YEUNG Y K,KANG Y R,SO B R,et al.Structural,antioxidant,prebiotic and anti-inflammatory properties of pectic oligosaccharides hydrolyzed from okra pectin by Fenton reaction[J].Food Hydrocolloids,2021,118:106779.
[11] WANG H Y,LIU N,YANG Z Z,et al.Preventive effect of pectic oligosaccharides on acute colitis model mice:modulating epithelial barrier,gut microbiota and Treg/Th17 balance[J].Food &Function,2022,13(19):9999-10012.
[12] DE ALENCAR J C G,DA SILVA PINTO G T,CERQUEIRA E SILVA K F,et al.Pectin and pectic oligosaccharides (POS):recent advances for extraction,production,and its prebiotic potential[J].Trends in Food Science &Technology,2025,155:104808.
[13] 丁鹏,沈照鹏,张京良,等.酶法制备黑莓果胶寡糖及其抗氧化活性研究[J].食品工业科技,2016,37(11):76-79.DING P,SHEN Z P,ZHANG J L,et al.Study on preparation of pectic oligosaccharides from blackberry by enzymatic hydrolysis and its antioxidant activities[J].Science and Technology of Food Industry,2016,37(11):76-79.(in Chinese)
[14] ANDERSON D P, SIWICKI A K.Basic hematology and serology for fish health programs[M].Manila:Fish Health Section, Asian Fisheries Society,1995.
[15] SHARMA A,DEO A D,RITESHKUMAR S T,et al.Effect of Withania somnifera (L.Dunal) root as a feed additive on immunological parameters and disease resistance to Aeromonas hydrophila in Labeo rohita (Hamilton) fingerlings[J].Fish &Shellfish Immunology,2010,29(3):508-512.
[16] ANTAL P,SIPKA S,SUR NYI P,et al.Flow cytometric assay of phagocytic activity of human neutrophils and monocytes in whole blood by neutral red uptake[J].Annals of Hematology,1995,70(5):259-265.
[17] GEISSLER K,TRICOT G,GRIMM G,et al.Recombinant human colony stimulating factor-granulocyte/macrophage and-granulocyte,but not macrophage induce the development of a respiratory burst in primary human myeloid leukemic cells in vitro[J].Blut,1989,59(3):226-230.
[18] CISSE S,BAHUT M,MARAIS C,et al.Fine characterization and microbiota assessment as keys to understanding the positive effect of standardized natural Citrus extract on broiler chickens[J].Journal of Animal Science,2023,101:skad069.
[19] 姜金池,杨晶晶,杜涛,等.功能性低聚糖的生物活性及其生物制造[J].食品研究与开发,2022,43(24):14-19.JIANG J C,YANG J J,DU T,et al.Biological activities and biomanufacturing of functional oligosaccharides[J].Food Research and Development,2022,43(24):14-19.(in Chinese)
[20] DI PANE J,JOLY L,KOUBBI P,et al.Ontogenetic shift in the energy allocation strategy and physiological condition of larval plaice (Pleuronectes platessa)[J].PLoS One,2019,14(9):e0222261.
[21] AFONSO V,CHAMPY R,MITROVIC D,et al.Reactive oxygen species and superoxide dismutases:role in joint diseases[J].Joint Bone Spine,2007,74(4):324-329.
[22] SHARAPOV M G,GUDKOV S V,LANKIN V Z,et al.Role of glutathione peroxidases and peroxiredoxins in free radical-induced pathologies[J].Biochemistry Biokhimiia,2021,86(11):1418-1433.
[23] ZAMORA R,ALCON E,HIDALGO F J.Addition of olivetol to crackers decreases malondialdehyde content and produces malondialdehyde-olivetol adducts[J].Food Chemistry,2024,432:137046.
[24] 刘杰,玉王宁,王成海,等.大蒜多糖通过核因子-κB通路改善代谢相关脂肪性肝病小鼠肝脏损伤[J].食品科学,2024,45(3):53-60.LIU J,YU W N,WANG C H,et al.Garlic polysaccharides ameliorate liver injury in mice metabolic-associated fatty liver disease by regulating the nuclear factor-κB signaling pathway[J].Food Science,2024,45(3):53-60.(in Chinese)
[25] JIA R,HOU Y R,FENG W R,et al.Multi-omics analysis to understand the effects of dietary proanthocyanidins on antioxidant capacity,muscle nutrients,lipid metabolism,and intestinal microbiota in Cyprinus carpio[J].Antioxidants,2023,12(12):2095.
[26] ZHANG S S,HU H J,HE W Y,et al.Regulatory roles of pectin oligosaccharides on immunoglobulin production in healthy mice mediated by gut microbiota[J].Molecular Nutrition &Food Research,2019,63(14):e1801363.
[27] HOLODICK N E,RODR GUEZ-ZHURBENKO N,HERNNDEZ A M.Defining natural antibodies[J].Frontiers in Immunology,2017,8:872.
[28] COLL J M.Herpesvirus infection induces both specific and heterologous antiviral antibodies in carp[J].Frontiers in Immunology,2018,9:39.
[29] ETAYO A,BJØRGEN H,KOPPANG E O,et al.The ontogeny of lymphoid organs and IgM+B-cells in ballan wrasse (Labrus bergylta) reveals a potential site for extrarenal B-cell lymphopoiesis:The pancreas[J].Fish &Shellfish Immunology,2024,144:109273.
[30] SAFARI R,HOSEINIFAR S H,DADAR M,et al.The effects of oriandrum sativumL.as feed additive on mucosal immune parameters,antioxidant defence and,immune-related genes expression in zebrafish (Danio rerio)[J].Aquaculture Research,2019,50(9):2621-2627.
[31] KHOSRAVI-KATULI K,MOHAMMADI Y,RANJBARAN M,et al.Effects of mannan oligosaccharide and synbiotic supplementation on growth performance and immune response of Gilthead Sea Bream (Sparus aurata) before and after thermal stress[J].Aquaculture Research,2021,52(8):3745-3756.
[32] MIT C,BADO-NILLES A,TURI S C,et al.PBTK-TD model of the phagocytosis activity in three-spined stickleback exposed to BPA[J].Aquatic Toxicology,2023,261:106608.
[33] SAHASRABUDHE N M,BEUKEMA M,TIAN L M,et al.Dietary fiber pectin directly blocks toll-like receptor 2-1 and prevents doxorubicin-induced ileitis[J].Frontiers in Immunology,2018,9:383.
[34] WANG H L,BI H T,GAO T T,et al.A homogalacturonan from Hippophae rhamnoides L.Berries enhance immunomodulatory activity through TLR4/MyD88 pathway mediated activation of macrophages[J].International Journal of Biological Macromolecules,2018,107(A):1039-1045.
[35] ZHANG M Z,SONG P W,JIANG H B,et al.The argininosuccinate synthetase can differentially regulate nitric oxide synthase in yellow catfish Pelteobagrus fulvidraco[J].Fish &Shellfish Immunology,2022,127:991-1000.
[36] SONG Q,XIAO Y,XIAO Z H,et al.Lysozymes in fish[J].Journal of Agricultural and FoodChemistry,2021,69(50):15039-15051.
[37] OTA N,SHIOJIRI N.Comparative study on a novel lobule structure of the zebrafish liver and that of the mammalian liver[J].Cell and Tissue Research,2022,388(2):287-299.
[38] WANG Z C,YU H M,XIE J J,et al.Effect of dietary zinc pectin oligosaccharides chelate on growth performance,enzyme activities,Zn accumulation,metallothionein concentration,and gene expression of Zn transporters in broiler chickens1[J].Journal of Animal Science,2019,97(5):2114-2124.
[39] OUTTANDY P,RUSSELL C,KLETA R,et al.Zebrafish as a model for kidney function and disease[J].Pediatric Nephrology,2019,34(5):751-762.
[40] FOTI P L,BALLISTRERI G,TIMPANARO N,et al.Prebiotic effects of citrus pectic oligosaccharides[J].Natural Product Research,2022,36(12):3173-3176.
[41] WANG S,DING S J,MENG K,et al.Preparation of methyl-esterified pectin oligosaccharides with antibacterial activity using fungus-derived bifunctional pectinase[J].Journal of Cleaner Production,2022,333:130110.