Wnt信号是动物中高度保守的信号级联,在胚胎发育和成体组织稳态中起着关键作用[1]。Wnt信号通路的传导需要Wnt蛋白与细胞表面卷曲(frizzled,FZD)受体结合,启动下游转录应答[2-3]。哺乳动物的FZD基因亚型已鉴定出10种[4-5],FZD受体家族成员的异常表达与胰腺导管腺癌、胃癌、胚胎造血、神经系统疾病的调节密切相关[1,6-8]。fzd4基因是FZD受体家族成员,可编码含537个氨基酸的7次跨膜蛋白,其N端半胱氨酸富集结构域(cysteine-rich domain,CRD)和C端PDZ基序分别介导Wnt配体结合及信号转导[9-10]。该基因通过激活Wnt/β-catenin通路调控视网膜血管发育[11],其突变(如错义突变S91F、C377F等)会导致家族性渗出性玻璃体视网膜病变[12],表现为视网膜血管异常和新生血管形成。在肿瘤领域,fzd4低表达与皮肤鳞状细胞癌增殖增强相关[13],过表达可抑制细胞生长并促进凋亡。此外,FZD4-LRP5复合物在Norrin信号通路中维持血管完整性,其功能缺失的小鼠模型呈现视网膜出血表型[14]。fzd4受体作为Wnt/β-catenin信号通路的核心组分,在调控细胞极性与胚胎发育等生理过程中发挥了关键作用[15]。近年的研究中发现,fzd4基因的功能分化与脂质代谢调控密切相关[16],但其在鲈形目经济鱼类中的分子机制仍存在显著知识空白。
翘嘴鳜(Siniperca chuatsi)是鲈形目(Perciformes)鳜科(Sinipercidae)鳜属(Siniperca)的重要淡水经济鱼类[17],体侧扁、背高隆起,下颌前突显著,体表具暗棕色斑纹及细密鳞片,分布于闽江及以北地区,长江中游资源最为丰富。该鱼肉质细嫩低脂,富含必需氨基酸,被誉为“淡水石斑”,是传统名产及出口创汇品种[18]。翘嘴鳜作为中国重要的淡水养殖物种,其脂肪性状的遗传调控研究对产业提质增效具有重要应用价值。目前,鱼类fzd4基因相关研究多集中于模式生物斑马鱼(Danio rerio)[19],而鲈形目鱼类的fzd4基因结构特征、表达模式及功能演化尚未系统解析。研究表明,fzd4的CRD结构域和7次跨膜区在脊椎动物中高度保守[20],但其信号肽序列和组织特异性表达呈现物种差异。慢病毒载体系统因其稳定的基因组整合特性,已成为基因功能研究的重要工具[21-22],但针对翘嘴鳜的优化载体体系仍未见报道。
本研究中以翘嘴鳜为研究对象,通过整合生物信息学分析系统描绘fzd4基因及其编码蛋白的序列特征,通过系统进化与基序分析揭示其作为鲈形目特有的信号肽,预测fzd4在调控脂肪生成中的潜在功能,并且通过建立高效的AsiSI/MluI双酶切载体构建体系和稳定的病毒表达系统为分子进化分析提供了可靠试验材料,以期为后续功能验证、分子育种及脂肪性状定向改良提供有益参考。
1 材料与方法
1.1 材料
试验用翘嘴鳜购自河北省某养殖场。试验开始前,翘嘴鳜在1 000 L的玻璃钢桶中进行了为期1周的暂养。养殖期间水温控制在25 ℃±2 ℃,溶解氧含量保持在6 mg/L以上,养殖期间每天7:30和19:30各投喂1次,投喂至表现饱食。
1.2 方法
1.2.1 fzd4基因及其编码蛋白的序列特征 通过DNAMAN[23]分析核苷酸序列及其编码的氨基酸序列;采用Expasy ProtParam分析翘嘴鳜FZD4蛋白的理化性质;利用Cell-Ploc 2.0进行亚细胞定位预测,采用Deep TMHMM Server分析蛋白跨膜结构,SOPMA预测蛋白质二级结构,NetPhos 3.1分析磷酸化位点,NetNGlyc-1.0预测N-糖基化位点;采用GSDS 2.0预测内含子和外显子(表1)。
表1 本研究中使用的物种及fzd4基因序列号
Tab.1 Species and fzd4 gene accession numbers in this study
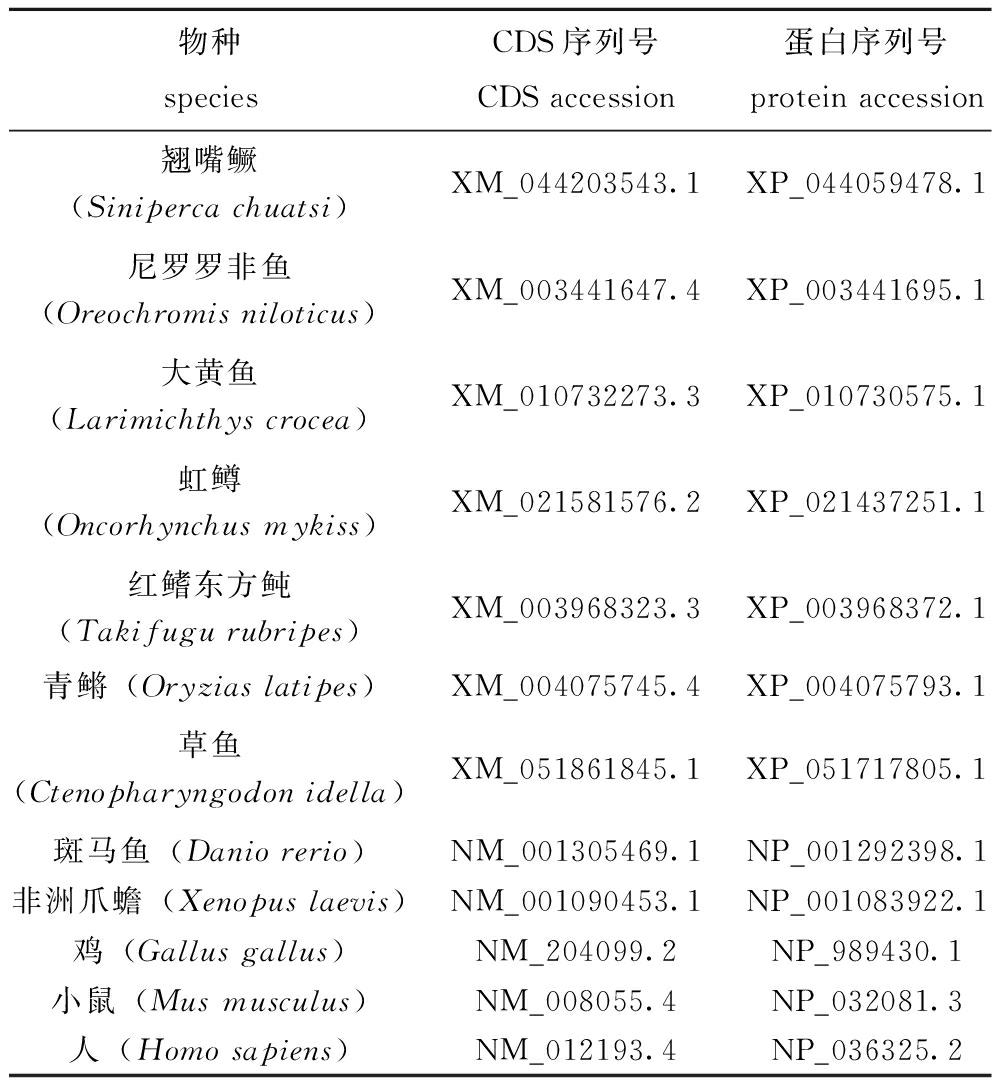
物种speciesCDS序列号CDS accession蛋白序列号protein accession翘嘴鳜(Siniperca chuatsi)XM_044203543.1XP_044059478.1尼罗罗非鱼(Oreochromis niloticus)XM_003441647.4XP_003441695.1大黄鱼(Larimichthys crocea)XM_010732273.3XP_010730575.1虹鳟(Oncorhynchus mykiss)XM_021581576.2XP_021437251.1红鳍东方鲀(Takifugu rubripes)XM_003968323.3XP_003968372.1青鳉(Oryzias latipes)XM_004075745.4XP_004075793.1草鱼(Ctenopharyngodon idella)XM_051861845.1XP_051717805.1斑马鱼(Danio rerio)NM_001305469.1NP_001292398.1非洲爪蟾(Xenopus laevis)NM_001090453.1NP_001083922.1鸡(Gallus gallus)NM_204099.2NP_989430.1小鼠(Mus musculus)NM_008055.4NP_032081.3人(Homo sapiens)NM_012193.4NP_036325.2
1.2.2 跨物种保守性及互作网络预测 为了比较FZD4蛋白的保守性,采用MEGA 11.0软件[24]进行序列比对并基于邻接法构建系统进化树,并利用MEME和SMART在线工具预测FZD4蛋白的保守基序(Motif)和结构域[25];采用AlphaFold 3预测翘嘴鳜FZD4蛋白三级结构并利用PyMOL软件[26]进行同源蛋白结构比对;利用STRING数据库[27]构建蛋白互作网络(PPI)。
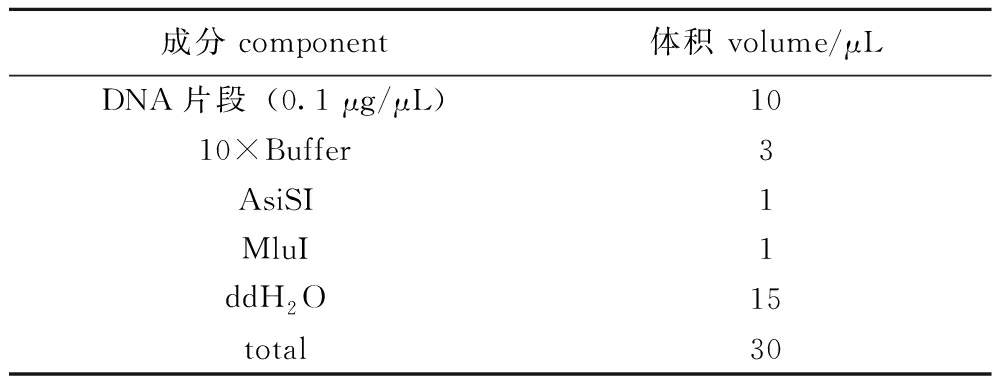
1.2.3 fzd4基因过表达载体构建 将fzd4基因片段进行酶切,酶切体系见表2,加样混匀后置于37 ℃酶切1 h,反应结束后用10 g/L琼脂糖凝胶电泳检测酶切目的条带大小,并用胶回收试剂盒回收目的片段。
表2 酶切反应体系
Tab.2 Enzyme digestion reaction system
成分 component体积 volume/μLDNA片段(0.1 μg/μL)1010×Buffer3AsiSI1MluI1ddH2O15total30
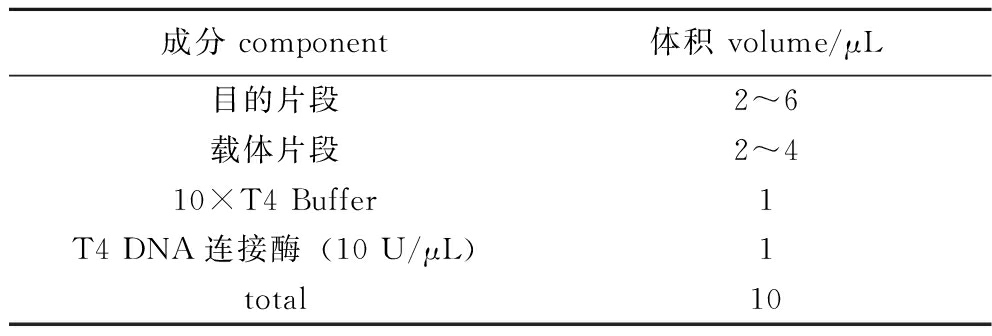
空载体pLent-EF1a-FH-CMV-copGFP-P2A-Puro做同样的酶切,然后用胶回收载体。将回收的目的基因片段与经过同样双酶切的载体连接,连接体系见表3,混匀后微离心,22 ℃下连接2 h。
表3 反应体系
Tab.3 Reaction system
成分 component体积 volume/μL目的片段2~6载体片段2~410×T4 Buffer1T4 DNA连接酶(10 U/μL)1total10
连接产物转化大肠杆菌DH5α感受态细胞,涂布于相应抗性的LB平板上进行筛选;之后酶切验证,挑取单菌落培养后提取质粒进行酶切鉴定阳性克隆,测序验证,5′端测序引物:GAAGTTAGGCCAGCTTGGCACTTG,3′端测序引物:CCAAGTGGGCAGTTTA。
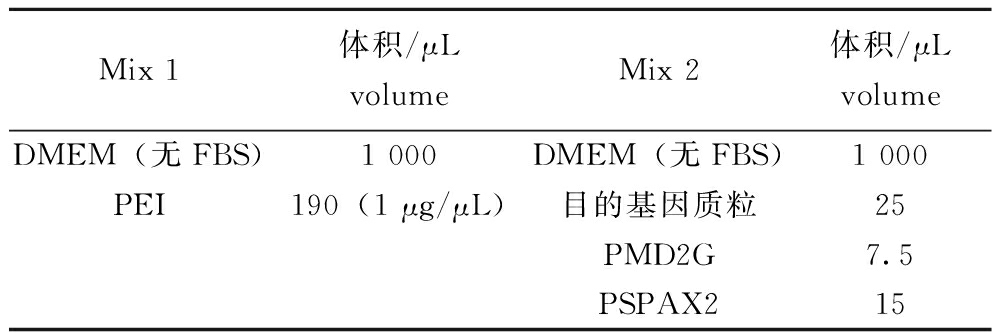
1.2.4 过表达载体慢病毒包装 在10 cm细胞培养板上,将聚合度90%的HEK293T(每盘约6×10⁷)细胞按1∶1比例传盘至15 cm细胞培养板,第2天细胞聚合度达到90%~95%(每盘约1.5×10⁸),培养基为Gibico高糖DMEM培养基(含10%FBS)。转染前不换液,配置转染试剂Mix 1和Mix 2分别混合后(表4),室温为5~10 min,后将Mix 1和Mix 2混合,室温为30 min,加入至15 cm细胞培养板中(细胞聚合度达到90%,细胞过少会影响转染效率)。4~6 h内更换新鲜培养基(含10%FBS),观察转染效率并拍照。72 h时观察细胞状态并拍照。收取上清培养基,过0.45 μm滤膜,上清培养基加入超速离心管中,配平后离心,4 ℃下以25 000 r/min离心1.5 h。弃上清,用1 mL病毒保存液回溶混匀溶解过夜,收集病毒分装。病毒感染细胞后,采用孔稀释检测方法进行滴度检测。
表4 转染试剂配置
Tab.4 Preparation of transfection reagent
Mix 1体积/μLvolumeMix 2体积/μLvolumeDMEM(无FBS)1 000DMEM(无FBS)1 000PEI190(1 μg/μL)目的基因质粒25PMD2G7.5PSPAX215
2 结果与分析
2.1 fzd4基因及其编码蛋白的序列特征分析
翘嘴鳜fzd4基因的开放阅读框(ORF)长度为1 602 bp,可编码533个氨基酸,有1个信号肽和7个跨膜螺旋结构(图1)。理化性质分析表明,翘嘴鳜FZD4蛋白的分子质量约为59 150,理论等电点(isoelectric point,pI)为6.80,偏酸性;不稳定系数为38.23,脂肪族指数为99.83,亲水性平均值(grand average of hydropathicity,GRAVY)为0.33,推测该蛋白为疏水性稳定蛋白;亚细胞定位显示,该蛋白定位于细胞膜上,说明其可能在膜上发挥作用;二级结构显示,该蛋白由41.84%的 α 螺旋、11.63%的延伸链、0.56%的β 转角和45.97%的无规卷曲构成;糖基化和磷酸化位点预测显示,该蛋白存在3个N-糖基化位点(N)和40个磷酸化位点,其中,丝氨酸(S)、苏氨酸(T)和酪氨酸(Y)磷酸化位点分别为23、13、4个,表明该蛋白可能受到复杂的翻译后调控。
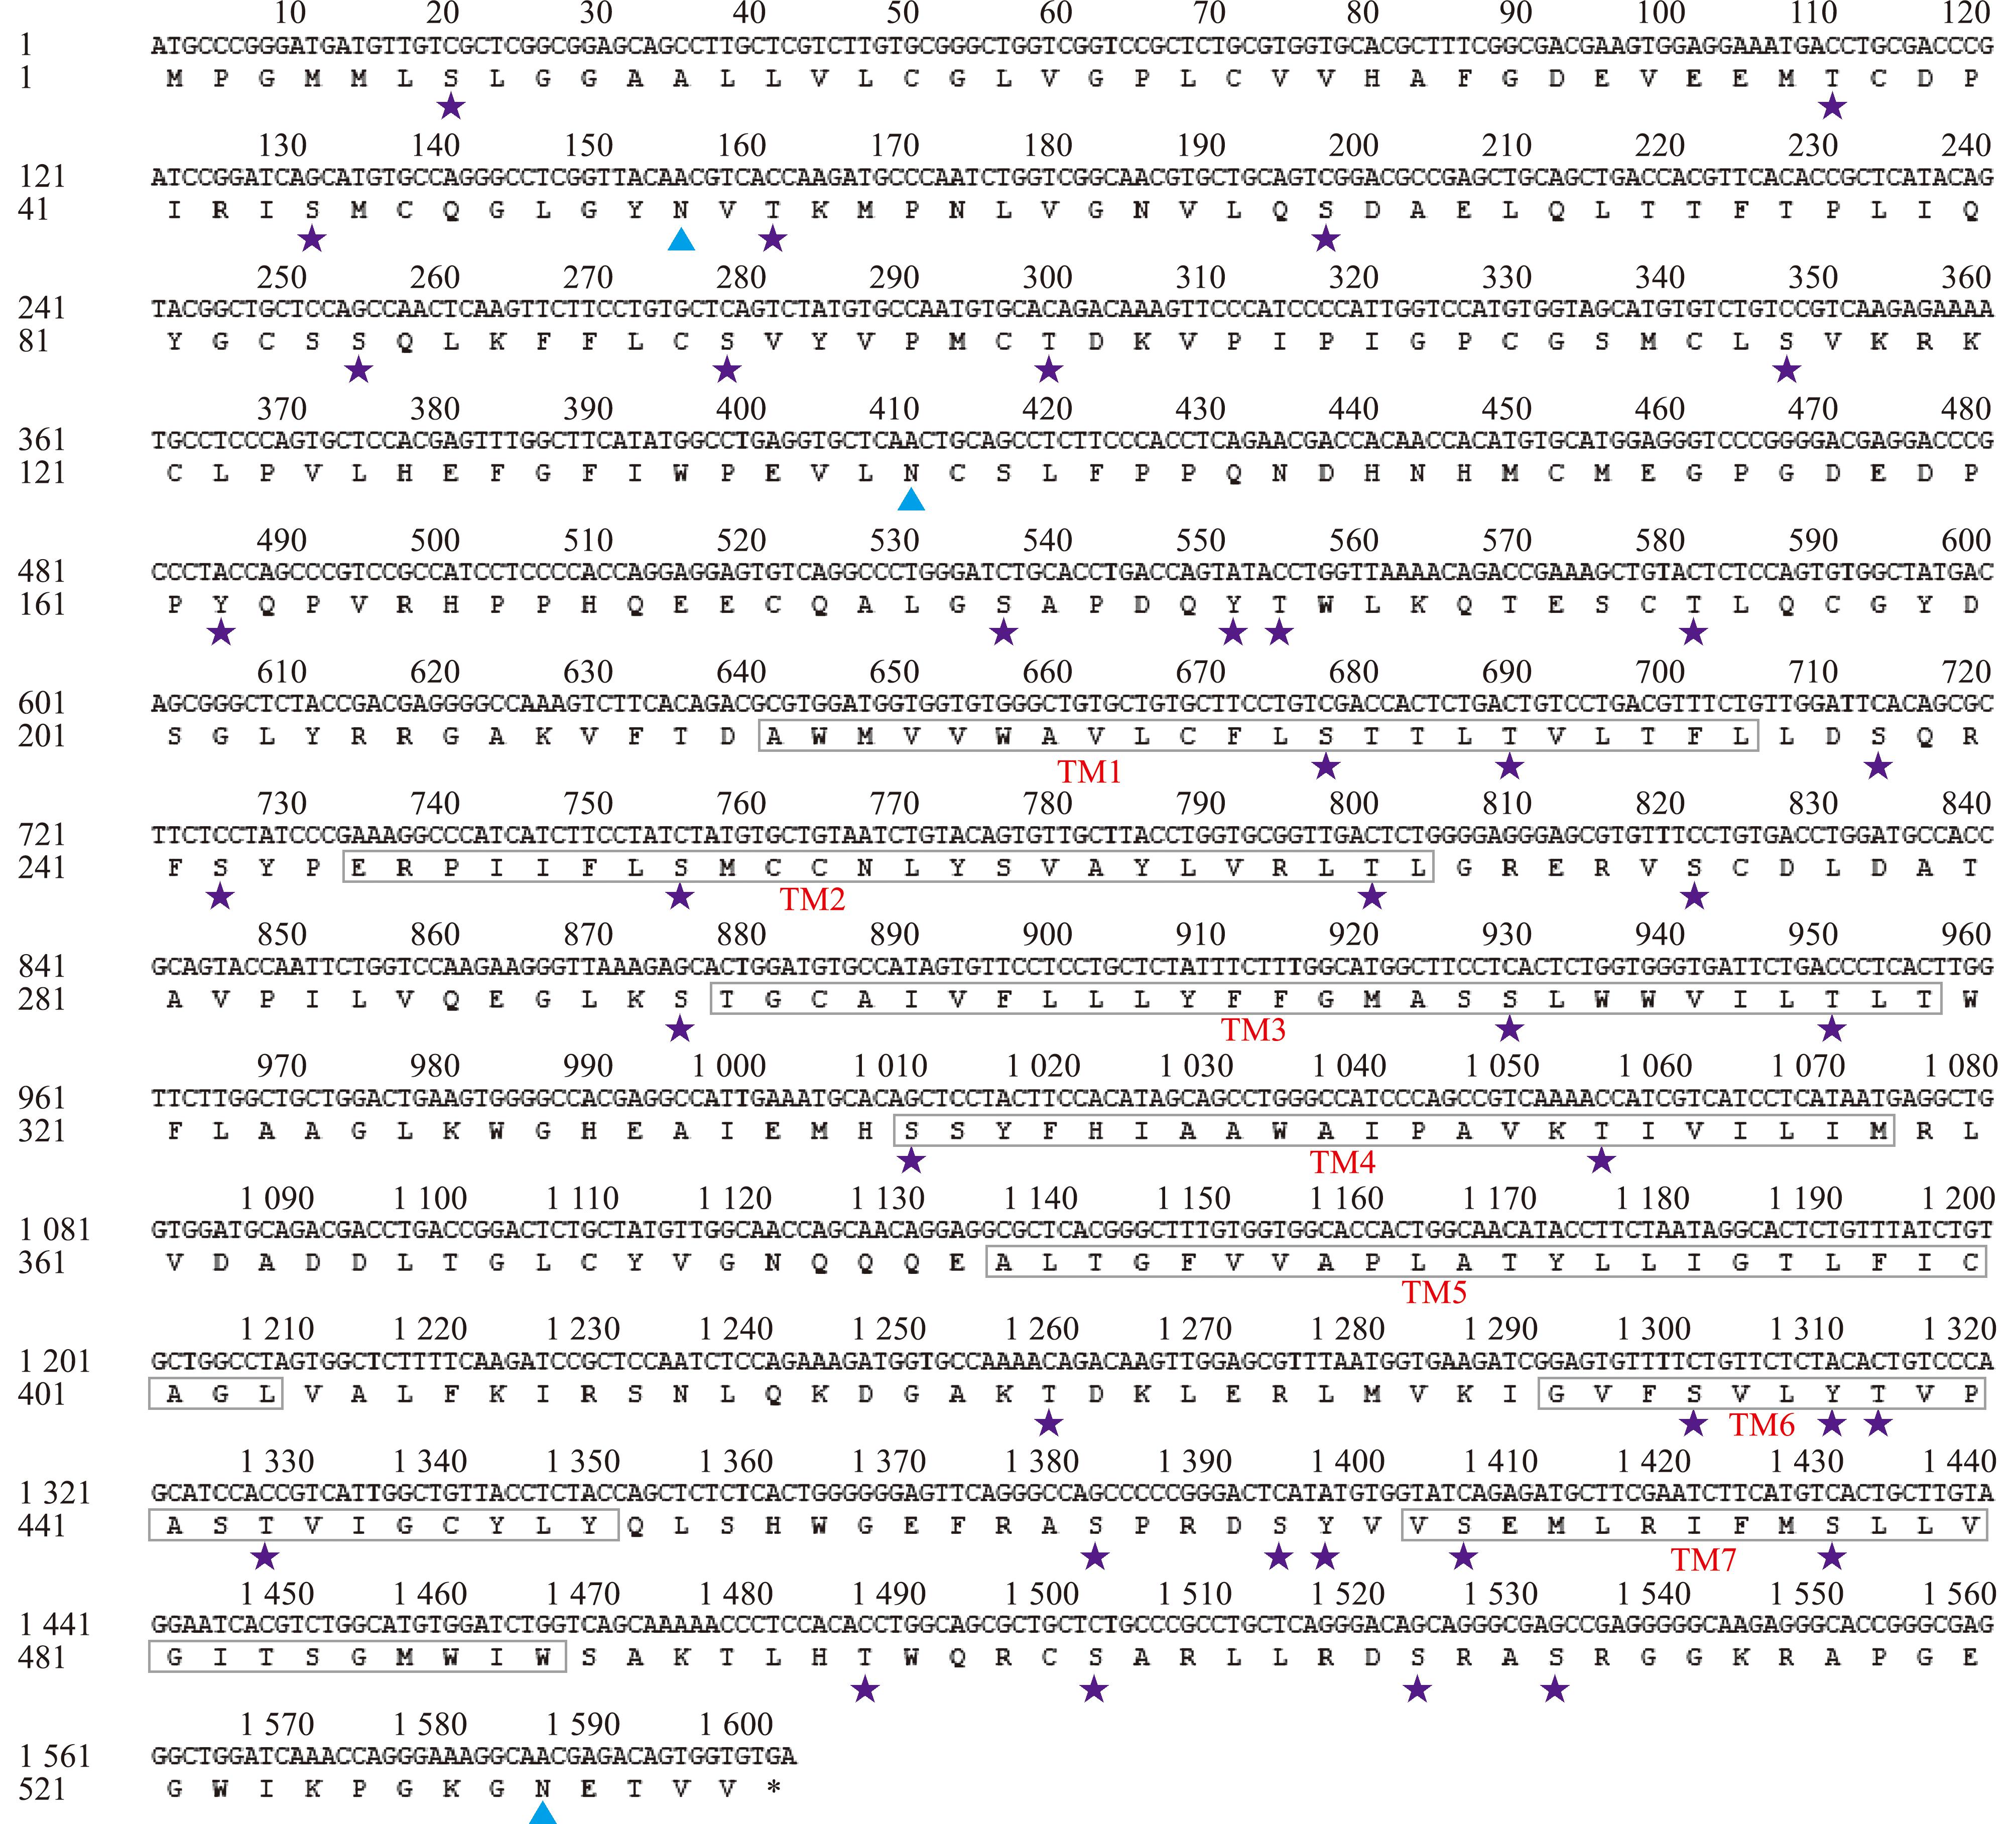
★表示磷酸化位点;▲表示N-糖基化位点;□表示跨膜结构域。
★means phosphorylation sites;▲means N-glycosylation sites;□means transmembrane domains.
图1 翘嘴鳜fzd4基因核苷酸序列及其编码的氨基酸序列
Fig.1 Nucleotide sequence of the fzd4 gene and its encoded amino acid sequence in Siniperca chuatsi
将翘嘴鳜、斑马鱼和人等物种的fzd4基因结构进行比较,发现这几个物种的内含子数量为1~5,外显子数量为2~6,基因结构存在显著性差异,值得注意的是,鲤科鱼类与四足动物具有相同的内含子和外显子数量,提示它们可能具有相似的进化起源(图2)。基于SMART数据库对这些外显子编码的氨基酸序列进行结构域预测,结果展示首个外显子编码信号肽和CRD(FRI)结构域N端,而后续外显子共同编码CRD结构域C端及完整的7次跨膜(frizzled)结构域,呈现了保守的外显子-结构域模块化组织模式。
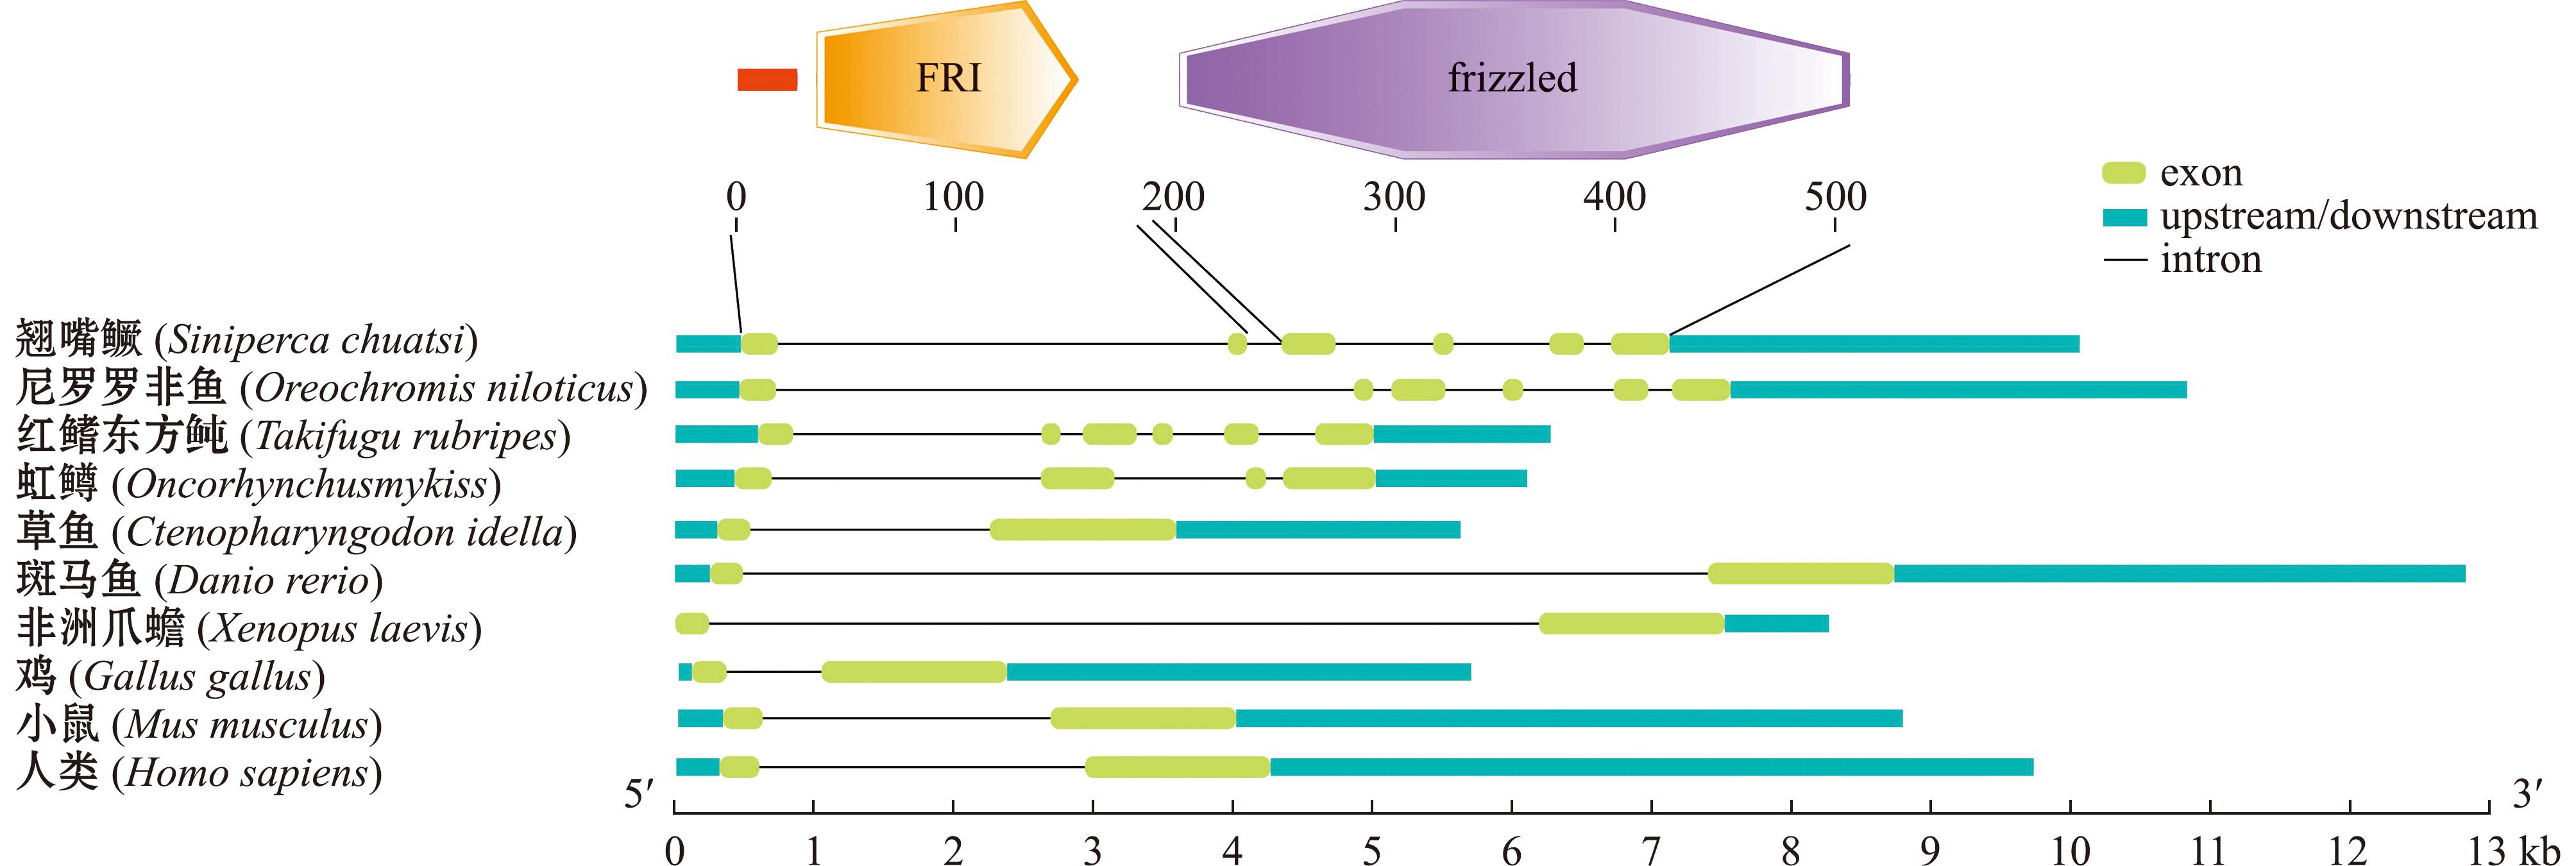
图2 脊椎动物fzd4的结构域和基因结构
Fig.2 Domain and gene structure of fzd4 in vertebrates
2.2 fzd4的跨物种保守性及蛋白互作分析
利用MEGA11软件构建翘嘴鳜与其他11个脊椎动物FZD4蛋白的系统进化树,结果显示,翘嘴鳜与同为鲈形目的大黄鱼和尼罗罗非鱼聚为一个分支,而鲤科鱼类的斑马鱼和草鱼与四足动物聚为一支,这与基因结构的结果相似。使用MEME和SMART数据库对这些物种的保守基序和结构域进行预测,发现Motif 2、3、10和12组成CRD结构域,Motif 1、4、5、6、7和8共同形成了7次跨膜结构,这些基序在这12个物种中高度保守,而位于序列N端的信号肽在鲈形目物种中展现出了特有的基序(Motif 15)(图3)。
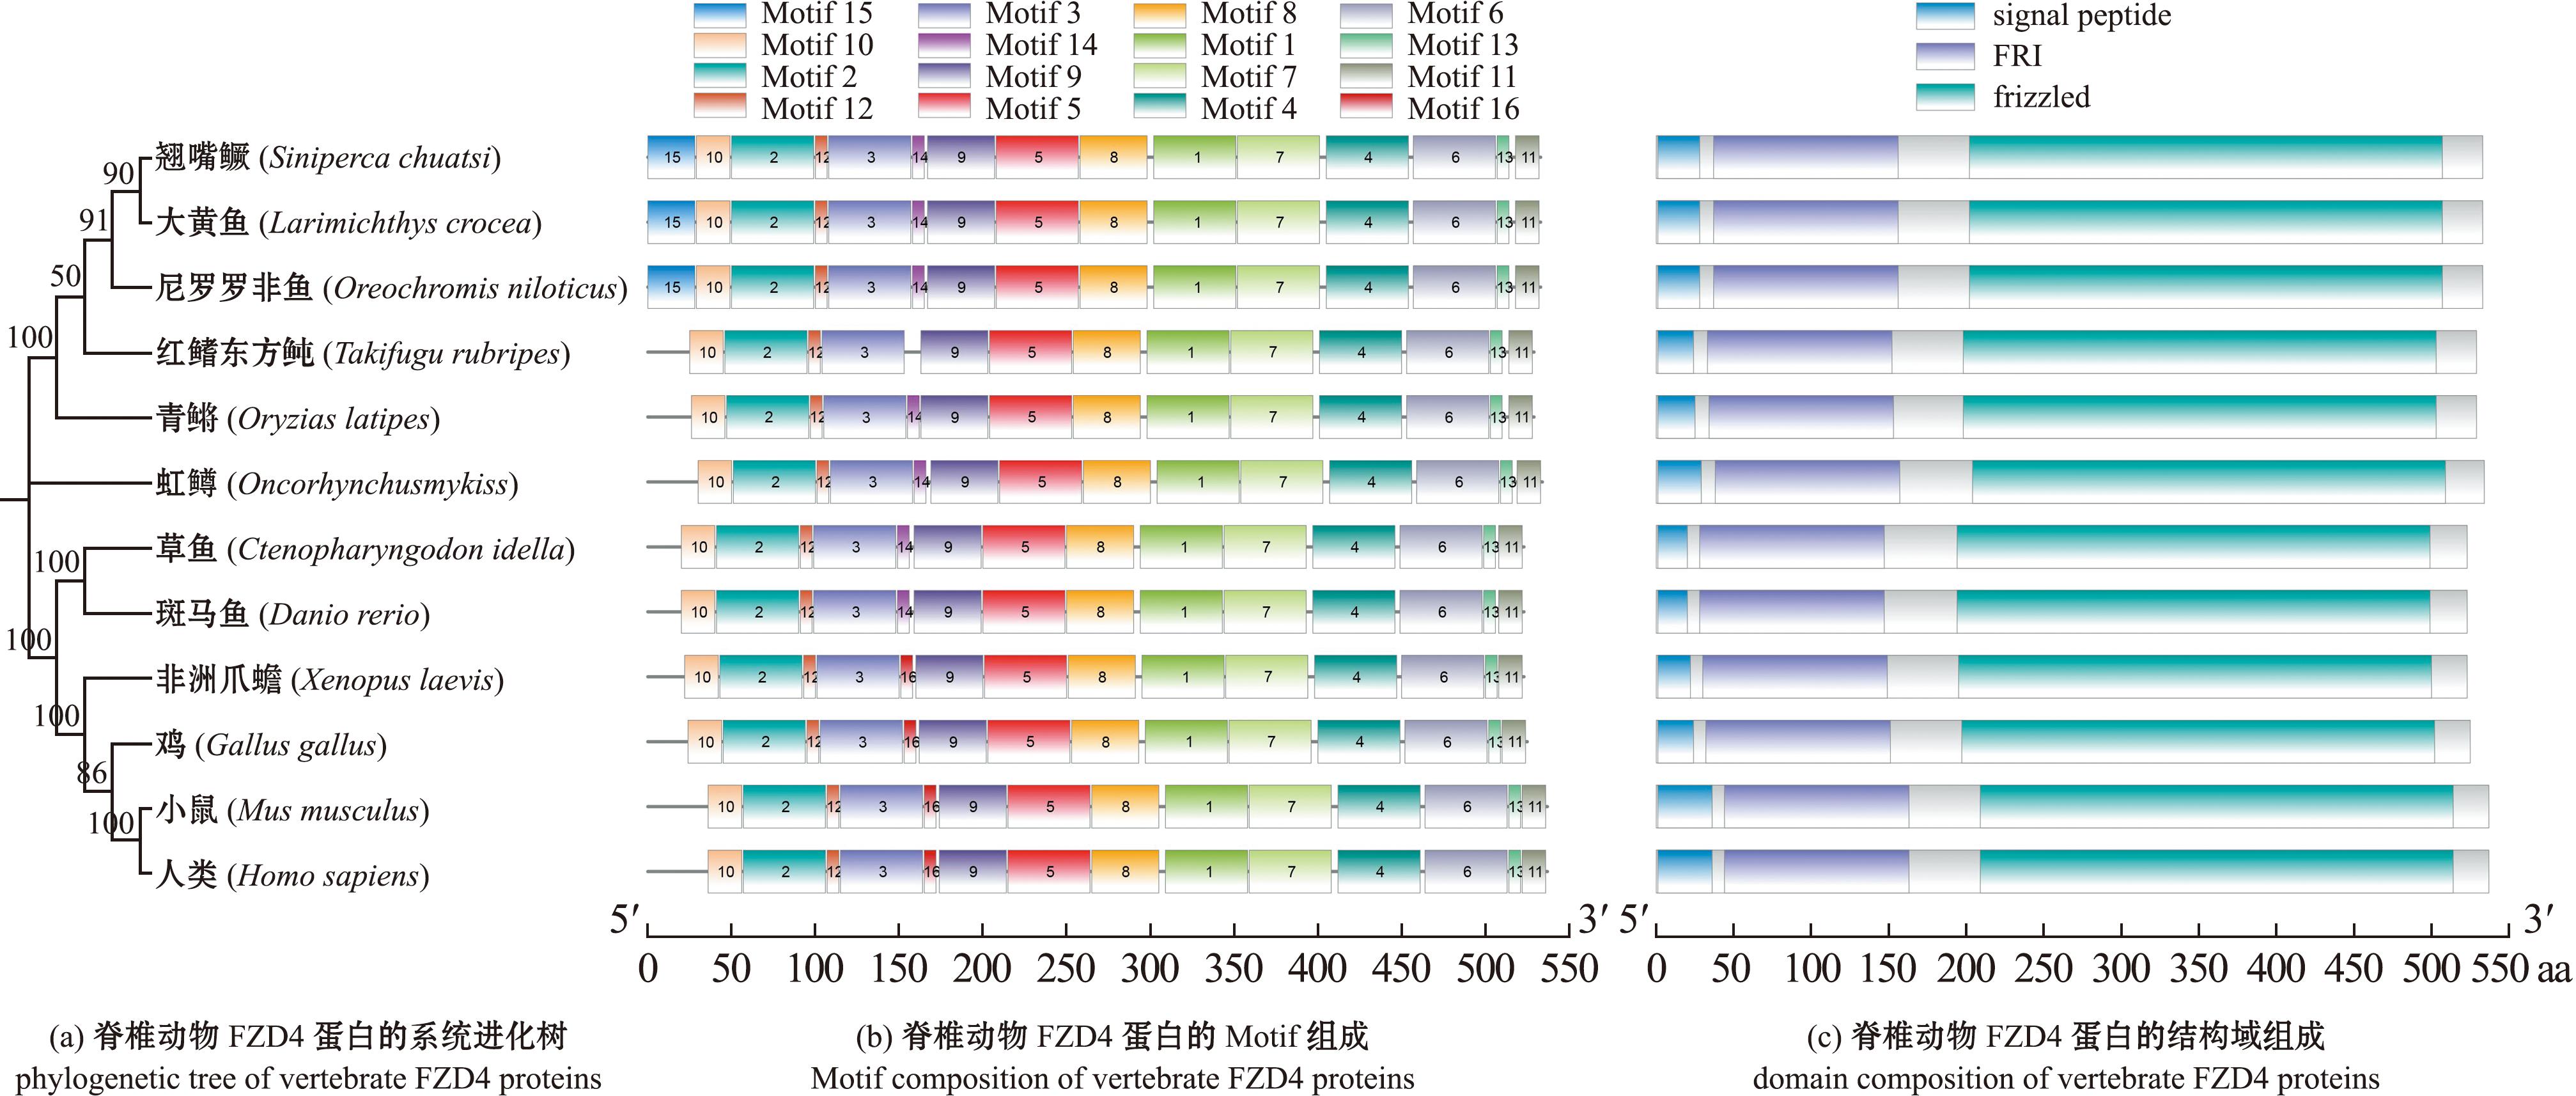
图3 脊椎动物FZD4蛋白的系统发育关系和保守基序
Fig.3 Phylogenetic relationships and conserved motifs of FZD4 proteins in vertebrates
多序列比对分析揭示,翘嘴鳜FZD4蛋白序列与鱼类、非洲爪蟾和人等11个物种的序列具有显著的同源性,在DNAMAN的序列比对中整体序列一致性大于80%,与此同时,潜在的N-糖基化位点基序YN-X-T、Dvl-PDZ结合基序KT-XXX-W和T-X-V在这些物种中展现出了高度的序列一致性(图4)。为了进一步探究结构同源性,利用PyMOL软件对预测的翘嘴鳜、斑马鱼和人的FZD4蛋白三级结构进行结构同源比对,结果显示,翘嘴鳜与斑马鱼结构的均方根偏差(RMSD)为1.139<3,与人类的RMSD为14.610>3,表明翘嘴鳜与斑马鱼的结构构象相似,而与人类的构象差异较大,并且它们之间在CRD结构域上具有较低的构象重叠(图5)。
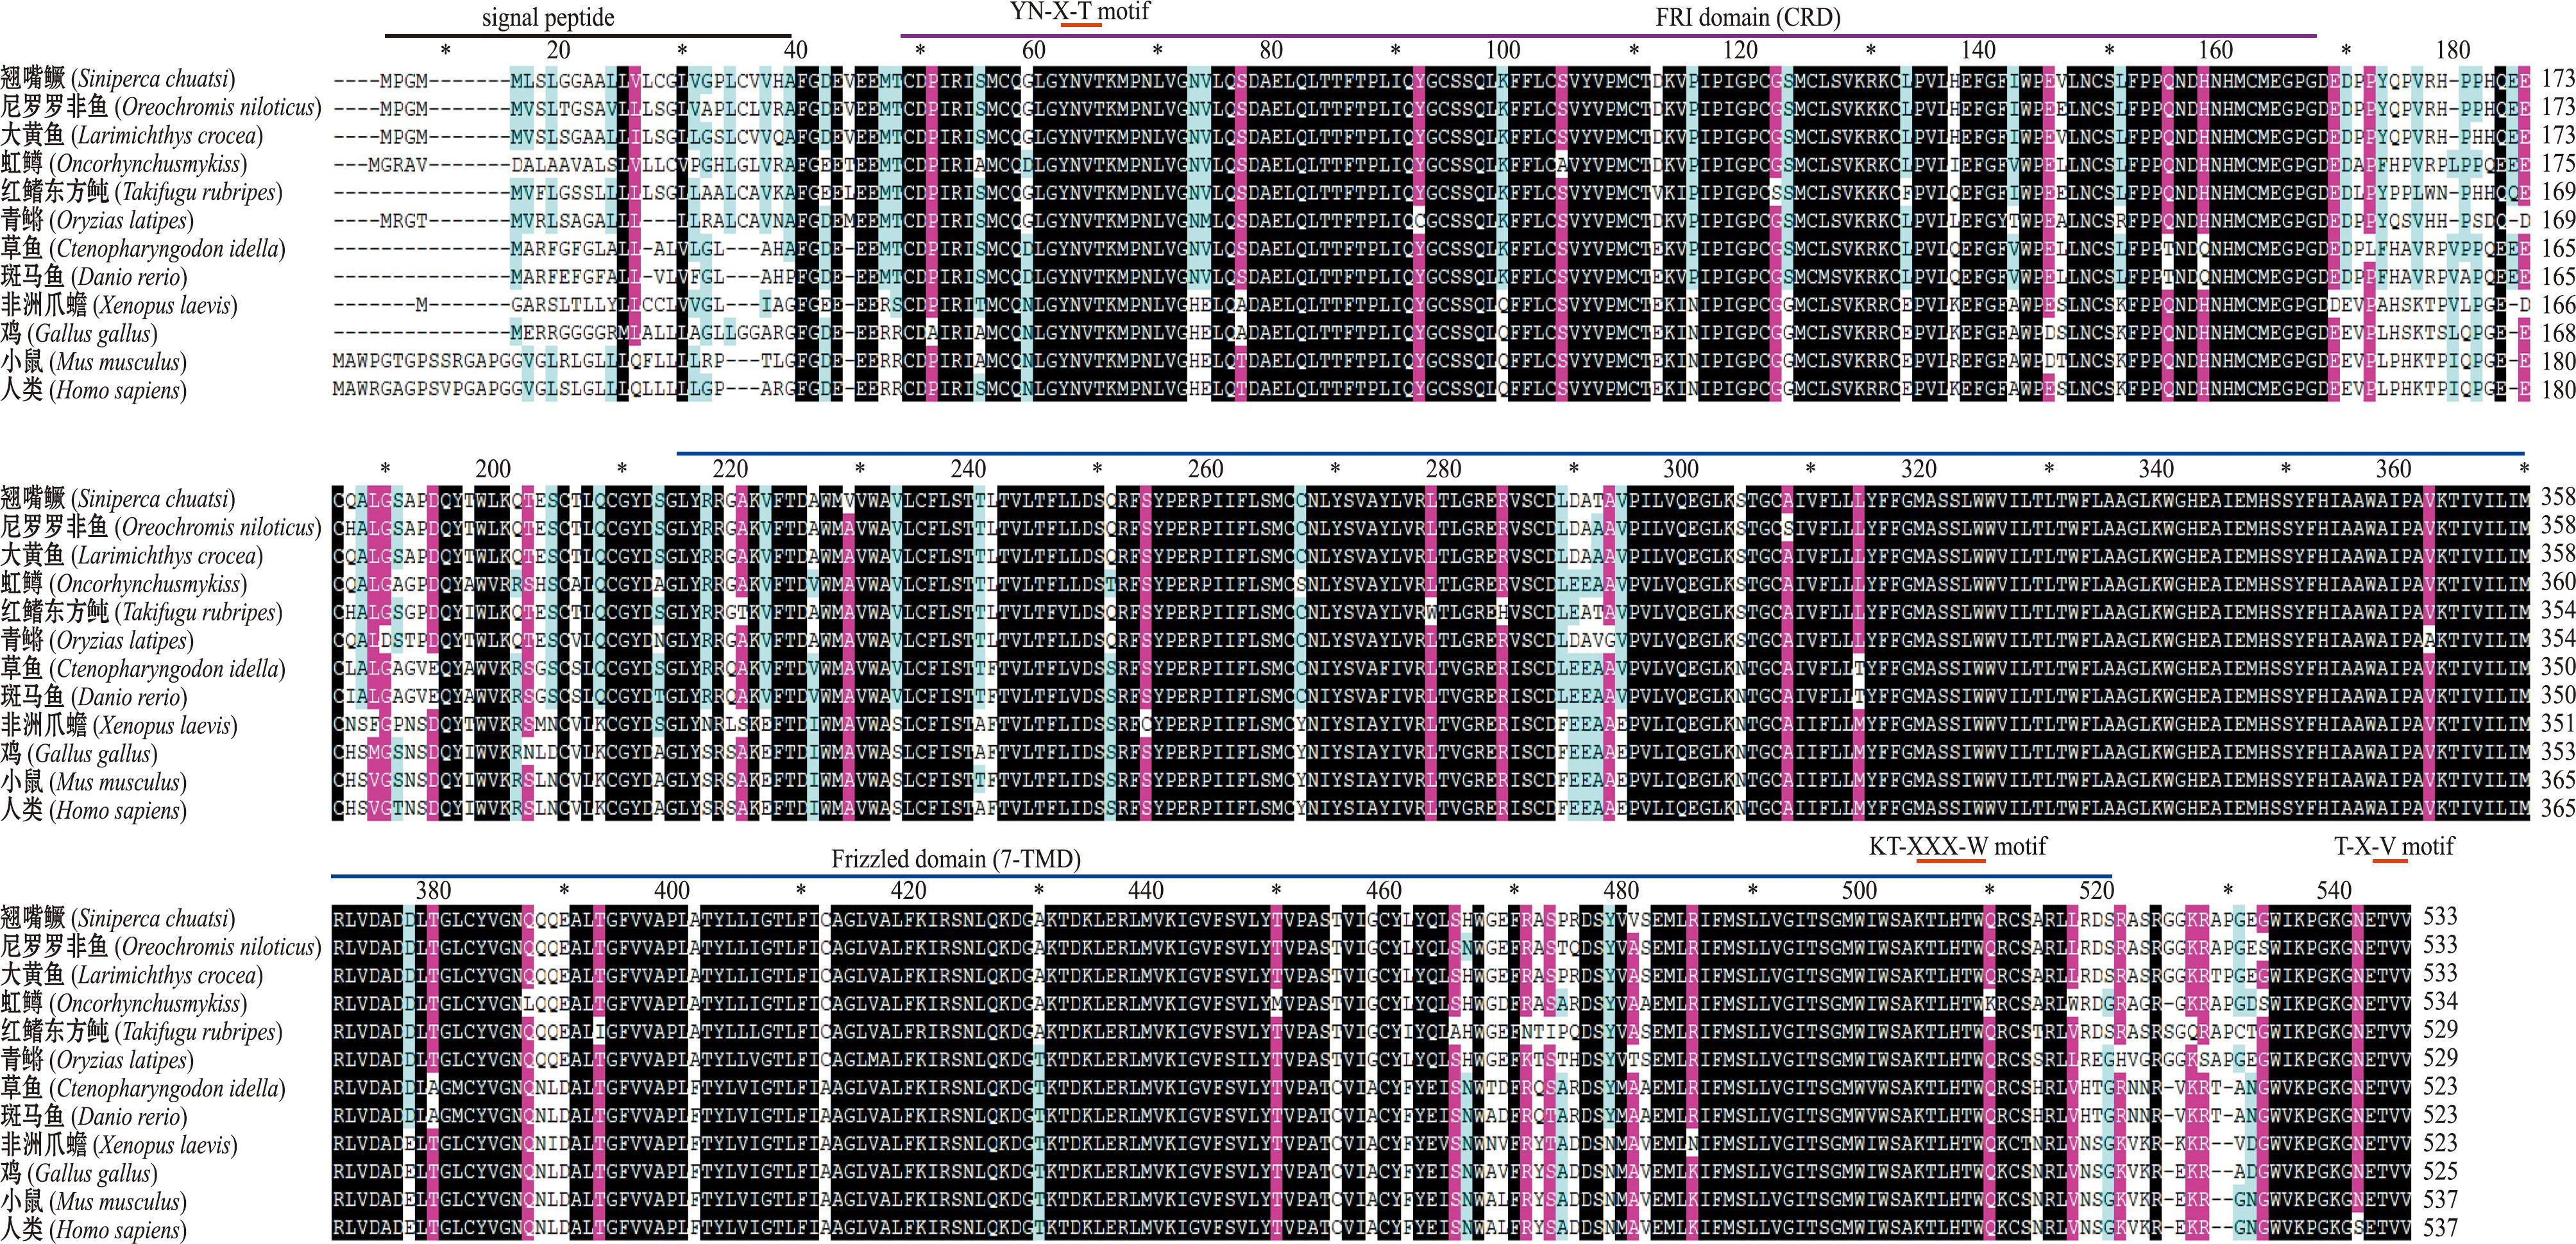
图4 脊椎动物FZD4蛋白的多序列比对
Fig.4 Multiple sequence alignment of FZD4 proteins in vertebrates
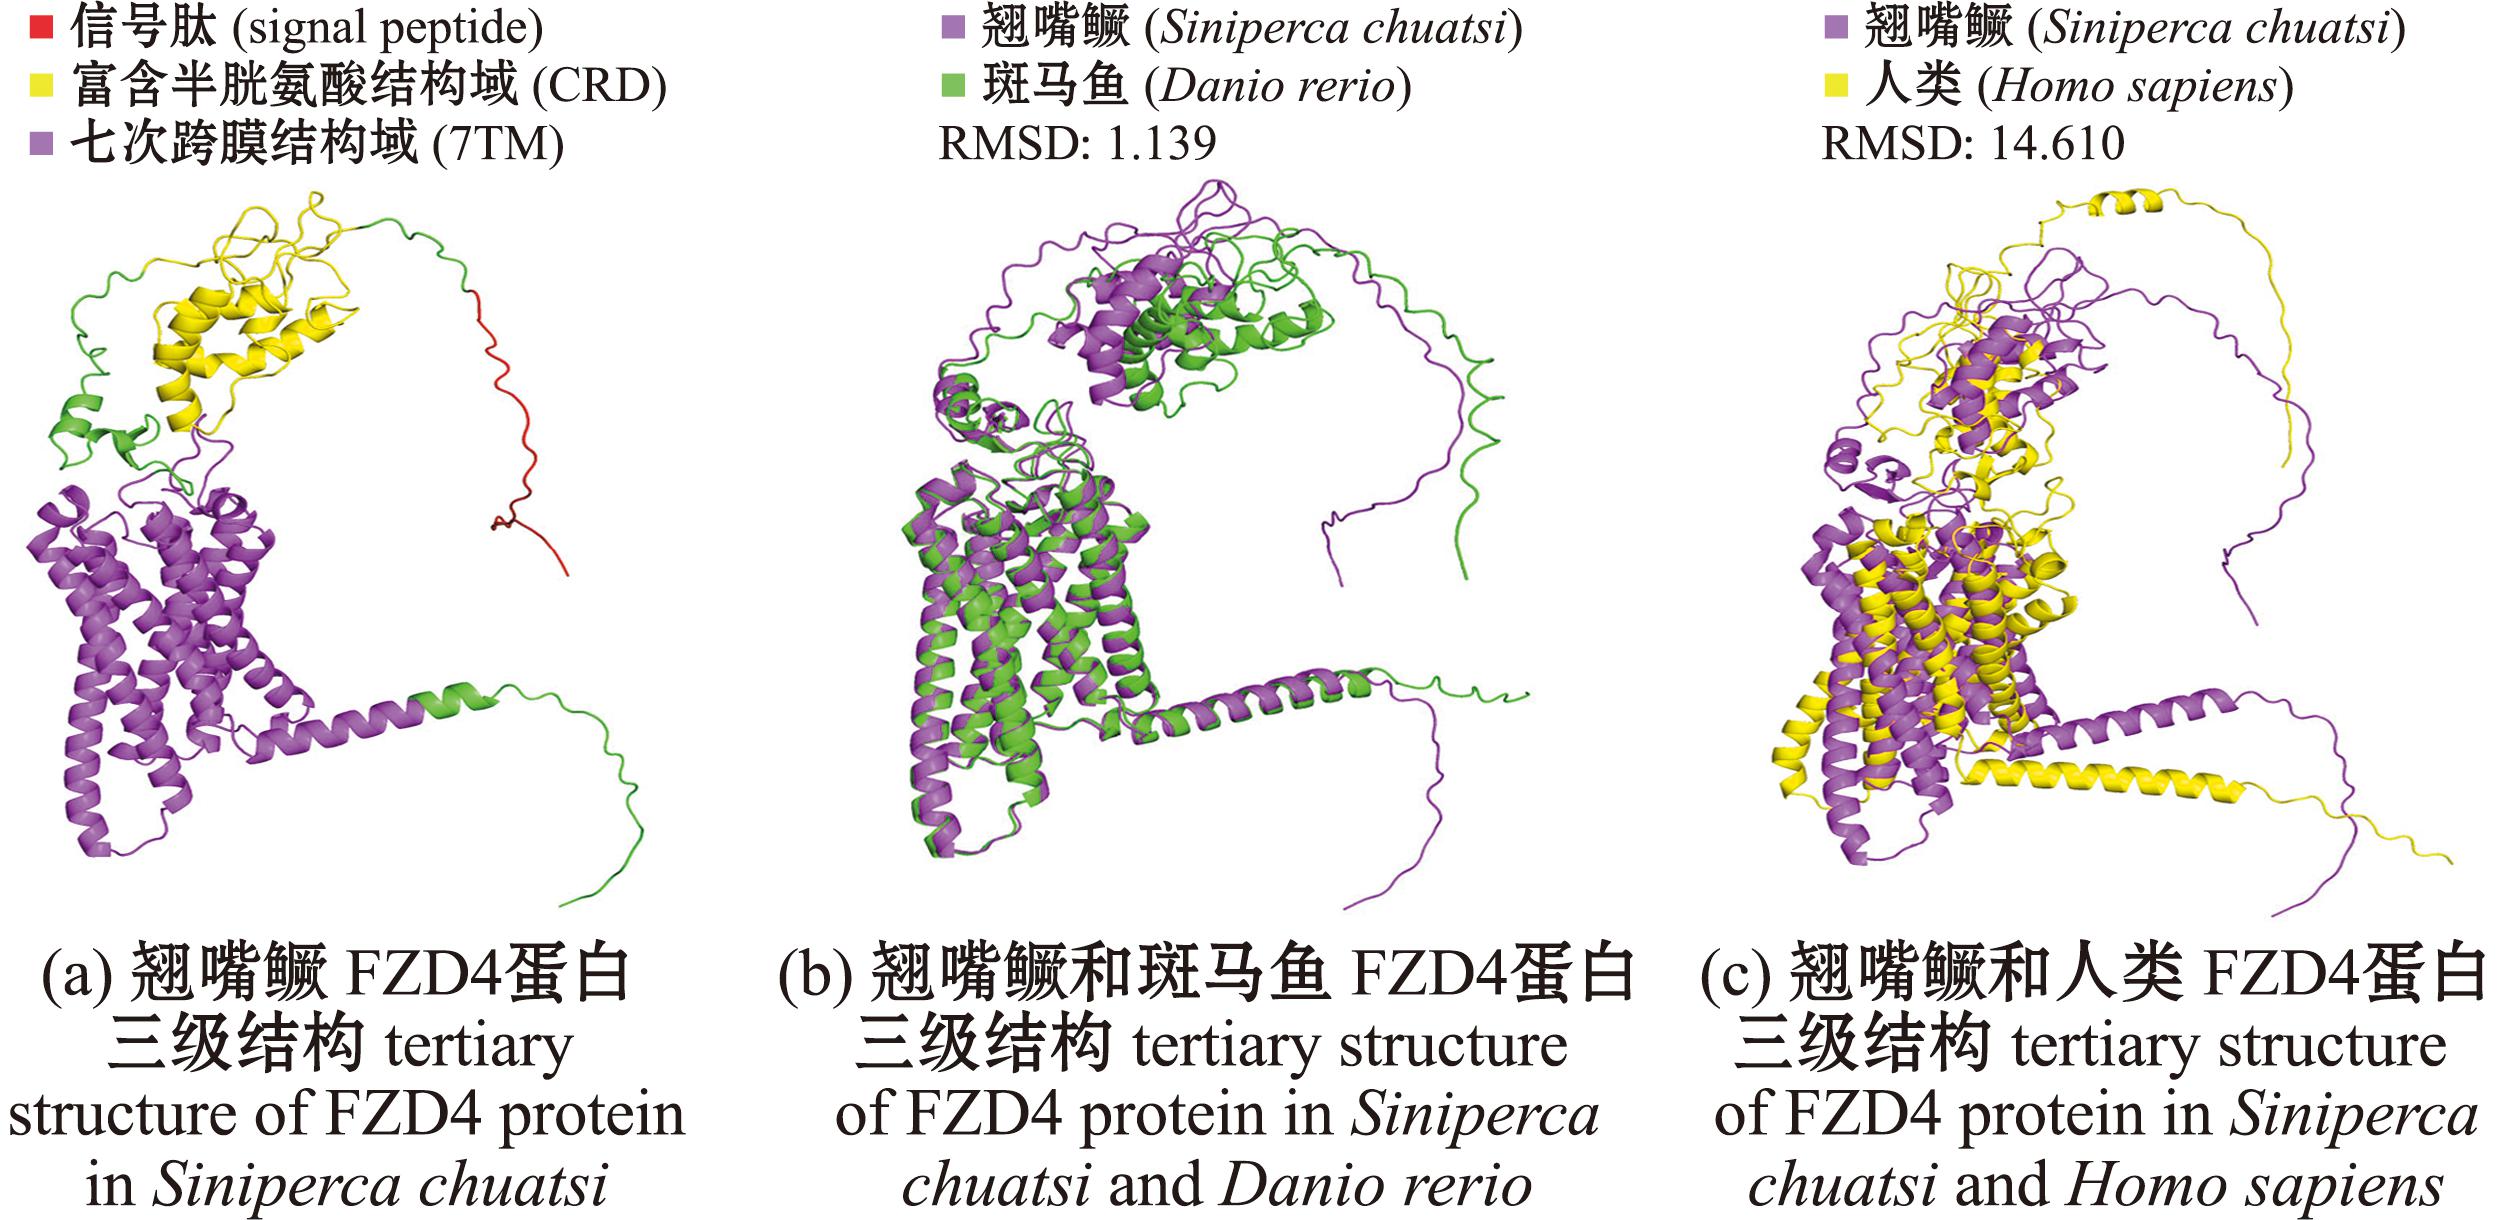
图5 翘嘴鳜、斑马鱼和人类FZD4蛋白三级结构同源比对
Fig.5 Structural comparison of FZD4 tertiary structures in Siniperca chuatsi,Danio rerio and Homo sapiens
为了解翘嘴鳜FZD4蛋白的互作情况,使用STRING绘制PPI网络(图6)。蛋白FZD4主要与低密度脂蛋白受体相关蛋白5(LRP5)、LRP6、无翅型MMTV整合位点家族成员5a(WNT5A)、WNT5B、WNT11、激活素膜结合抑制因子(BAMBI)和锌指环指蛋白3(ZNRF3)等相互作用,可能参与调控胚胎发育、细胞迁移和极性、脂质代谢、炎症反应及细胞增殖和分化等生物过程。
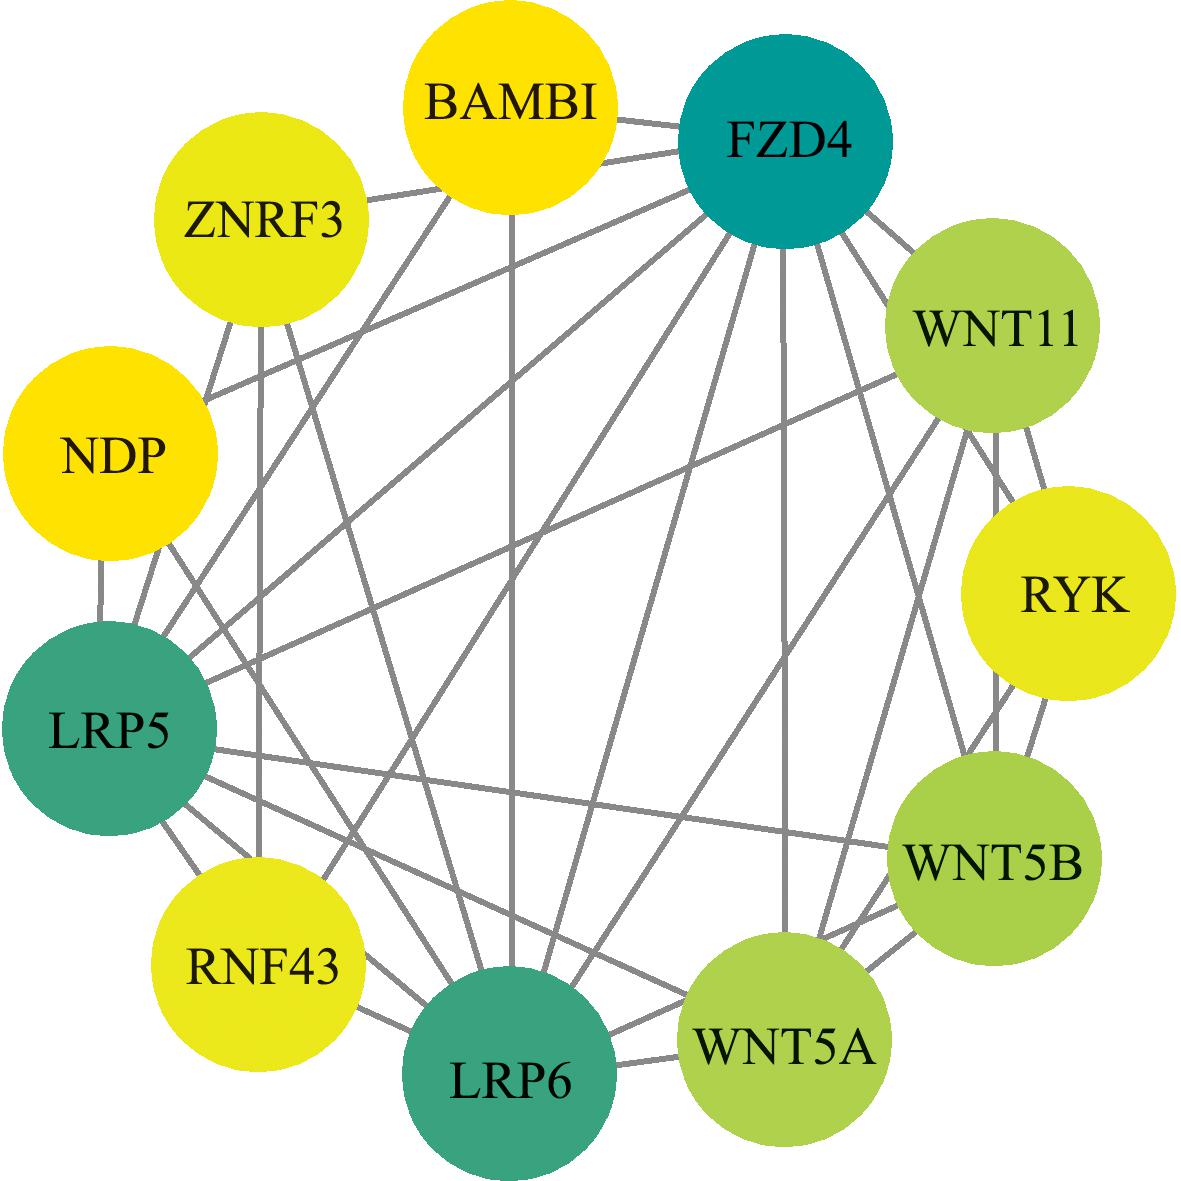
图6 翘嘴鳜FZD4蛋白相互作用网络
Fig.6 Protein-protein interaction network of FZD4 in Siniperca chuatsi
2.3 慢病毒过表达载体构建及验证
将筛选得到的阳性克隆菌落进行测序分析,所得序列与NCBI数据库中fzd4基因序列比对结果显示完全一致(图7),证实目的基因序列已准确地插入pLent-EF1a-FH-CMV-copGFP-P2A-Puro载体。
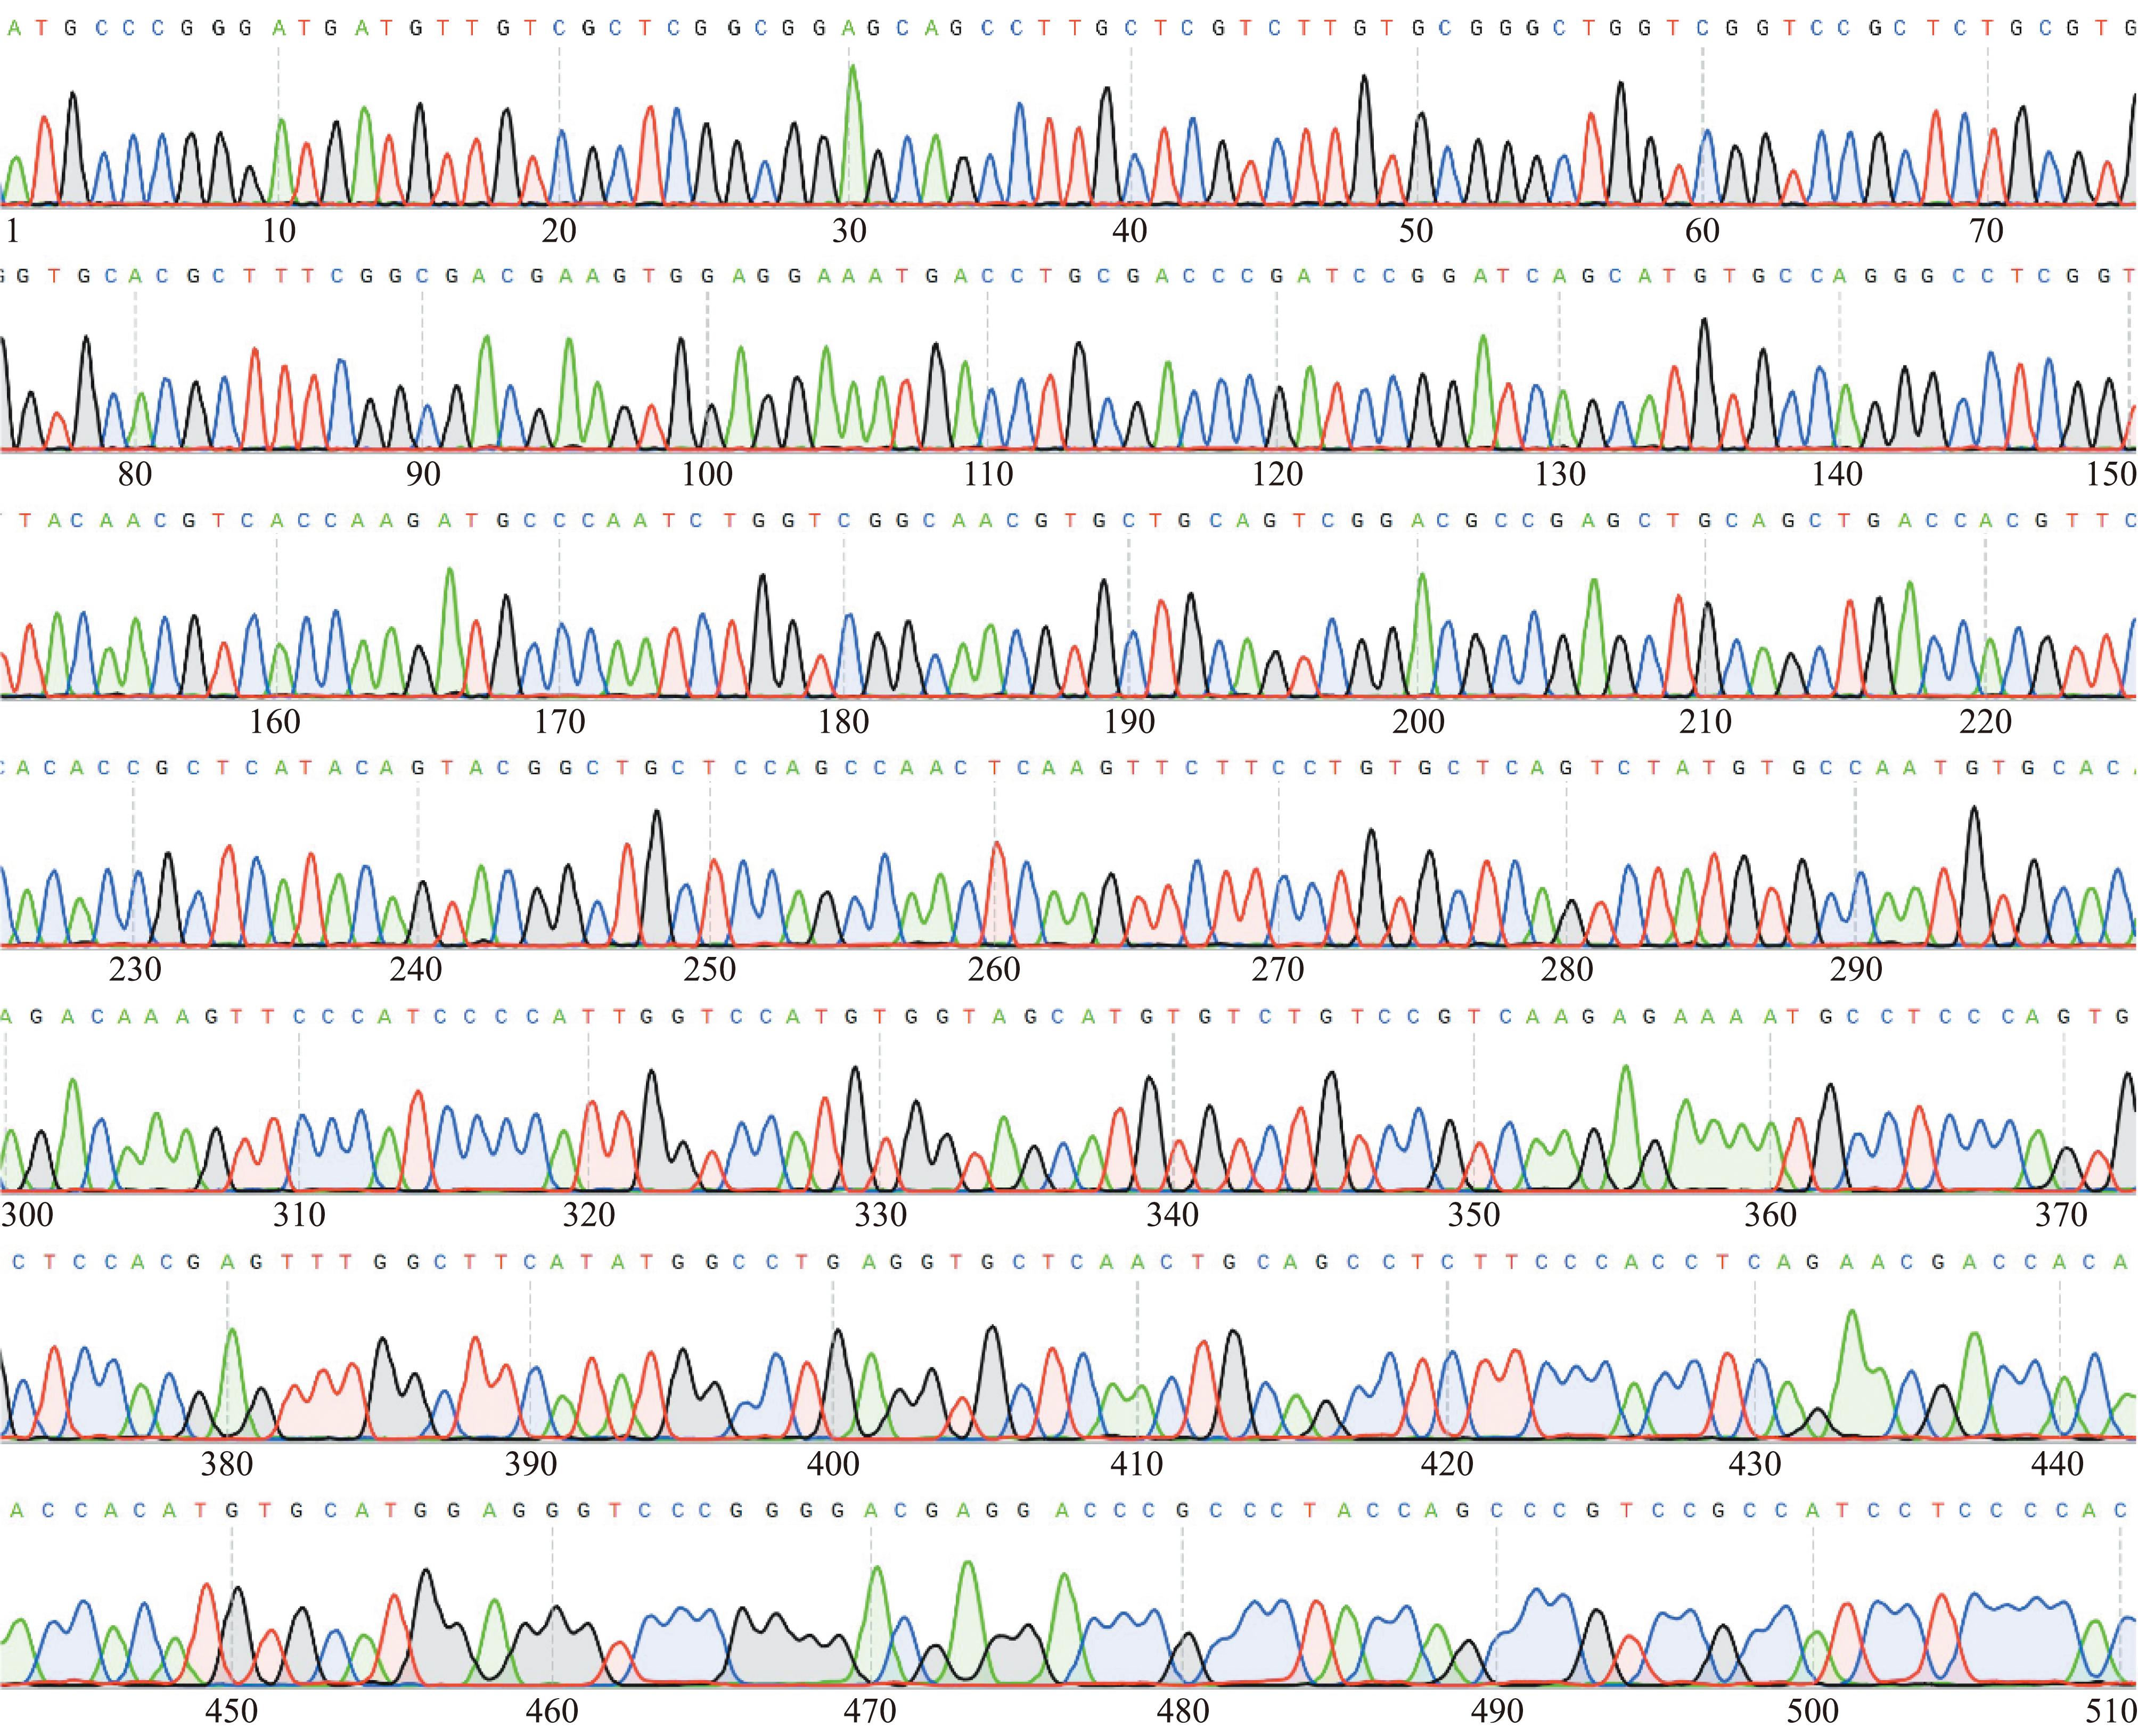
图7 翘嘴鳜fzd4测序结果
Fig.7 Sequencing result of fzd4 in Siniperca chuatsi
进一步采用HEK293T细胞进行翘嘴鳜fzd4基因过表达慢病毒包装,通过慢病毒感染细胞孔稀释法测定病毒滴度,将翘嘴鳜fzd4基因过表达慢病毒进行10倍梯度稀释(100~10-5),感染96孔板中的HEK293T细胞,每个稀释梯度设置两个重复孔。感染72 h后,观察到较强的绿色荧光,提示fzd4慢病毒载体质粒已经成功转入293T细胞中,且目的质粒转染效率较高(图8)。使用梯度稀释法对阳性细胞进行计数,可观察到在分别加入10-4 、10-5 μL病毒原液的孔中分别出现3、2个带绿色荧光的细胞,可见荧光细胞数随相应稀释倍数的增加而逐渐减少,按照相应的公式计算,最终测得翘嘴鳜fzd4基因过表达慢病毒的滴度为2.0×10⁸ TU/mL(图9)。
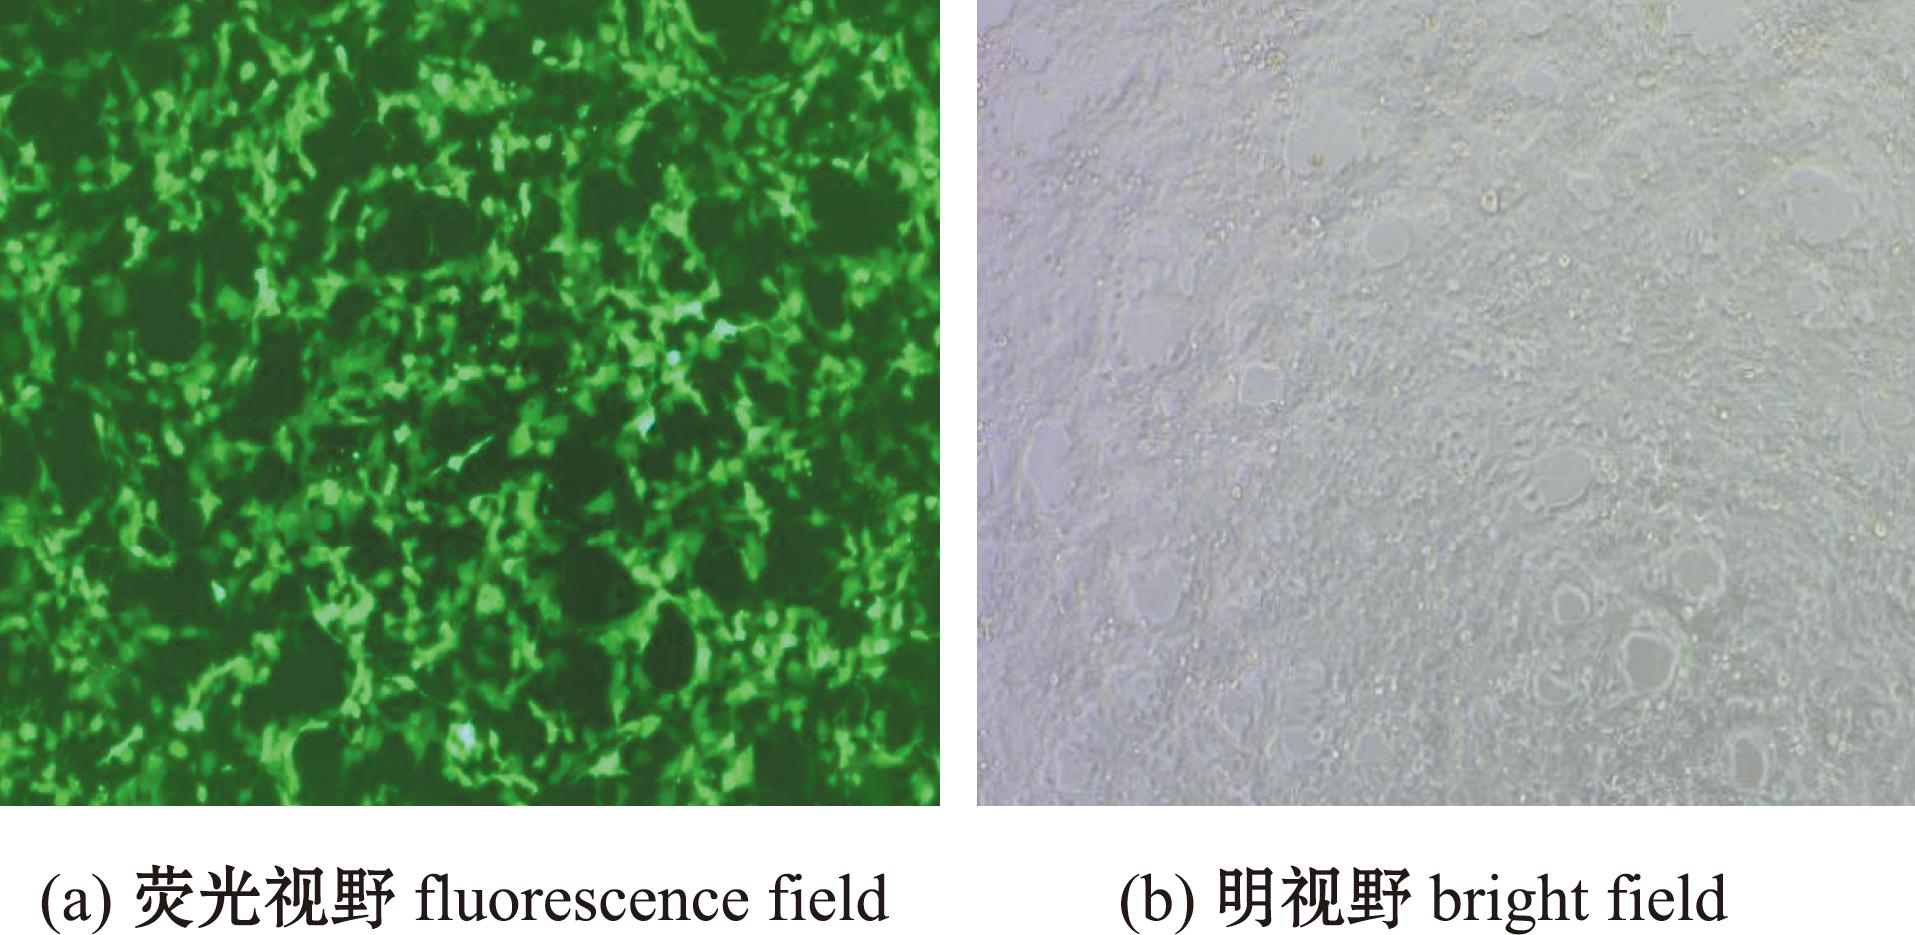
图8 翘嘴鳜fzd4慢病毒载体感染HEK293T细胞后的荧光图
Fig.8 Fluorescence image of HEK293T cells after infection with the fzd4 lentiviral vector in Siniperca chuatsi
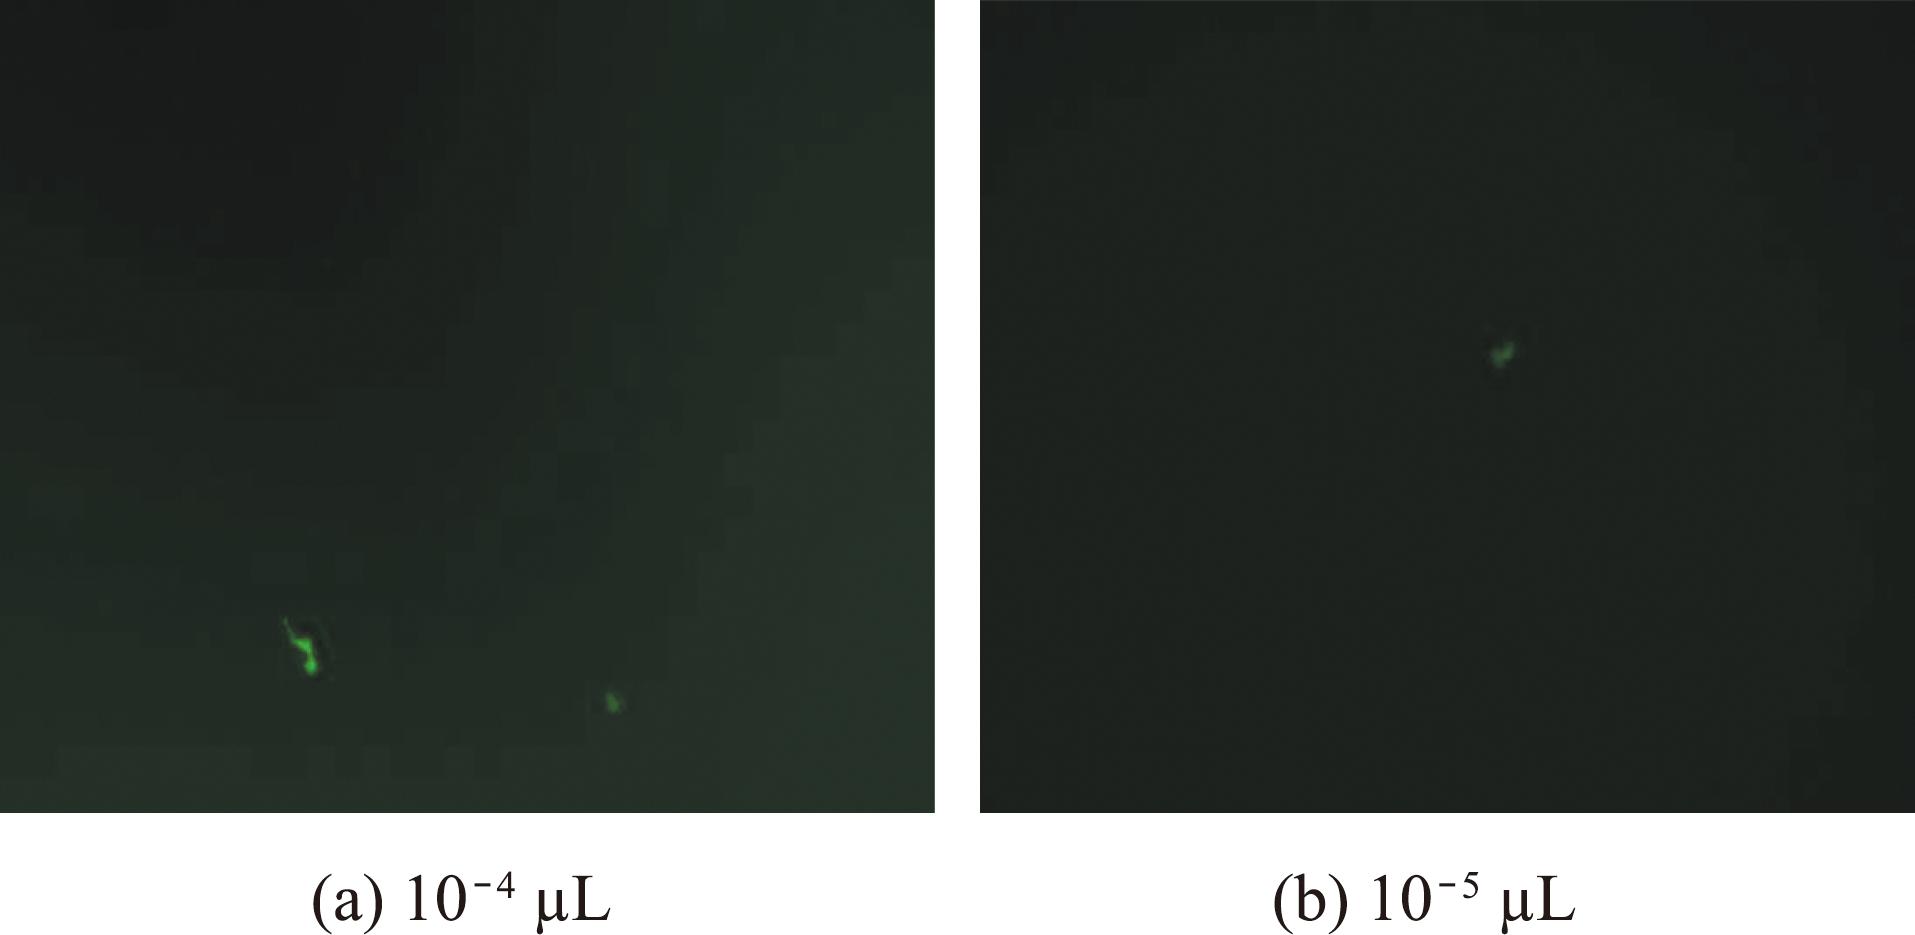
图9 翘嘴鳜fzd4基因慢病毒滴度测定
Fig.9 Determination of the lentiviral titer of fzd4 in Siniperca chuatsi
3 讨论
3.1 翘嘴鳜fzd4基因的分子特征及进化分析
FZD蛋白家族是Wnt信号通路的关键受体[28],在控制细胞极性与增殖分化上具有重要的作用[29],而fzd4由于其独特的功能特性而备受关注。本研究中对翘嘴鳜fzd4进行了生物信息学分析,发现fzd4的蛋白结构高度保守,从N端到C端依次为信号肽、CRD(FRI)配体结合域、7次跨膜结构域,以及含PDZ结合基序的C端末尾,这也是FZD家族中最为保守的部分[30]。更为关键的是,潜在的N-糖基化位点基序和Dishevelled(DVL)的PDZ结构域的识别和结合基序在这些物种中展现出高度的序列一致性,它们是 Wnt 信号通路中信号传递的重要结构基础[31]。这进一步印证了翘嘴鳜FZD4蛋白在相关信号通路和生理过程中的核心作用具有进化上的保守性,也说明以上这些基序所介导的基本功能从低等鱼类到高等哺乳动物可能并未发生根本性改变,这也是物种进化过程中保留下来的关键功能模块。
相比较在其他结构上的序列保守性,FZD4蛋白的信号肽序列并不十分保守,翘嘴鳜FZD4蛋白的信号肽保守基序在这些物种中展示出了谱系特异性。信号肽负责蛋白质的细胞内定位与加工[32-33],其序列变异可能会影响鲈形目鱼类组织特异性表达。此外,fzd4 基因内含子和外显子数量在各物种中存在差异,大部分硬骨鱼类比哺乳类具有更多的数量,反映了基因结构进化的动态性。从保守基序、序列比对和外显子长度的保守性可以看出,fzd4基因在进化过程中并未发生外显子丢失,基因结构的变化可能通过内含子的插入和缺失事件实现。一系列研究发现,内含子不仅携带剪接信息,而且在不同水平的基因调控中发挥着许多支持作用[34-35]。由此可以推测,翘嘴鳜fzd4基因可能具有不同于哺乳动物的功能。
3.2 慢病毒过表达载体构建的技术验证与优势
针对翘嘴鳜fzd4基因的开放阅读框(ORF)长度为1 602 bp的特征,本研究中采用AsiSI/MluI双酶切系统构建重组载体,其技术优势体现在可以使定向克隆效率提升。该酶切组合针对fzd4基因的酶切位点特性设计,37 ℃下酶切1 h即可实现目的片段与载体的特异性切割,经10 g/L琼脂糖凝胶电泳验证,酶切后目的条带大小与预期一致,且胶回收效率满足后续连接需求。与传统单酶切相比,双酶切可以有效避免载体自连问题,提升了定向克隆效率,确保fzd4基因片段以正确方向插入载体。其次是连接体系优化,连接体系中,根据翘嘴鳜fzd4基因片段与载体片段的浓度比例,调整二者用量,在22 ℃条件下连接2 h,充分保障了T4连接酶的最佳活性,实现高效连接。在启动子的选择上,载体选用EF1a启动子驱动fzd4基因表达,可通过荧光观察直观判断转染与感染效率。启动子使荧光强度维持时间延长,这与哺乳动物细胞中的研究结论一致。本研究中成功建立的过表达体系为后续fzd4基因功能研究提供了技术保障,该慢病毒过表达体系的建立,专门针对翘嘴鳜fzd4基因功能研究的需求,其基因组整合特性可确保fzd4基因在宿主细胞中稳定表达。梯度稀释法建立的(TU/mL)计量体系,使滴度测定标准化。copGFP标记实现非破坏性观察,其表达稳定性也保持在较高的数值,避免反复感染导致的试验误差。该体系在HEK293T的转导效率,为后续在翘嘴鳜原代细胞或模式生物中验证fzd4基因对脂肪代谢的调控功能提供了有益参考,提示其在基因工程中的普适性,说明其跨物种的适用性。稳定的病毒表达系统为分子进化分析提供了可靠试验材料,特别是CRD结构域的保守性研究。
4 结论
1)翘嘴鳜fzd4基因编码的FZD4蛋白具有FZD家族高度保守的核心结构,表明翘嘴鳜FZD4蛋白在Wnt信号通路中的核心作用具有进化保守性。
2)翘嘴鳜FZD4蛋白的信号肽序列呈现谱系特异性,保守性较低,推测其序列变异可能影响鲈形目鱼类fzd4基因的组织特异性表达。
3)本研究中成功构建了针对翘嘴鳜fzd4基因的慢病毒过表达载体,为后续翘嘴鳜fzd4基因功能及分子进化研究提供了优质材料。
[1] ZHENG S Q,LIN J H,PANG Z Q,et al.Aberrant cholesterol metabolism and Wnt/β-catenin signaling coalesce via Frizzled5 in supporting cancer growth[J].Advanced Science,2022,9(28):2200750.
[2] YU H M,YE X,GUO N N,et al.Frizzled 2 and frizzled 7 function redundantly in convergent extension and closure of the ventricular septum and palate:evidence for a network of interacting genes[J].Development,2012,139(23):4383-4394.
[3] NABHAN A N,WEBSTER J D,ADAMS J J,et al.Targeted alveolar regeneration with Frizzled-specific agonists[J].Cell,2023,186(14):2995-3012.e15.
[4] VINSON C R,CONOVER S,ADLER P N.A Drosophila tissue polarity locus encodes a protein containing seven potential transmembrane domains[J].Nature,1989,338(6212):263-264.
[5] DIJKSTERHUIS J P,PETERSEN J,SCHULTE G.WNT/Frizzled signalling:receptor-ligand selectivity with focus on FZD-G protein signalling and its physiological relevance:IUPHAR Review 3[J].British Journal of Pharmacology,2014,171(5):1195-1209.
[6] SOMPEL K,ELANGO A,SMITH A J,et al.Cancer chemoprevention through frizzled receptors and EMT[J].Discover Oncology,2021,12(1):32.
[7] CORRIGAN P M,DOBBIN E,FREEBURN R W,et al.Patterns of Wnt/Fzd/LRP gene expression during embryonic hematopoiesis[J].Stem Cells and Development,2009,18(5):759-772.
[8] MARTINEZ-MARIN D,STROMAN G C,FULTON C J,et al.Frizzled receptors:gatekeepers of Wnt signaling in development and disease[J].Frontiers in Cell and Developmental Biology,2025,13:1599355.
[9] ZHANG K,HARADA Y,WEI X R,et al.An essential role of the cysteine-rich domain of FZD4 in norrin/wnt signaling and familial exudative vitreoretinopathy[J].Journal of Biological Chemistry,2011,286(12):10210-10215.
[10] 李杨.miR-141靶向FZD4调节Wnt/β-catenin信号通路促进糖尿病肾病的进展[J].中华航海医学与高气压医学杂志,2023,30(4):449-455.LI Y.MiR-141 promotes the development of diabetic nephropathy through regulating WNT/β-catenin signaling pathway by targeting FZD4[J].Chinese Journal of Nautical Medicine and Hyperbaric Medicine,2023,30(4):449-455.(in Chinese)
[11] JUNGE H J,YANG S,BURTON J B,et al.TSPAN12 regulates retinal vascular development by promoting norrin- but not wnt-induced FZD4/β-catenin signaling[J].Cell,2009,139(2):299-311.
[12] CARRERA W,NG C,DESLER C,et al.Novel FZD4 and LRP5 mutations in a small cohort of patients with familial exudative vitreoretinopathy (FEVR)[J].Ophthalmic Genetics,2021,42(2):200-203.
[13] ZHANG K,LÜ Q,LI L M,et al.Discovering the role of FZD4 gene in human cutaneous squamous cell carcinoma[J].Indian Journal of Dermatology,2021,66(5):484-489.
[14] ZHANG L L,ABEDIN M,JO H N,et al.A Frizzled4-LRP5 agonist promotes blood-retina barrier function by inducing a Norrin-like transcriptional response[J].iScience,2023,26(8):107415.
[15] ZHANG Z L,ZHOU H C,SUN F,et al.Circ_FBLN1 promotes the proliferation and osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating let-7i-5p/FZD4 axis and Wnt/β-catenin pathway[J].Journal of Bioenergetics and Biomembranes,2021,53(5):561-572.
[16] 李翘楚.FZD4通过WNT/β-Catenin通路对骨肉瘤铁死亡的作用及机制研究[D].重庆:重庆医科大学,2023.LI Q C.Effect and mechanism of FZD4 on ferroptosis in osteosarcoma via WNT/β-catenin signaling pathway[D].Chongqing:Chongqing Medical University,2023.(in Chinese)
[17] 罗寒雨,刘笑,郑菲菲,等.翘嘴鳜肝脏组织原代细胞培养技术的建立[J].水产科学,2024,43(5):808-816.LUO H Y,LIU X,ZHENG F F,et al.Establishment of primary cell culture technique for liver tissue of mandarin fish Siniperca chuatsi[J].Fisheries Science,2024,43(5):808-816.(in Chinese)
[18] 李禹韬,王若愚,马波,等.翘嘴鳜和斑鳜消化系统结构与功能比较[J].广东海洋大学学报,2025,45(3):1-11.LI Y T,WANG R Y,MA B,et al.Comparison of digestive system structure and functions between Siniperca chuatsi and Siniperca scherzeri[J].Journal of Guangdong Ocean University,2025,45(3):1-11.(in Chinese)
[19] CACERES L,PRYKHOZHIJ S V,CAIRNS E,et al.Frizzled 4 regulates ventral blood vessel remodeling in the zebrafish retina[J].Developmental Dynamics,2019,248(12):1243-1256.
[20] SMALLWOOD P M,WILLIAMS J,XU Q,et al.Mutational analysis of norrin-Frizzled4 recognition[J].Journal of Biological Chemistry,2007,282(6):4057-4068.
[21] 梁肖,金琳,李攀,等.sox9基因在中华鳖雄性性腺分化中的功能[J].水产学报,2025,49(6):54-65.LIANG X,JIN L,LI P,et al.The role of sox9 gene in male gonadal differentiation of Pelodiscus sinensis[J].Journal of Fisheries of China,2025,49(6):54-65.(in Chinese)
[22] 房恩岳,张丽萍,马雪征,等.慢病毒载体系统及其安全性研究进展[J].病毒学报,2023,39(4):1181-1192.FANG E Y,ZHANG L P,MA X Z,et al.Research progress on lentiviral vector systems and their safety issue[J].Chinese Journal of Virology,2023,39(4):1181-1192.(in Chinese)
[23] JI L Y,ZHOU A P,YU X Y,et al.Differential expression analysis of the SRB1 gene in fluconazole-resistant and susceptible strains of Candida albicans[J].The Journal of Antibiotics,2020,73(5):309-313.
[24] TAMURA K,STECHER G,KUMAR S.MEGA11:molecular evolutionary genetics analysis version 11[J].Molecular Biology and Evolution,2021,38(7):3022-3027.
[25] 姜春雨,孔宁,孙士晴,等.长牡蛎牛磺酸转运蛋白CgTauT基因的结构和表达特征[J].大连海洋大学学报,2025,40(1):25-33.JIANG C Y,KONG N,SUN S Q,et al.Structure and expression characteristics of taurine transporter CgTauT genes in Crassostrea gigas[J].Journal of Dalian Ocean University,2025,40(1):25-33.(in Chinese)
[26] YUAN S G,STEPHEN CHAN H C,HU Z Q.Using PyMOL as a platform for computational drug design[J].WIREs Computational Molecular Science,2017,7(2):e1298.
[27] SZKLARCZYK D,KIRSCH R,KOUTROULI M,et al.The STRING database in 2023:protein-protein association networks and functional enrichment analyses for any sequenced genome of interest[J].Nucleic Acids Research,2023,51(D1):D638-D646.
[28] HALLESKOG C,MULDER J,DAHLSTRÖM J,et al.WNT signaling in activated microglia is proinflammatory[J].Glia,2011,59(1):119-131.
[29] BIAN F H,GODA C,WANG G L,et al.FOXF1 promotes tumor vessel normalization and prevents lung cancer progression through FZD4[J].EMBO Molecular Medicine,2024,16(5):1063-1090.
[30] SEEMAB S,PERVAIZ N,ZEHRA R,et al.Molecular evolutionary and structural analysis of familial exudative vitreoretinopathy associated FZD4 gene[J].BMC Evolutionary Biology,2019,19(1):72.
[31] MACDONALD B T,HE X.Frizzled and LRP5/6 receptors for Wnt/β-catenin signaling[J].Cold Spring Harbor Perspectives in Biology,2012,4(12):a007880.
[32] AUCLAIR S M,BHANU M K,KENDALL D A.Signal peptidase I:cleaving the way to mature proteins[J].Protein Science,2012,21(1):13-25.
[33] LANG S,NGUYEN D,BHADRA P,et al.Signal peptide features determining the substrate specificities of targeting and translocation components in human ER protein import[J].Frontiers in Physiology,2022,13:833540.
[34] HADDAD-MASHADRIZEH A,MIRAHMADI M,TAGHAVIZADEH YAZDI M E,et al.Introns and their therapeutic applications in biomedical researches[J].Iranian Journal of Biotechnology,2023,21(4):e3316.
[35] JACOB A G,SMITH C W J.Intron retention as a component of regulated gene expression programs[J].Human Genetics,2017,136(9):1043-1057.