食欲素(orexin)是一类由下丘脑外侧区神经元合成的神经肽,在脊椎动物睡眠-觉醒周期调控、能量代谢平衡及摄食行为调控等生理过程中发挥核心作用[1]。在哺乳动物中,orexin前体蛋白经蛋白水解加工后,可生成两种成熟肽,即33个氨基酸组成的orexin-A和28个氨基酸组成的orexin-B,二者通过与G蛋白偶联的食欲素受体1(orexin receptor 1,OX1R)和受体2(orexin receptor 2,OX2R)结合发挥功能[2]。其中,orexin-A在刺激摄食中的效能显著高于orexin-B,orexin-B主要调控睡眠-觉醒周期[3]。饥饿状态下小鼠orexin系统被激活,既能驱动觅食行为,又能提升觉醒水平与能量消耗以支持该行为[4-5]。在斑马鱼(Danio rerio)的研究中进一步证实,饥饿能激活其下丘脑orexin信号,通过改变延长型谷氨酸受体活性,激活腹侧缰核外侧亚区至背侧/中间脚间核的神经通路,最终增强个体在争斗情境中获取食物的能力[6]。
鱼类食欲调控是其应对水环境摄食压力、保障生存与生长的关键生理过程。随着基因克隆与全基因组测序技术的发展,orexin基因已在多种硬骨鱼中成功鉴定,包括红鳍东方鲀(Takifugu rubripes)[7]、金鱼(Carassius auratus)[8]、斑马鱼[9]、尼罗罗非鱼(Oreochromis niloticus)[10]、大西洋鳕(Gadus morhua)[11]、斜带石斑鱼(Epinephelus coioides)[12]、条斑星鲽(Verasper moseri)[13]、美洲拟鲽(Pseudopleuronectes americanus)[14]、半滑舌鳎(Cynoglossus semilaevis)[15]、虹鳟(Oncorhynchus mykiss)[16]和鲤(Cyprinus carpio)[17]等。与哺乳动物类似,硬骨鱼类orexin同样具有保守的促食欲及能量平衡调节功能。
脑室注射orexin可显著提高金鱼摄食量,同时增加其运动活性并诱导焦虑样行为[18-19]。斑马鱼连续禁食7 d后,下丘脑orexin免疫反应阳性神经元数量显著增加,外源性注射orexin-A可进一步提升累计摄食量[20]。尼罗罗非鱼注射orexin拮抗剂莱博雷生(lemborexant)后,摄食量呈剂量依赖性降低[21]。
鲟隶属于软骨硬鳞鱼次亚纲(Chondrostei),在进化历程中,其染色体经历基因组复制事件并发生功能性二倍体化,与传统硬骨鱼类相比存在明显的基因差异,成为解析脊椎动物起源与演化的关键模型生物[22]。西伯利亚鲟(Acipenser baeri)为鲟科(Acipenseridae)鲟属(Acipenser)代表性物种,因其生长速度快、环境适应性强、营养价值高且进化地位特殊,是重要的亚冷水鱼养殖品种和育种材料,兼具重要科研价值与经济价值[23]。目前,国内外尚无西伯利亚鲟orexin-like基因的相关研究报道,其分子结构及摄食调控功能尚不明确。本研究中首次克隆获得西伯利亚鲟orexin-like基因cDNA全长,通过实时荧光定量PCR(RT-qPCR)检测orexin-like组织表达特征及对摄食状态的响应,并结合腹腔注射试验探究了orexin-like成熟肽对摄食量及食欲相关基因的影响,以期为西伯利亚鲟摄食调控机制研究提供有益参考。
1 材料与方法
1.1 材料
试验用西伯利亚鲟幼鱼由四川润兆鲟鱼有限公司提供,饲养于四川农业大学水产系实验室,养殖水温控制在19 ℃±1 ℃,光照周期为12 h∶12 h(光∶暗)。暂养期间,每日14:00按鱼体质量3%投喂鲟鱼专用商业沉性颗粒饲料1次,每日8:00和20:00采用虹吸法换水2次,以维持水质稳定。
1.2 方法
1.2.1 RNA提取及cDNA合成 使用Foregene动物组织RNA提取试剂盒提取各组织总RNA。采用10 g/L琼脂糖凝胶电泳监测RNA完整性,利用核酸测定仪测定RNA浓度与纯度。采用PrimeScriptTM RT reagent Kit(Perfect Real Time)进行基因组DNA去除及cDNA合成,所得cDNA用于后续RT-qPCR分析。RACE-Ready cDNA制备使用SMART RACE cDNA构建试剂盒。
1.2.2 基因克隆和序列分析 参考小体鲟(Acipenser ruthenus)基因组公布的orexin-like核苷酸序列(XM_034009235.2),采用Primer 6.0软件设计引物,包括目的基因核心片段克隆引物(orexin like-f/r)、5′RACE特异性引物(orexin like-f1/f1)和3′RACE特异性引物(orexin like-r1/r2)(表1)。以西伯利亚鲟脑cDNA为模板进行PCR扩增,扩增体系总体积为10 μL。PCR产物经15 g/L琼脂糖凝胶电泳分离后,采用胶回收试剂盒回收目的条带,将回收片段与pMD19-T载体于4 ℃过夜连接,随后转化入DH5α感受态细胞中,通过菌液PCR筛选阳性克隆,选取阳性菌液送至生工生物工程(上海)股份有限公司测序。结合核心片段与 RACE 测序结果,使用DNAMAN软件拼接获得orexin-like基因cDNA全长序列。
表1 引物序列及用途
Tab.1 Primers used for the study
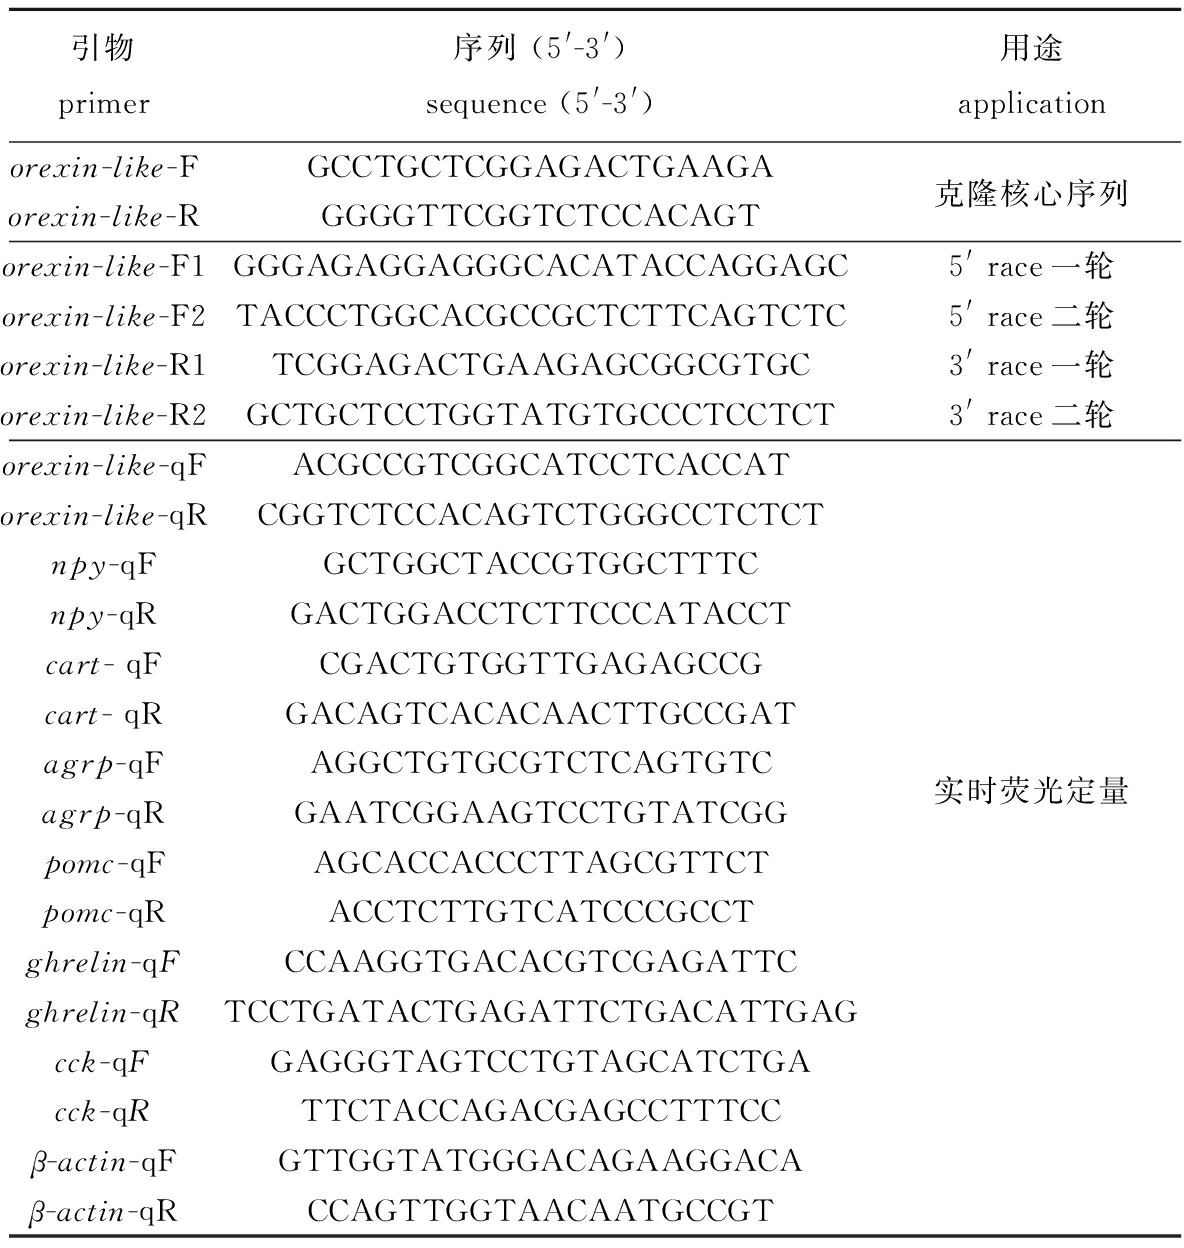
引物primer序列 (5'-3')sequence (5'-3')用途applicationorexin-like-FGCCTGCTCGGAGACTGAAGA克隆核心序列orexin-like-RGGGGTTCGGTCTCCACAGTorexin-like-F1GGGAGAGGAGGGCACATACCAGGAGC5' race一轮orexin-like-F2TACCCTGGCACGCCGCTCTTCAGTCTC5' race二轮orexin-like-R1TCGGAGACTGAAGAGCGGCGTGC3' race一轮orexin-like-R2GCTGCTCCTGGTATGTGCCCTCCTCT3' race二轮orexin-like-qFACGCCGTCGGCATCCTCACCATorexin-like-qRCGGTCTCCACAGTCTGGGCCTCTCTnpy-qFGCTGGCTACCGTGGCTTTCnpy-qRGACTGGACCTCTTCCCATACCTcart- qFCGACTGTGGTTGAGAGCCGcart- qRGACAGTCACACAACTTGCCGATagrp-qFAGGCTGTGCGTCTCAGTGTC实时荧光定量agrp-qRGAATCGGAAGTCCTGTATCGGpomc-qFAGCACCACCCTTAGCGTTCTpomc-qRACCTCTTGTCATCCCGCCTghrelin-qFCCAAGGTGACACGTCGAGATTCghrelin-qRTCCTGATACTGAGATTCTGACATTGAGcck-qFGAGGGTAGTCCTGTAGCATCTGAcck-qRTTCTACCAGACGAGCCTTTCCβ-actin-qFGTTGGTATGGGACAGAAGGACAβ-actin-qRCCAGTTGGTAACAATGCCGT
1.2.3 生物信息学分析 利用ORFfinder(https://www.ncbi.nlm.nih.gov/orffinder/)预测获得西伯利亚鲟orexin-like的CDS序列;采用DNAMAN软件进行氨基酸序列多重比对,分析其保守性;通过在线软件DeepTMHMM(https://biolib.com/DTU/DeepTMHMM/)分析跨膜区;采用SignalP-6.0软件(https://dtu.biolib.com/SignalP-6)预测信号肽;采用MegAlign软件进行氨基酸序列的一致性分析;基于邻近法采用MEGA 12软件构建系统发育树。
1.2.4 组织分布试验 选取6尾西伯利亚鲟幼鱼(体质量为29.45 g±2.84 g),禁食24 h后采用MS-222(100 mg/L)麻醉,随后将其快速分离,获得14个组织,包括5个脑区(前脑、中脑、下丘脑、小脑和延脑)和9个外周组织(胃、十二指肠、瓣肠、直肠、心脏、肝脏、胰腺、脾脏、肾脏)。提取各组织总RNA并反转录为cDNA,通过RT-qPCR测定orexin-like基因在各组织中的相对表达量。
1.2.5 摄食前后和禁食试验 选取63尾健康西伯利亚鲟幼鱼(体质量为29.45 g±2.84 g),随机分配至21个鱼缸中,每缸放置3尾。正式试验前驯化2周,随后将鱼分为两组:投喂组(15缸)与禁食组(6缸)。投喂组于每日14:00按鱼体质量3%投喂饲料(同暂养期),禁食组不投喂。分别于摄食前3 h(11:00,-3 h)、摄食前1 h(13:00,-1 h)、投喂时间点(14:00,0 h)、摄食后1 h(15:00,+1 h)及摄食后3 h(17:00,+3 h)采集样品。禁食组在摄食前1 h与3 h同步采样,作为正常投喂组对应时间点的对照。每个时间点从3个重复缸中各取2尾鱼,即每组取6尾鱼,经MS-222麻醉致死后,采集前脑与下丘脑,保存于RNA later中,用于后续orexin-like基因表达分析。
将36尾健康西伯利亚鲟幼鱼(体质量为29.45 g±2.84 g),随机置于12个养殖缸,每缸放置3尾。正式试验前进行驯化,每天14:00按体质量3%投喂饲料,驯化结束后将试验鱼分为2组,即正常投喂组和禁食处理组。分别在试验第1天和第7天14:30采集样品,每组从3个重复缸中各取2尾鱼,即每组取6尾鱼,麻醉致死后采集前脑和下丘脑,用于orexin-like基因表达分析。
1.2.6 腹腔注射试验 orexin-like成熟肽由上海波泰生物科技有限公司合成,其C末端进行酰胺化修饰,氨基酸序列为FPSCCRLRRCHCRLLELLYGPGNHAVGILTM-NH2,该多肽相对分子质量为3 529 310,纯度≥95%,使用磷酸缓冲液(PBS)溶解并配制成不同浓度的工作液。
选取48尾健康西伯利亚鲟幼鱼(体质量为33.42 g±4.15 g),随机置于12个养殖缸,每缸放置4尾鱼。试验分为4组,分别腹腔注射100、200、400 ng/g BW orexin-like成熟肽,且腹腔注射磷酸盐缓冲盐水(phosphate buffered saline,PBS)作为对照组。试验前进行2周暂养驯化,每日14:00按体质量3%投喂预称重饲料。在固定投喂时间点前20 min,采用MS-222麻醉试验鱼,称重后按设定剂量腹腔注射对应药物或PBS,分别在注射后1、3、6 h收集各缸残饵,置于电热鼓风干燥箱烘至恒重,结合饲料溶解损失率计算累计摄食量。
为了探究orexin-like调控摄食的分子机制,选取24尾西伯利亚鲟幼鱼(体质量为34.23 g±5.21 g),随机置于6个养殖缸,每缸4尾。其中,3缸鱼腹腔注射有效剂量orexin like成熟肽,3缸鱼腹腔注射PBS缓冲液作为对照组。注射后1 h,从每组3个鱼缸中各捞取2尾鱼(每组6尾),MS-222麻醉后致死分离前脑和下丘脑,保存于RNAlater,以备后续食欲相关基因表达量测定。基于前期研究显示npy、pomc、agrp和cart为脑中关键的食欲调控基因,ghrelin和cck分别为胃肠道中关键的促食欲和抑食欲因子,因此本研究中检测了以上基因的表达量。
1.2.7 实时荧光定量PCR 采用Bio-Rad实时荧光定量PCR系统进行检测。通过梯度PCR摸索引物最适退火温度,绘制标准曲线验证引物特异性与扩增效率,并结合融解曲线分析筛选适宜的RT-qPCR引物(表1)。其中,orexin-like基因荧光定量引物扩增效率为94%。RT-qPCR反应体系总体积为10 μL,包含SYBR® Premix ExTaqTMⅡ5 μL、上下游引物各0.4 μL、cDNA模版1 μL、ddH2O 3.2 μL,参照试剂盒说明书进行。反应程序为95 ℃下预变性1 min;95 ℃下变性15 s,62 ℃下退火15 s,72 ℃下延伸45 s,共进行44个循环。以β-actin作为内参基因,采用2-ΔΔCt法计算目的基因相对表达量,公式为ΔΔCt=(Ct目的基因-Ct内参基因)-(Ct目标基因参照-Ct内参基因参照)。
1.3 数据处理
所有数据均以平均值±标准误(mean±S.E.)表示,采用SPSS 20.0软件进行单因素方差分析(one-way ANOVA),采用Duncan法进行多重比较,显著性水平设为0.05。
2 结果与分析
2.1 Orexin-like基因结构分析
本研究中通过RT-PCR结合RACE技术克隆获得西伯利亚鲟orexin-like基因cDNA全长序列。该基因全长1 216 bp,包含283 bp的5′非编码区(5′-UTR)、471 bp开放阅读框(open reading frame,ORF)和462 bp 3′非编码区(3′-UTR)。ORF编码156个氨基酸的前体蛋白,其中含39个氨基酸组成的信号肽(氨基酸位点1~39)及31个氨基酸的orexin-like成熟肽结构域(氨基酸位点40~70),不包含类似orexin-B的结构域(图1)。
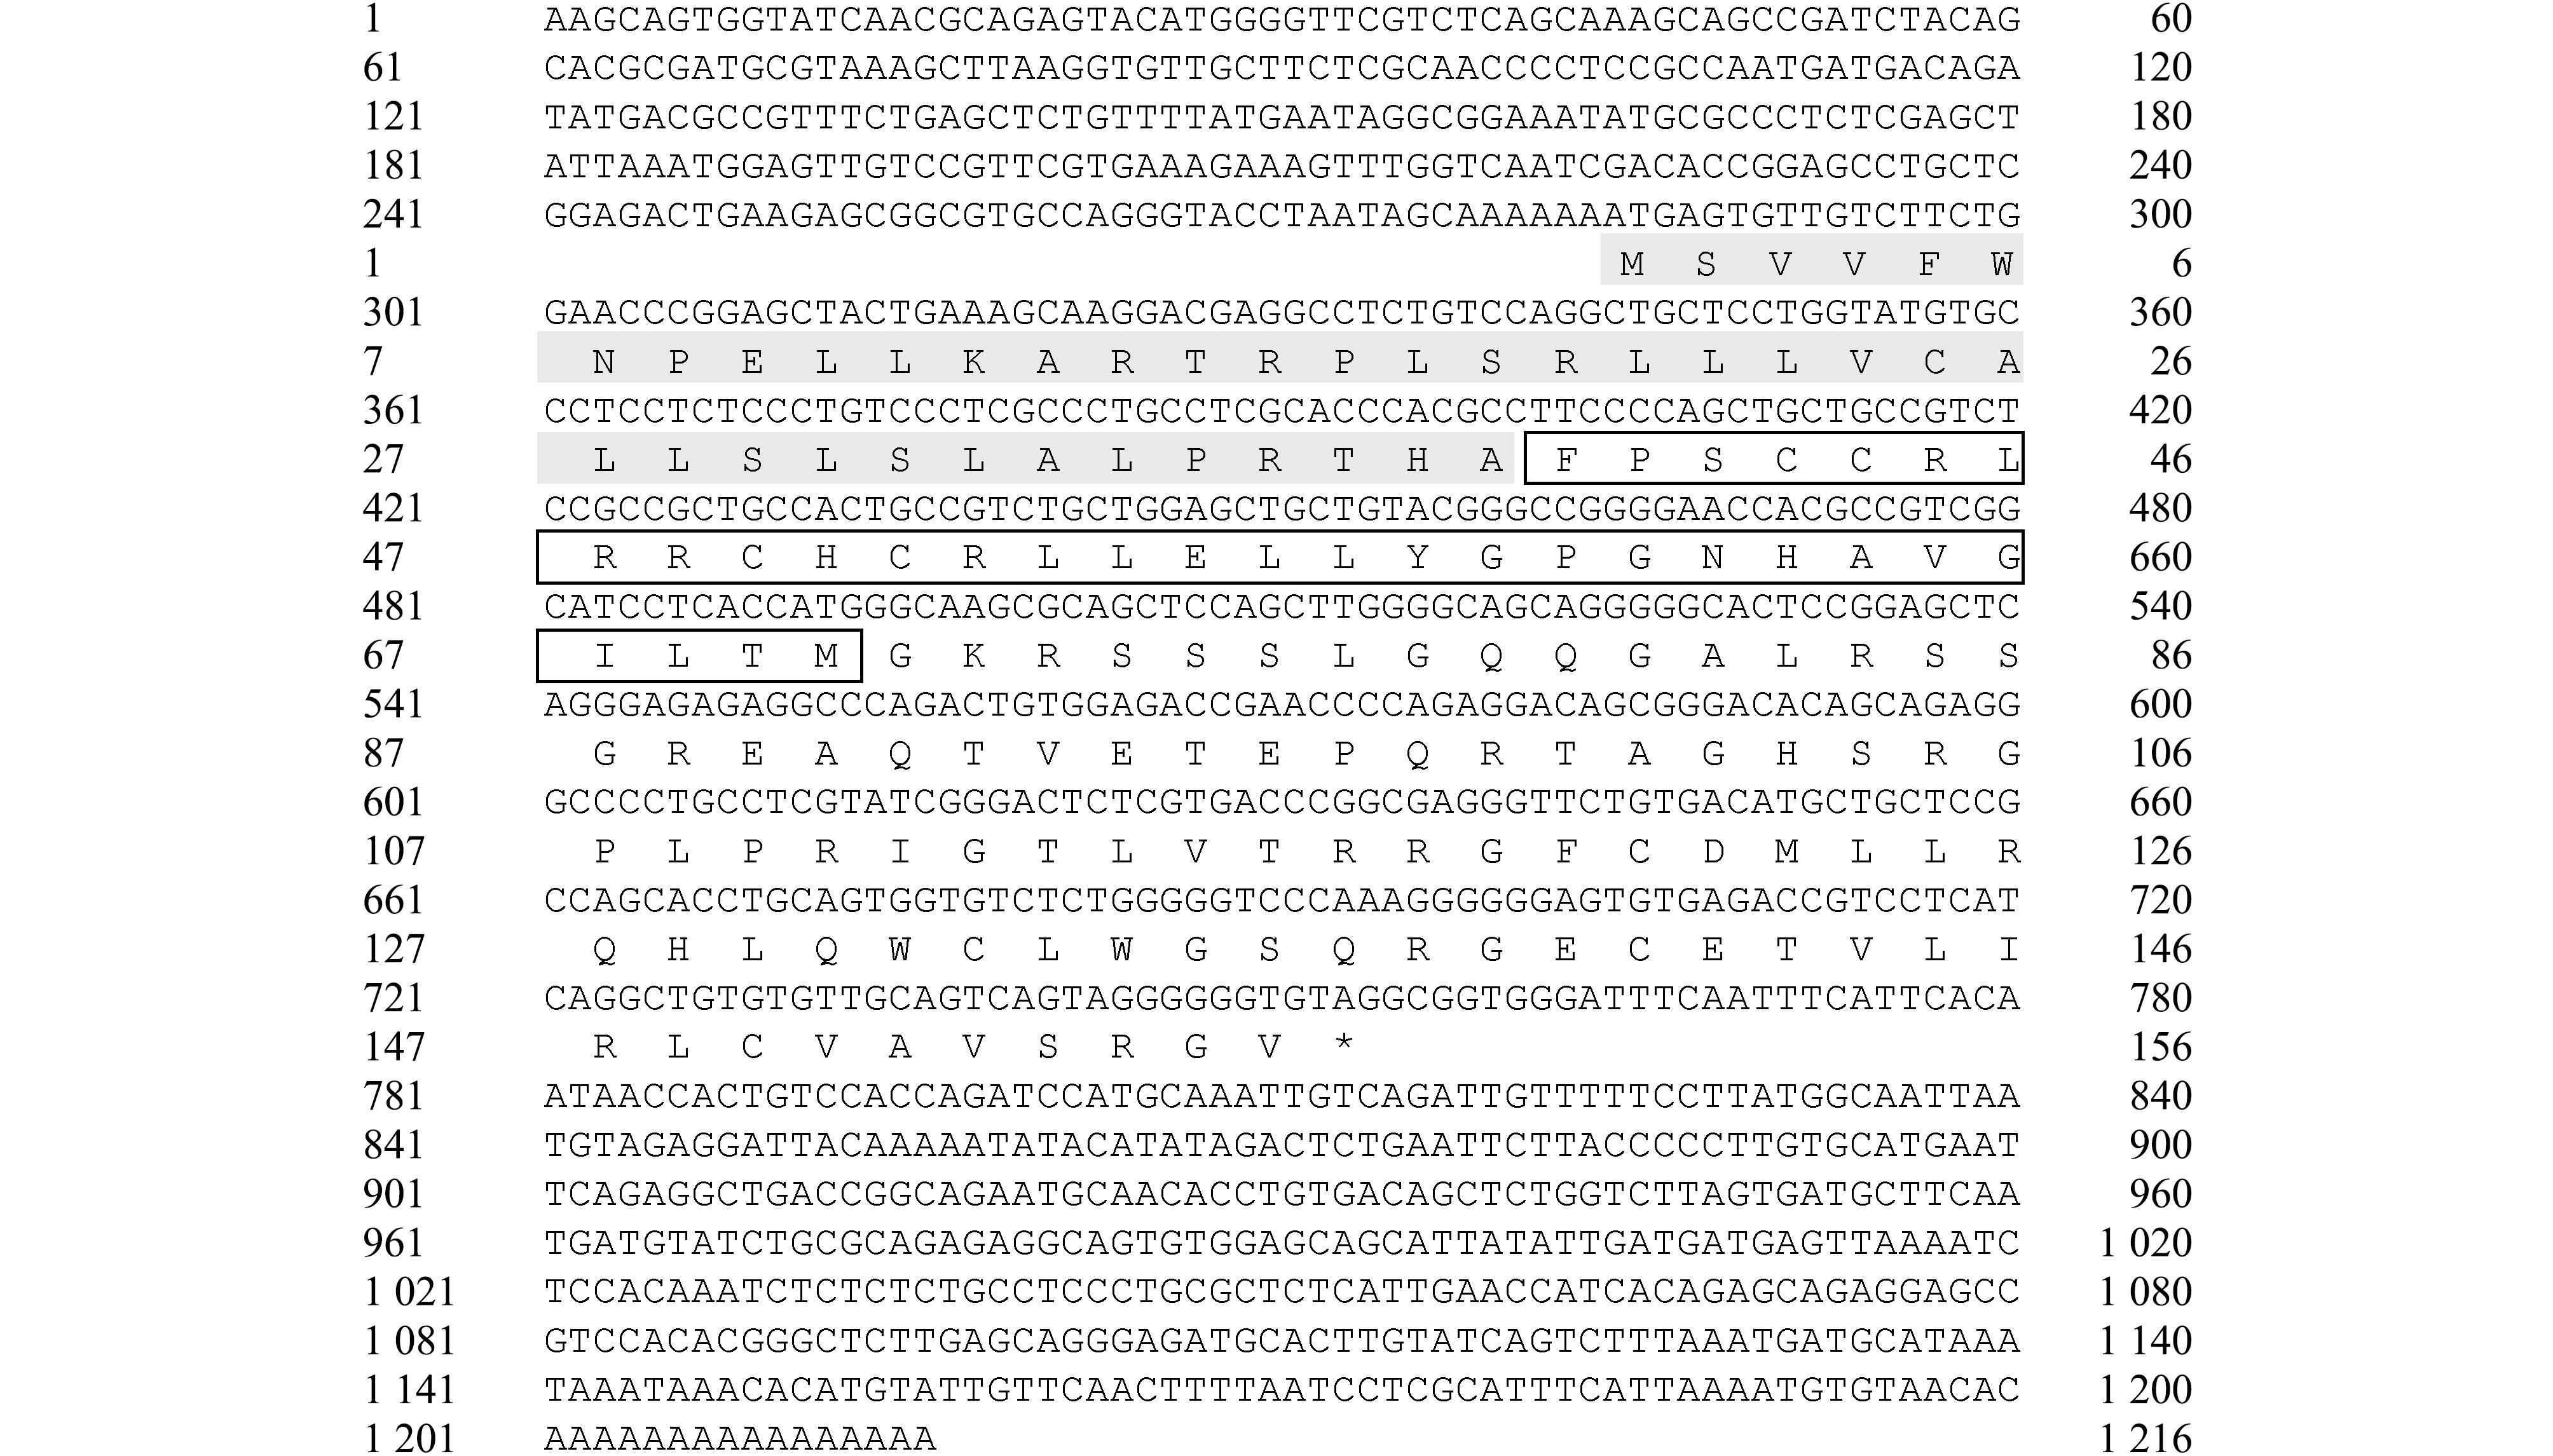
阴影部分表示信号肽,方框内表示orexin-like成熟肽,星号表示终止密码子。
The shaded region denotes the signal peptide,the boxed area indicates orexin-like mature peptide,and the asterisk represents the stop codon.
图1 西伯利亚鲟orexin-like氨基酸序列预测
Fig.1 Prediction of amino acid sequence of orexin-like in Siberian sturgeon
2.2 序列比对和系统进化分析
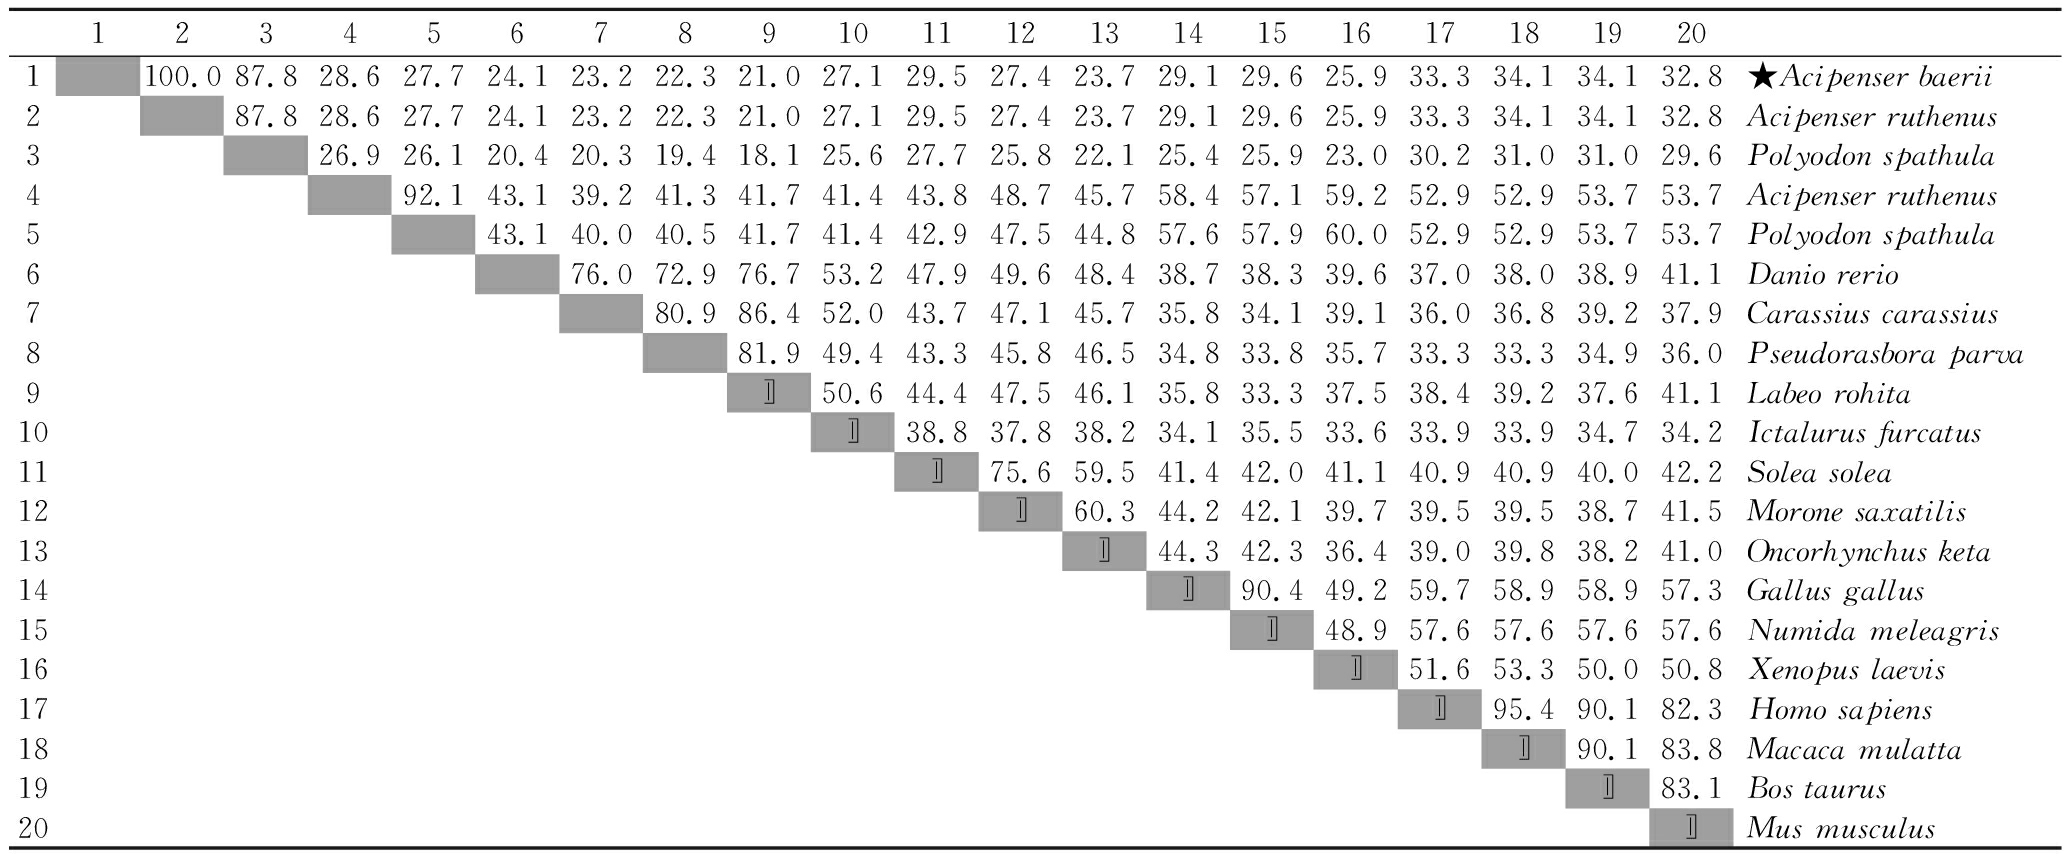
氨基酸序列比对结果显示,西伯利亚鲟orexin-like序列在鲟形目中高度保守,与小体鲟和匙吻鲟(Polyodon spathula)orexin-like氨基酸序列的一致性分别为100%和87.8%,而与其他脊椎动物orexin序列的一致性较低,仅为21.0%~34.1%。进一步分析发现,西伯利亚鲟orexin-like与哺乳动物orexin的氨基酸序列一致性高于硬骨鱼类、两栖类及鸟类,其中与人类(Homo sapiens)、猕猴(Macaca mulatta)、牛(Bos taurus)和小鼠(Mus musculus)一致性分别为33.3%、34.1%、34.1%、32.8%(表2)。多重序列比对结果表明,西伯利亚鲟orexin-like与其他物种orexin的orexin-A成熟肽区域保守性较高,但无硬骨鱼类orexin-A中常见的16个氨基酸插入序列,且未发现orexin-B成熟肽结构(图2)。系统发育树显示,西伯利亚鲟orexin-like与小体鲟、匙吻鲟orexin-like首先聚为一支,随后与哺乳动物、两栖类orexin聚为一大支,而硬骨鱼类、爬行类及鸟类orexin单独聚为另一支(图3)。
表2 西伯利亚鲟与其他脊椎动物orexin/orexin-like氨基酸序列的同源性分析
Tab.2 Homology analysis of orexin/orexin-like amino acid sequences between Acipenser baerii and other vertebrates %
12345678910111213141516171819201100.087.828.627.724.123.222.321.027.129.527.423.729.129.625.933.334.134.132.8★Acipenser baerii287.828.627.724.123.222.321.027.129.527.423.729.129.625.933.334.134.132.8Acipenser ruthenus326.926.120.420.319.418.125.627.725.822.125.425.923.030.231.031.029.6Polyodon spathula492.143.139.241.341.741.443.848.745.758.457.159.252.952.953.753.7Acipenser ruthenus543.140.040.541.741.442.947.544.857.657.960.052.952.953.753.7Polyodon spathula676.072.976.753.247.949.648.438.738.339.637.038.038.941.1Danio rerio780.986.452.043.747.145.735.834.139.136.036.839.237.9Carassius carassius881.949.443.345.846.534.833.835.733.333.334.936.0Pseudorasbora parva9〛50.644.447.546.135.833.337.538.439.237.641.1Labeo rohita10〛38.837.838.234.135.533.633.933.934.734.2Ictalurus furcatus11〛75.659.541.442.041.140.940.940.042.2Solea solea12〛60.344.242.139.739.539.538.741.5Morone saxatilis13〛44.342.336.439.039.838.241.0Oncorhynchus keta14〛90.449.259.758.958.957.3Gallus gallus15〛48.957.657.657.657.6Numida meleagris16〛51.653.350.050.8Xenopus laevis17〛95.490.182.3Homo sapiens18〛90.183.8Macaca mulatta19〛83.1Bos taurus20〛Mus musculus
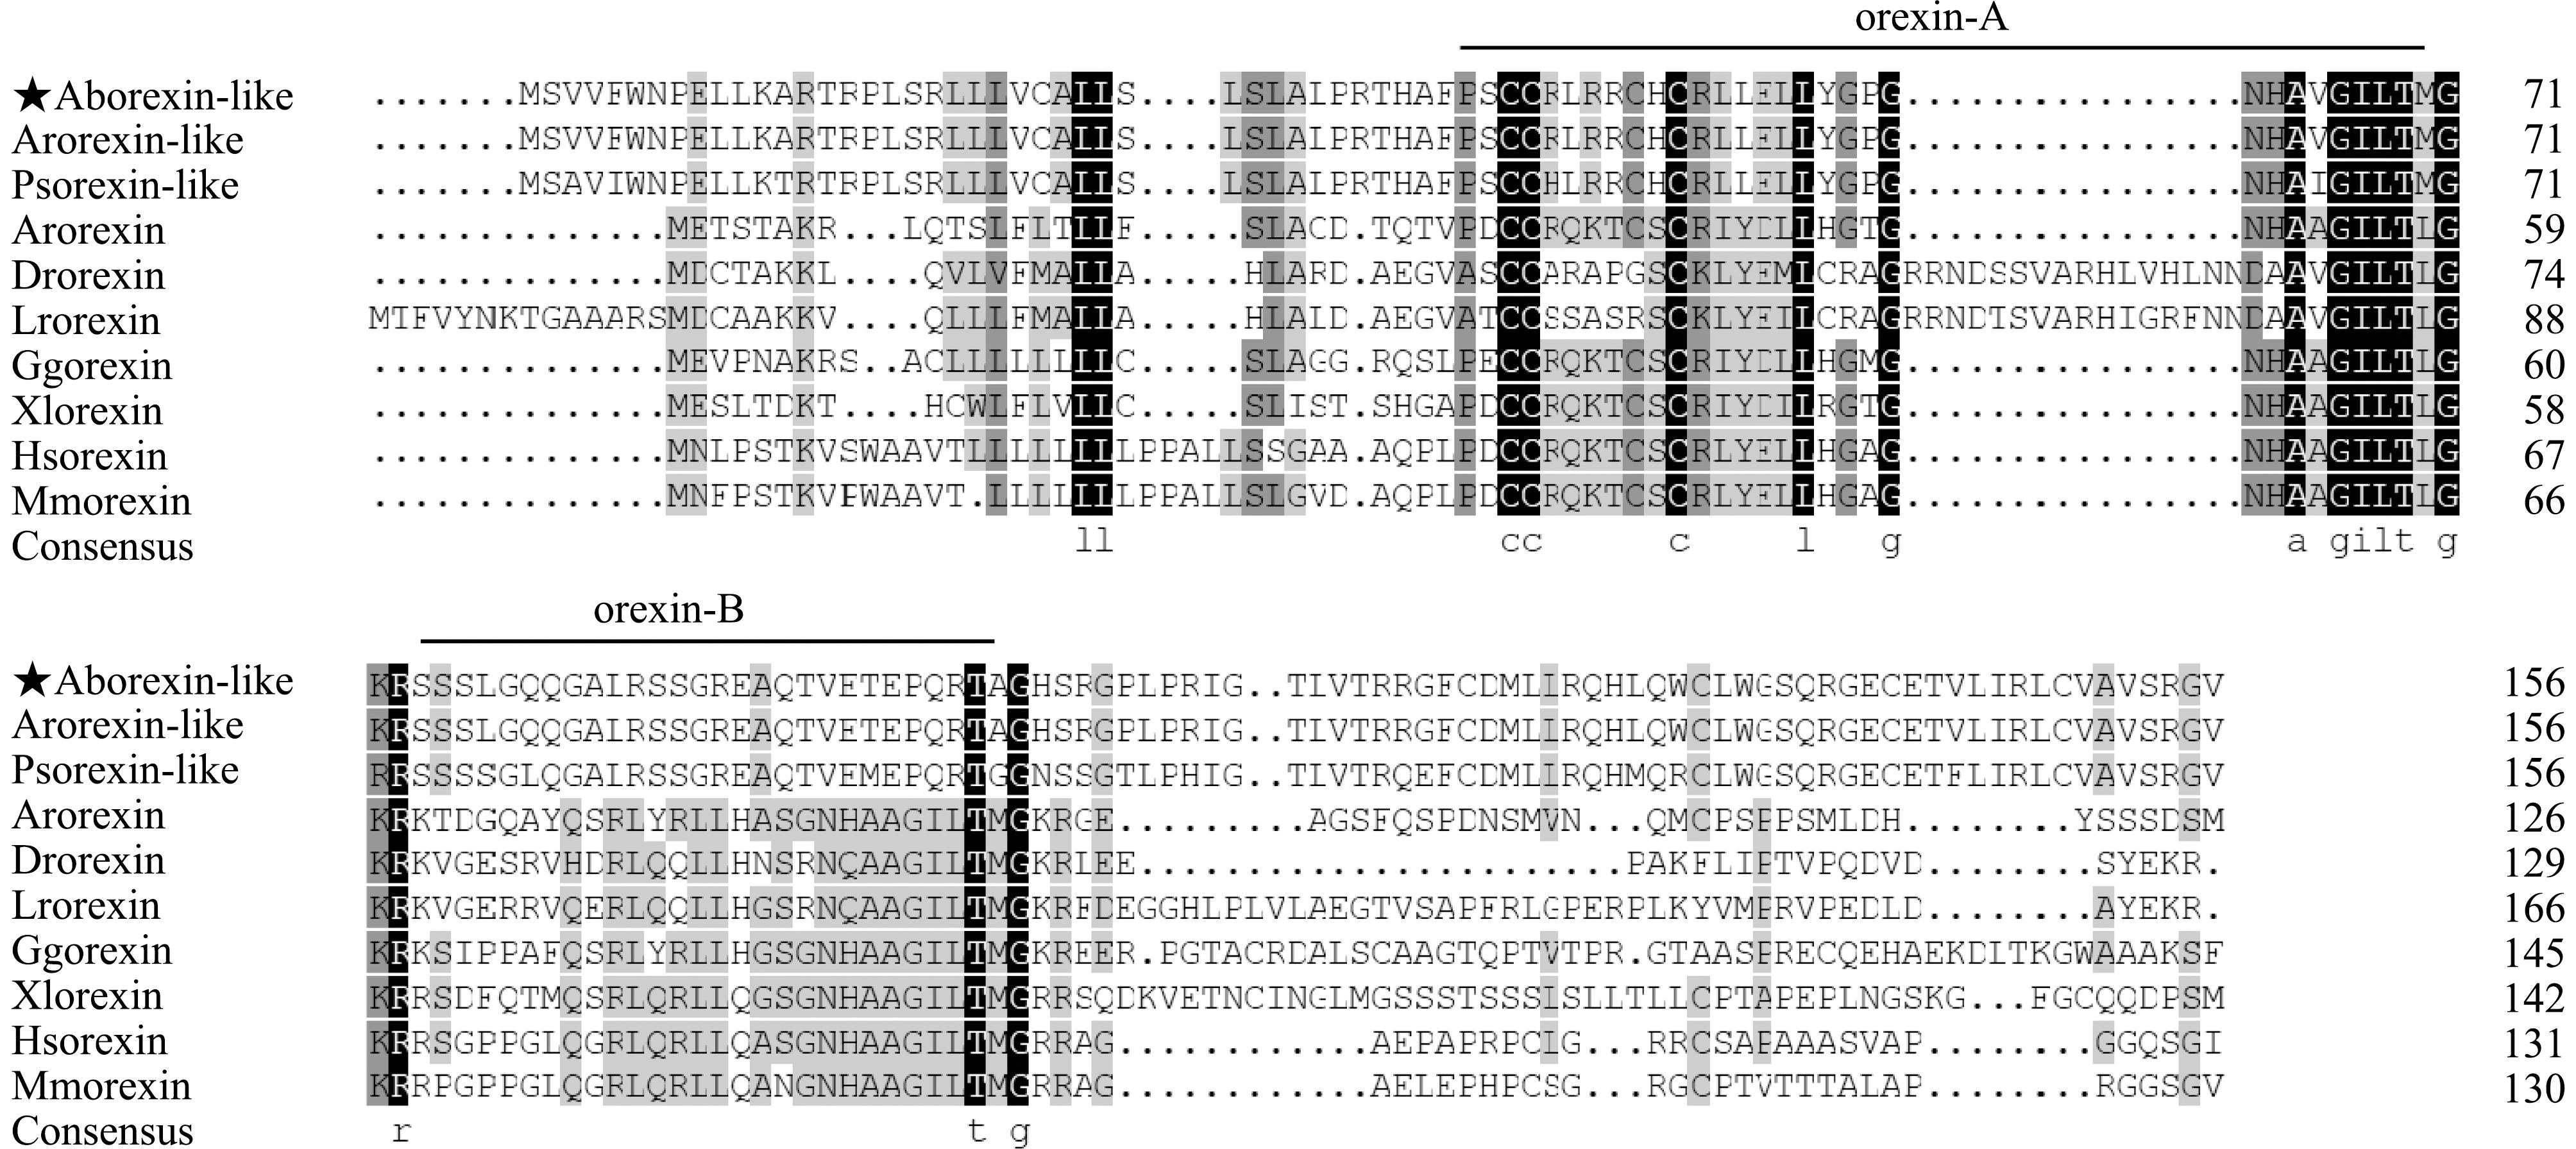
图2 不同脊椎动物orexin/orexin-like氨基酸多重序列比对分析
Fig.2 Comparative analysis of multiple amino acid sequences of orexin/orexin-like among different vertebrate
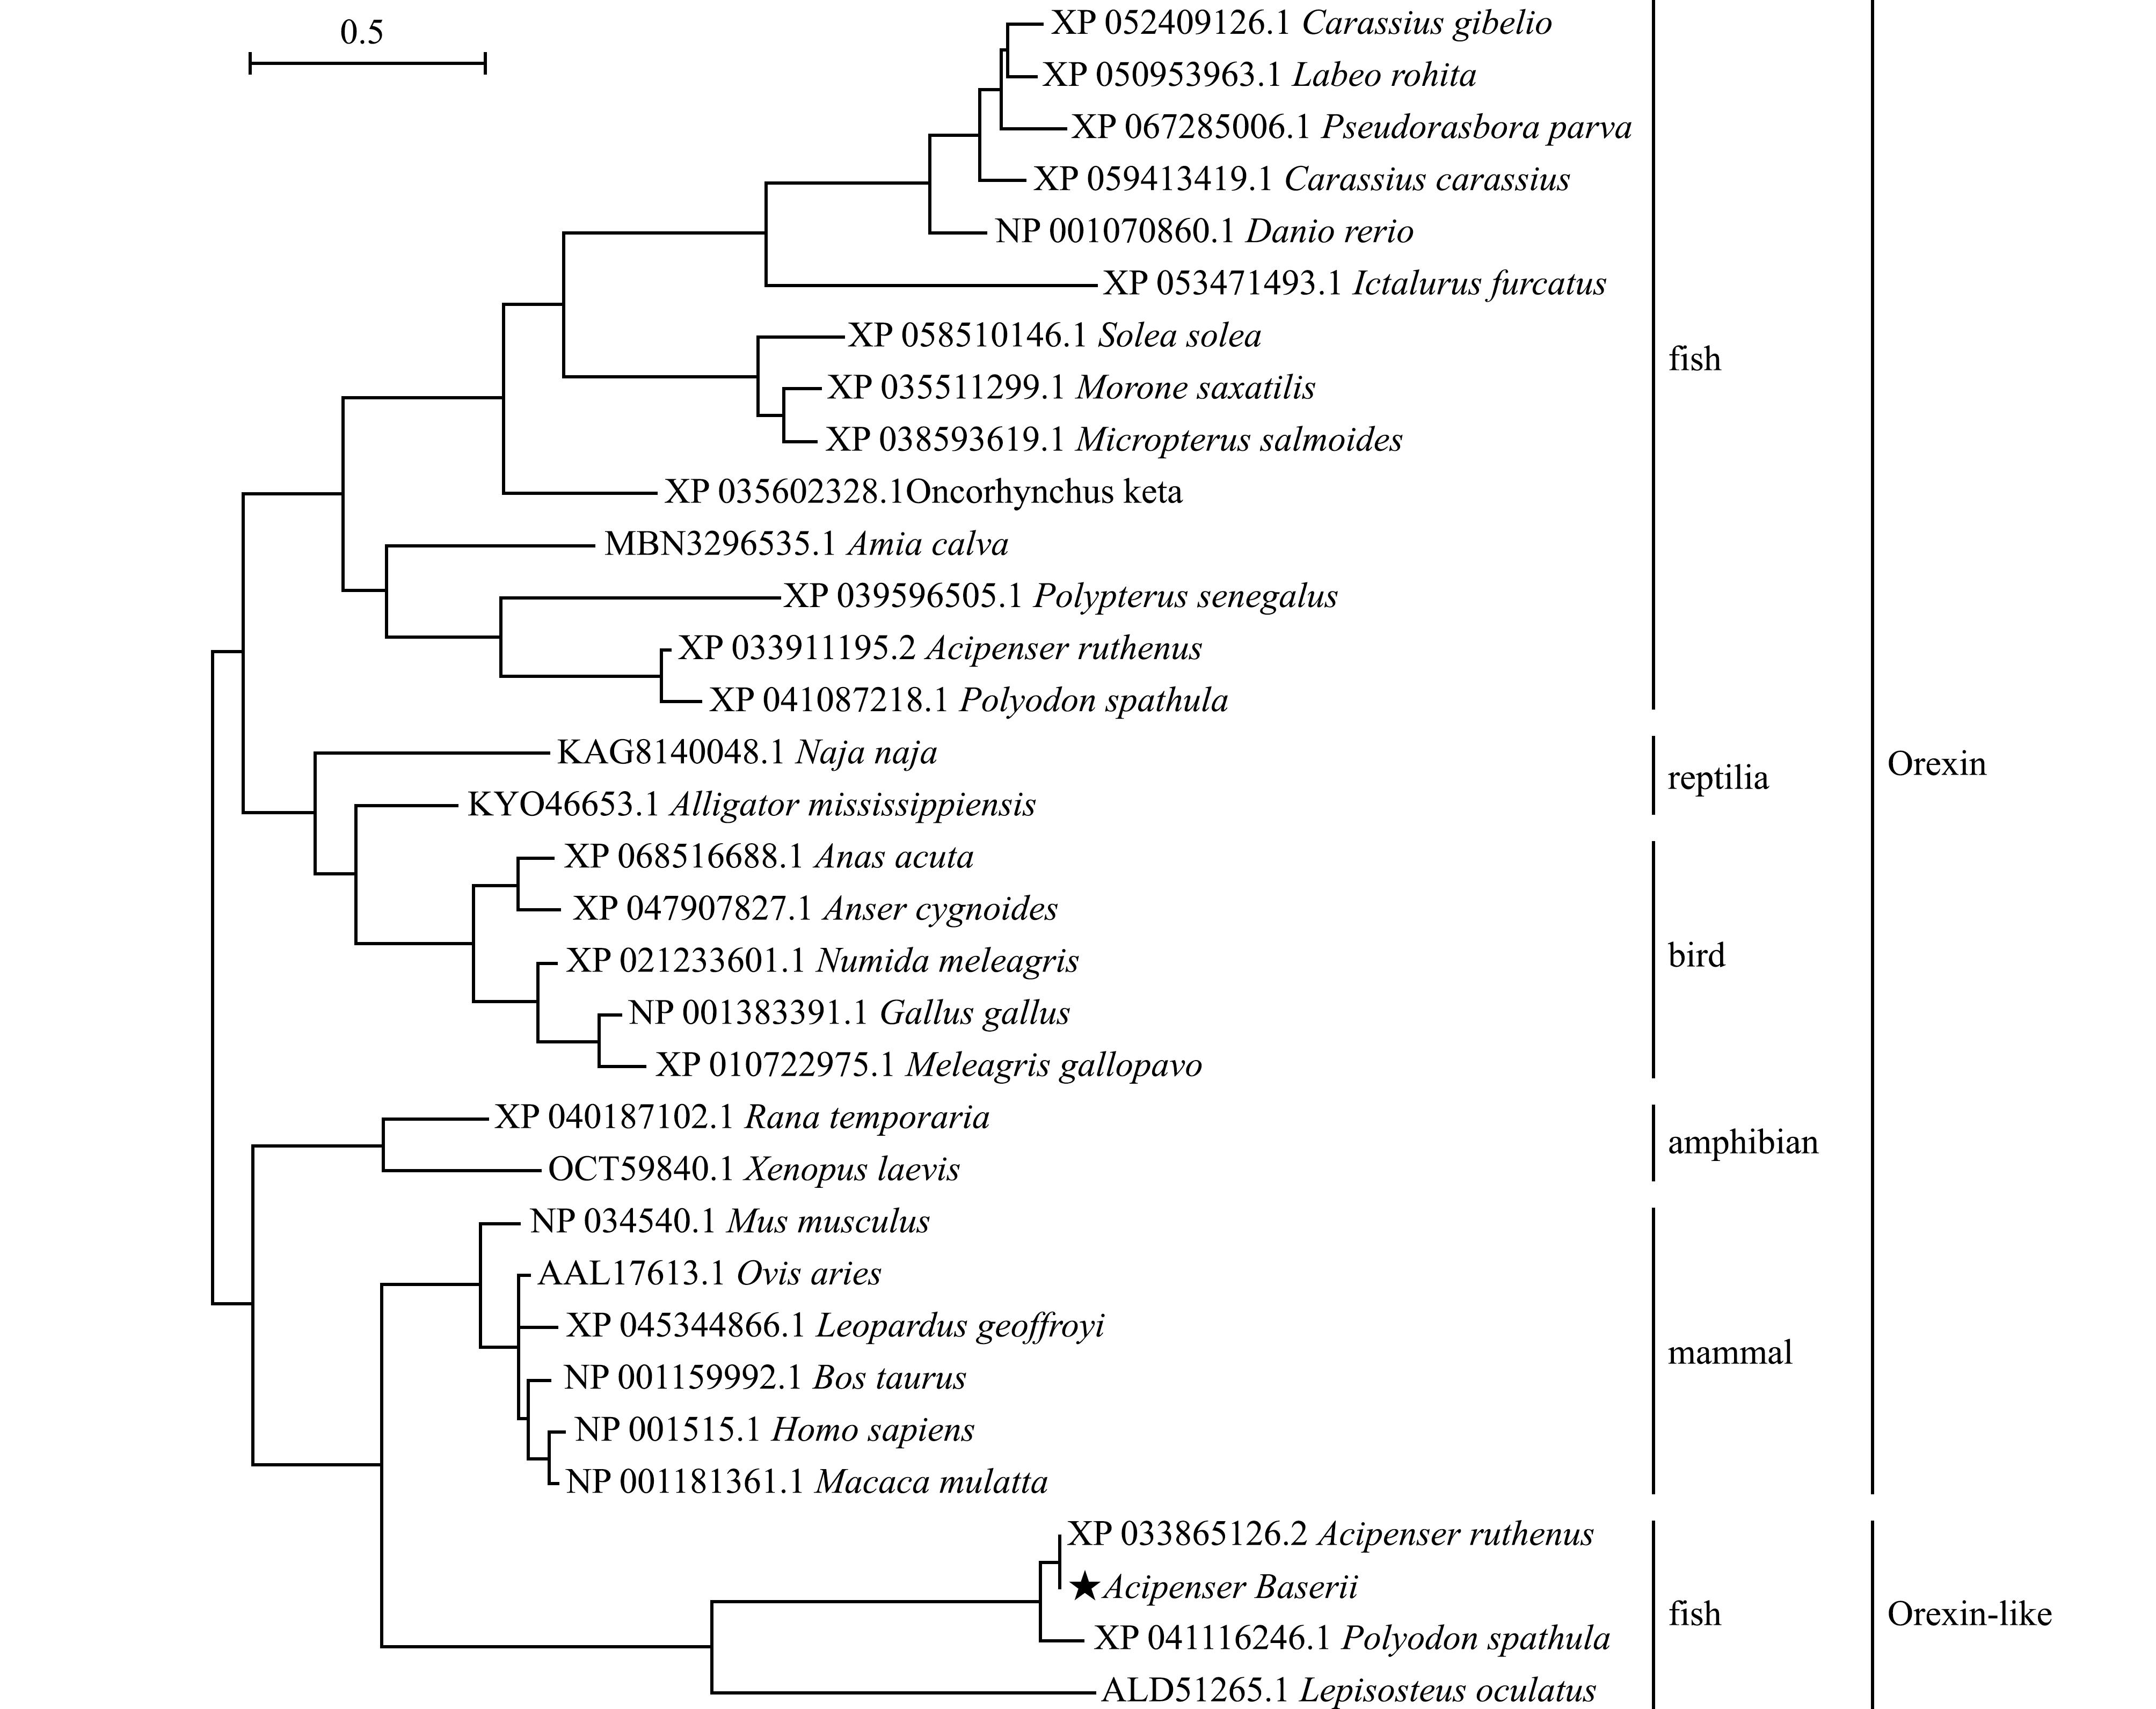
图3 Orexin/orexin-like氨基酸序列系统进化树
Fig.3 Phylogenetic tree of amino acid sequences of orexin/orexin-like
2.3 Orexin-like基因组织分布
西伯利亚鲟orexin-like基因在中枢神经系统和外周组织中均有表达。其中,前脑orexin-like表达量最高,且显著高于其他组织(P<0.05),肝脏和直肠次之,胰腺中的表达量最低。在脑区中,除前脑外,orexin-like在中脑、下丘脑、小脑和延脑中也有表达,但表达量无显著性差异(图4)。
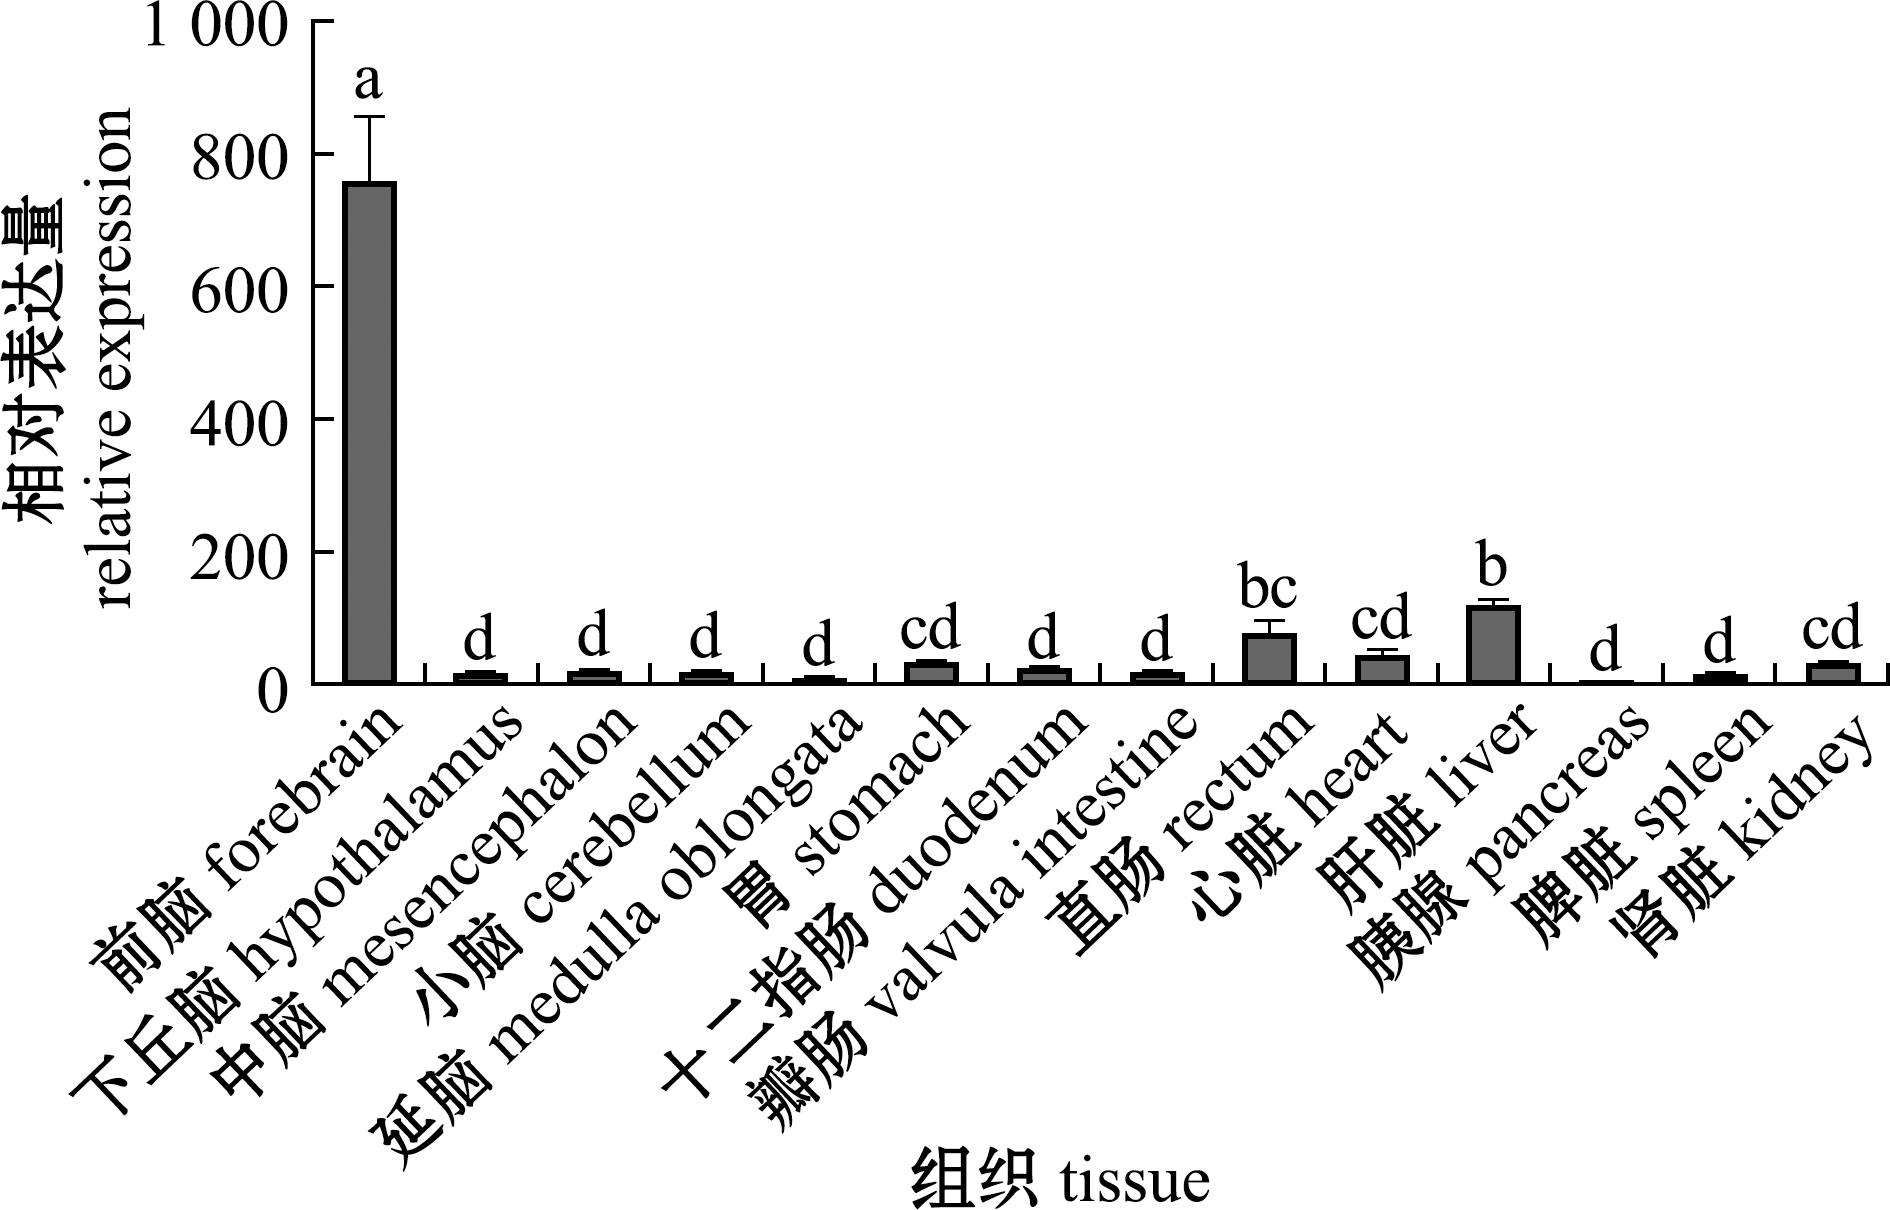
不同小写字母代表组间有显著性差异(P<0.05),下同。
Different letters indicate significant difference among group(P<0.05),et sequentia.
图4 西伯利亚鲟orexin-like组织分布
Fig.4 Tissular distribution of orexin-like in Acipenser baerii
2.4 摄食前后orexin-like表达量的变化
西伯利亚鲟前脑orexin-like表达量在摄食前3 h和1 h无显著性差异,而在摄食后1 h和3 h均显著降低(P<0.01,图5(a))。下丘脑orexin-like表达量在摄食前1 h显著低于0 h(P<0.05),摄食后1 h,正常投喂组orexin-like表达量显著降低(P<0.001),摄食后3 h正常投喂组与禁食组orexin-like表达量有显著性差异(P<0.05,图5(b))。
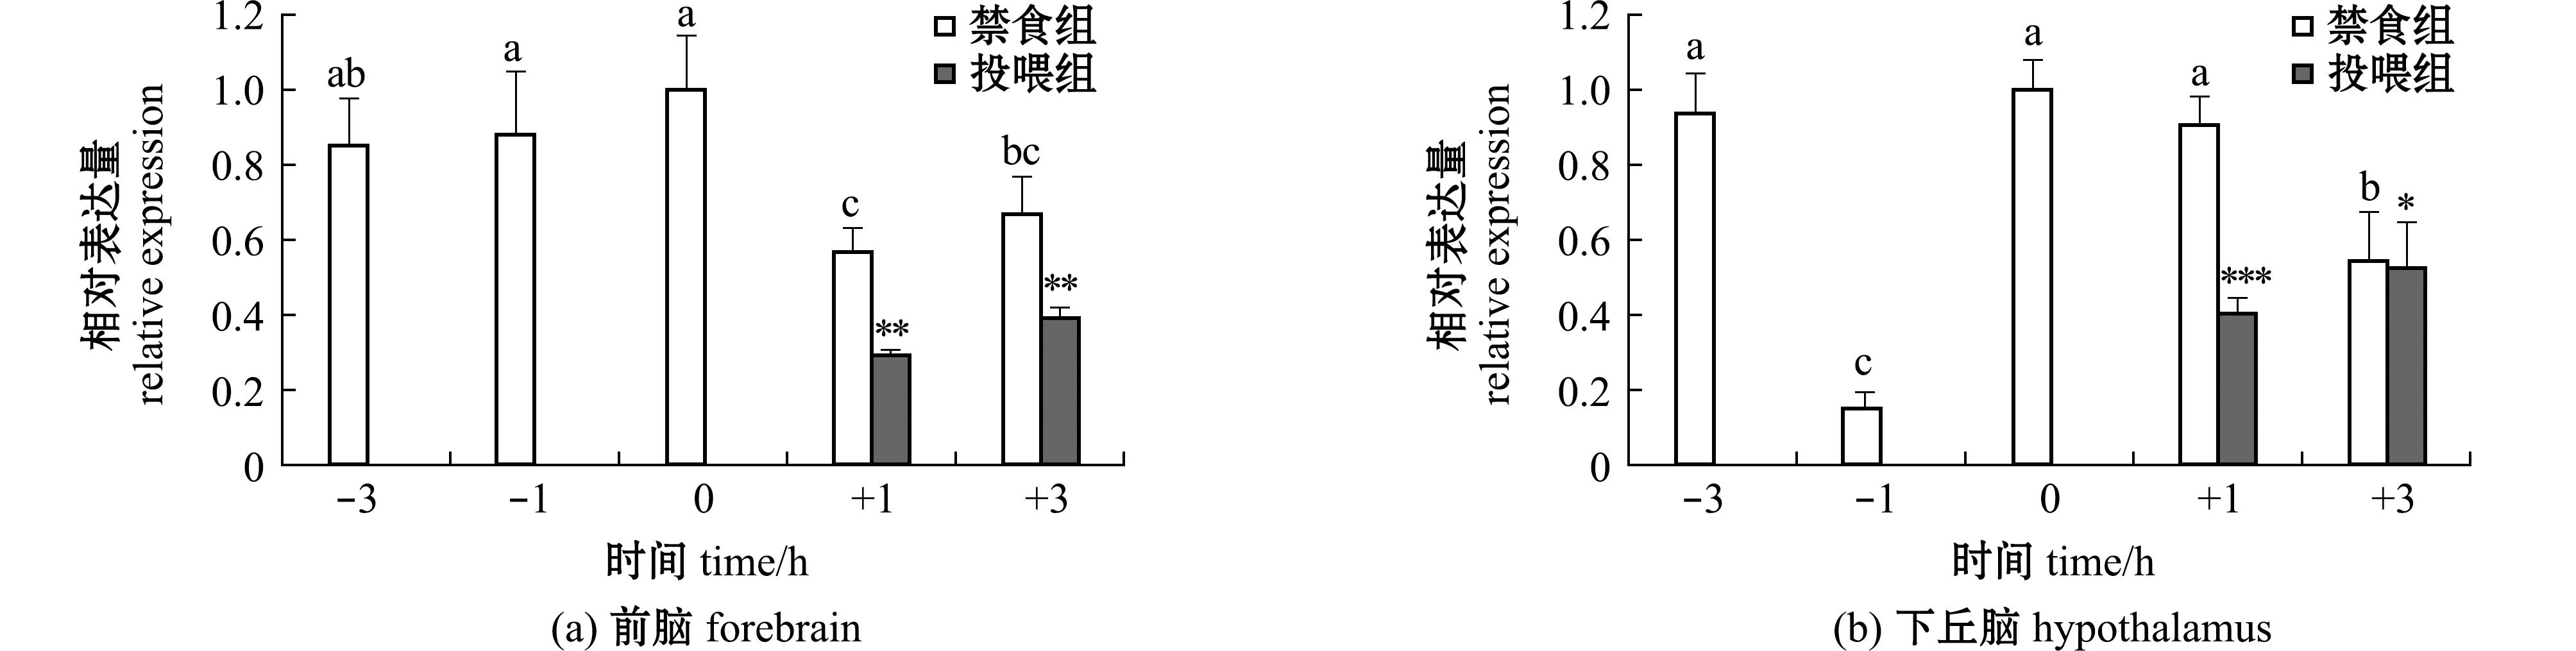
*表示同一时间点投喂组与禁食组间存在显著性差异(*表示P<0.05,**表示P<0.01,***表示P<0.001);不同字母代表禁食组不同时间点存在显著性差异(P<0.05),下同。
* means significant differences between the fed group and fasting group at the same time point(*means P<0.05,**means P<0.01,***means P<0.001);Different letters indicate significant difference among fasting groups in different time points (P<0.05),et sequentia.
图5 摄食对西伯利亚鲟组织中orexin-like表达量的影响
Fig.5 Effect of feeding on orexin-like mRNA expression in tissues of Acipenser baerii
2.5 禁食对orexin-like基因表达量的影响
禁食1 d和7 d后,西伯利亚鲟前脑orexin-like表达量均显著升高(P<0.01,图6(a))。类似地,下丘脑orexin-like表达量在禁食1 d和7 d后也显著升高(P<0.05,图6(b))。
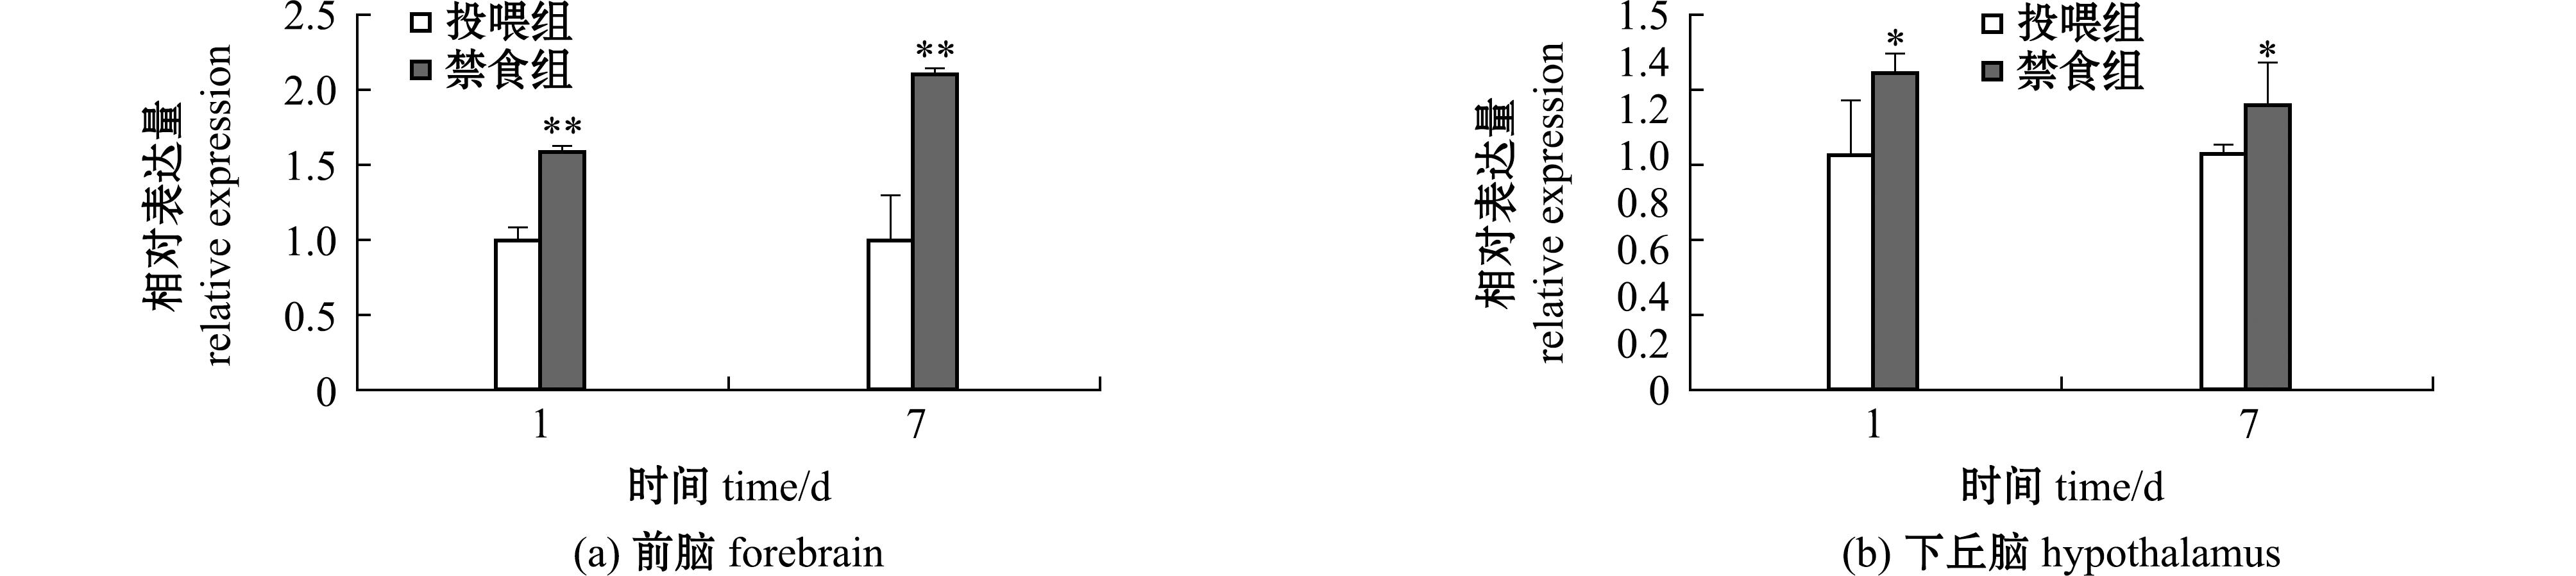
图6 禁食对西伯利亚鲟组织中orexin-like表达量的影响
Fig.6 Effect of fasting on the expression of orexin-like in tissues of Acipenser baerii
2.6 腹腔注射orexin-like成熟肽对摄食量的影响
与PBS对照组相比,西伯利亚鲟腹腔注射200 ng/g BW orexin-like成熟肽能显著提高1 h后摄食量(P<0.05),而注射400 ng/g BW orexin-like成熟肽后显著降低1 h后摄食量。腹腔注射剂量分别为100、200、400 ng/g BW均能显著提高3 h后和6 h后累计摄食量(图7)。
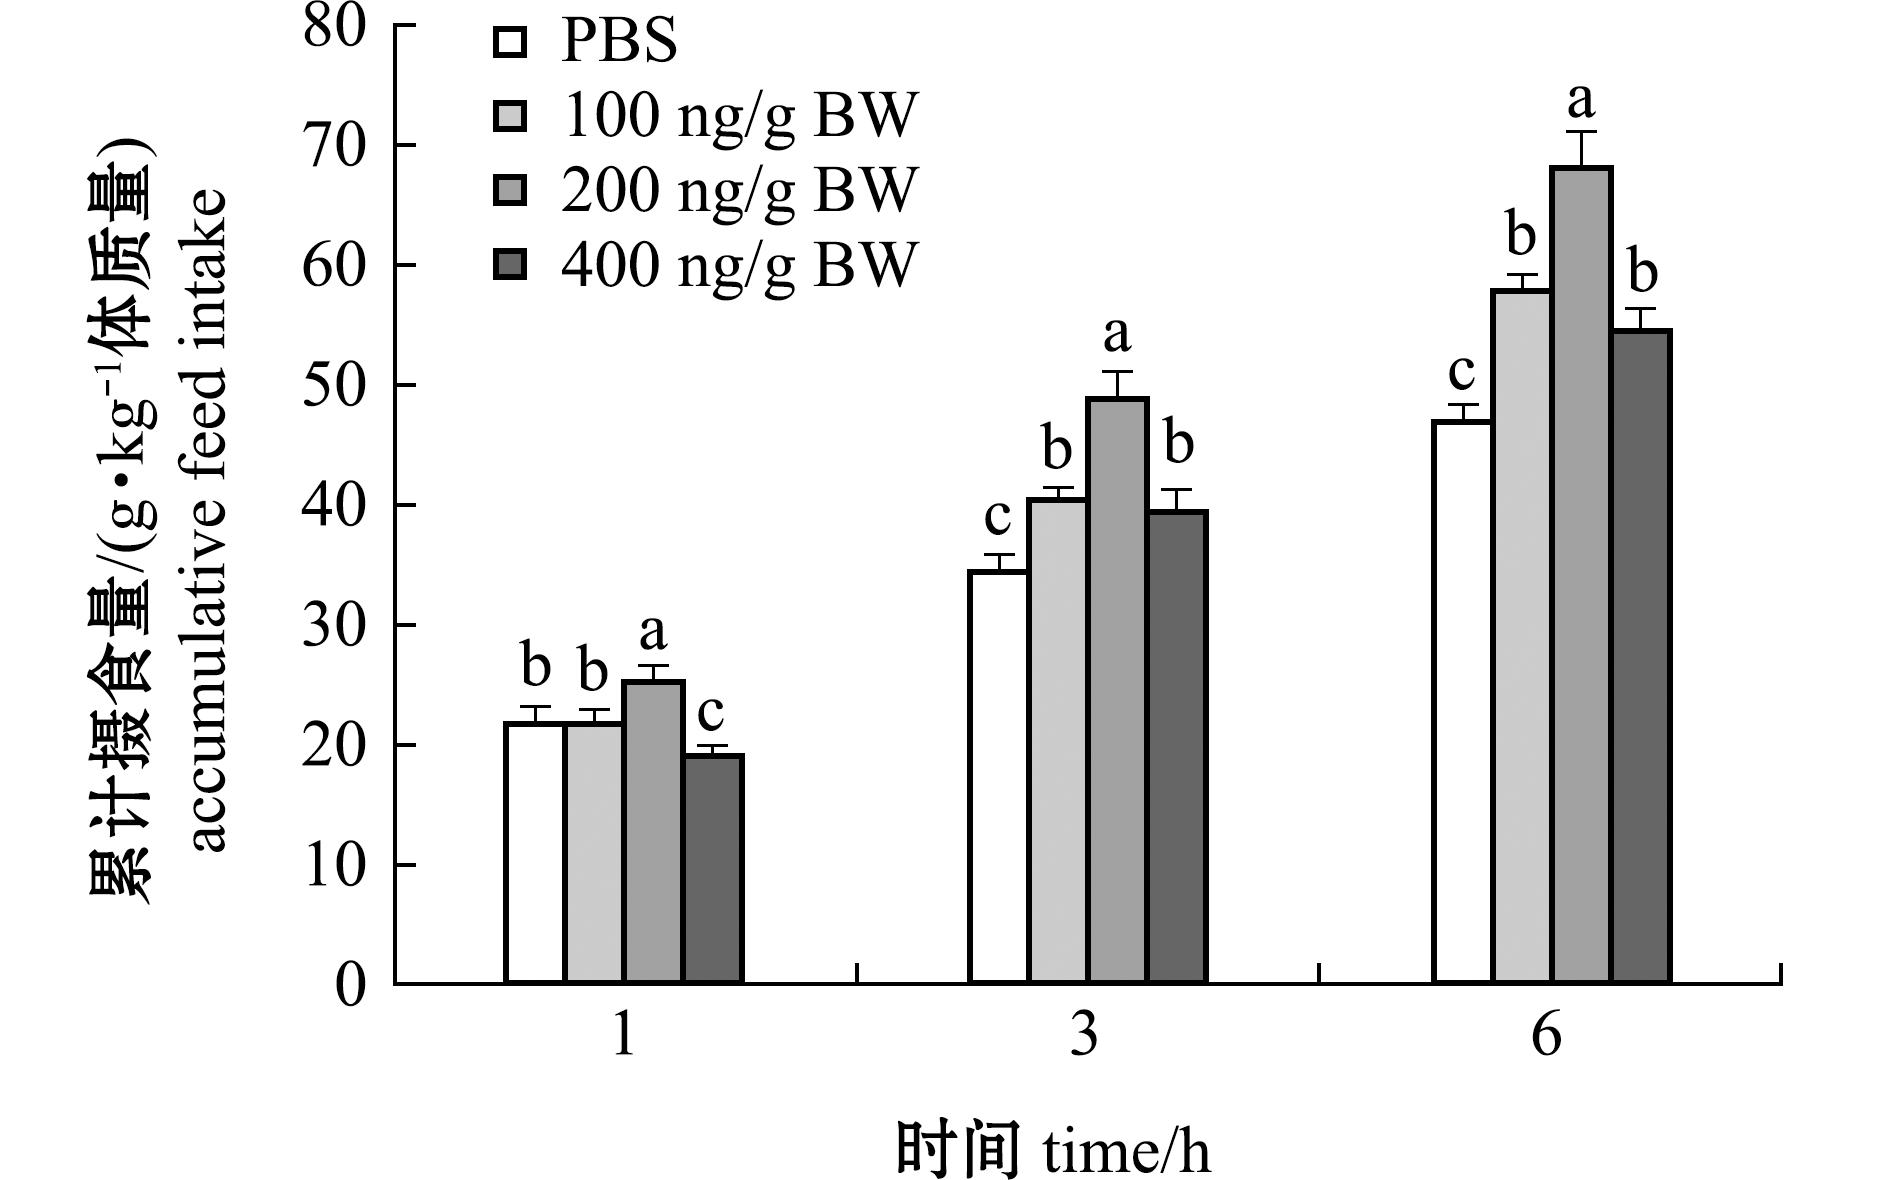
图7 腹腔注射不同剂量orexin-like成熟肽不同时间后对西伯利亚鲟摄食量的影响
Fig.7 Effect of different dose of orexin-like mature peptide injected on accumulative feed intake by Acipenser baerii at different time
2.7 腹腔注射orexin-like成熟肽对食欲因子表达量的影响
为了探究orexin-like调控西伯利亚鲟摄食的食欲机制,本研究中检测了腹腔注射有效剂量orexin-like成熟肽1 h后西伯利亚鲟脑区(前脑、下丘脑)和胃肠道(胃、瓣肠)中食欲调节基因表达量的变化。结果显示,腹腔注射orexin-like成熟肽能显著抑制下丘脑pomc、cart、npy和agrp基因表达(图8(a))。然而,前脑pomc、agrp和npy基因表达量显著上调,cart基因表达无显著性变化(图8(b))。此外,与PBS对照组相比,腹腔注射orexin-like成熟肽不影响胃中ghrelin基因表达量,但显著抑制瓣肠cck基因表达量(图8(c)~(d))。
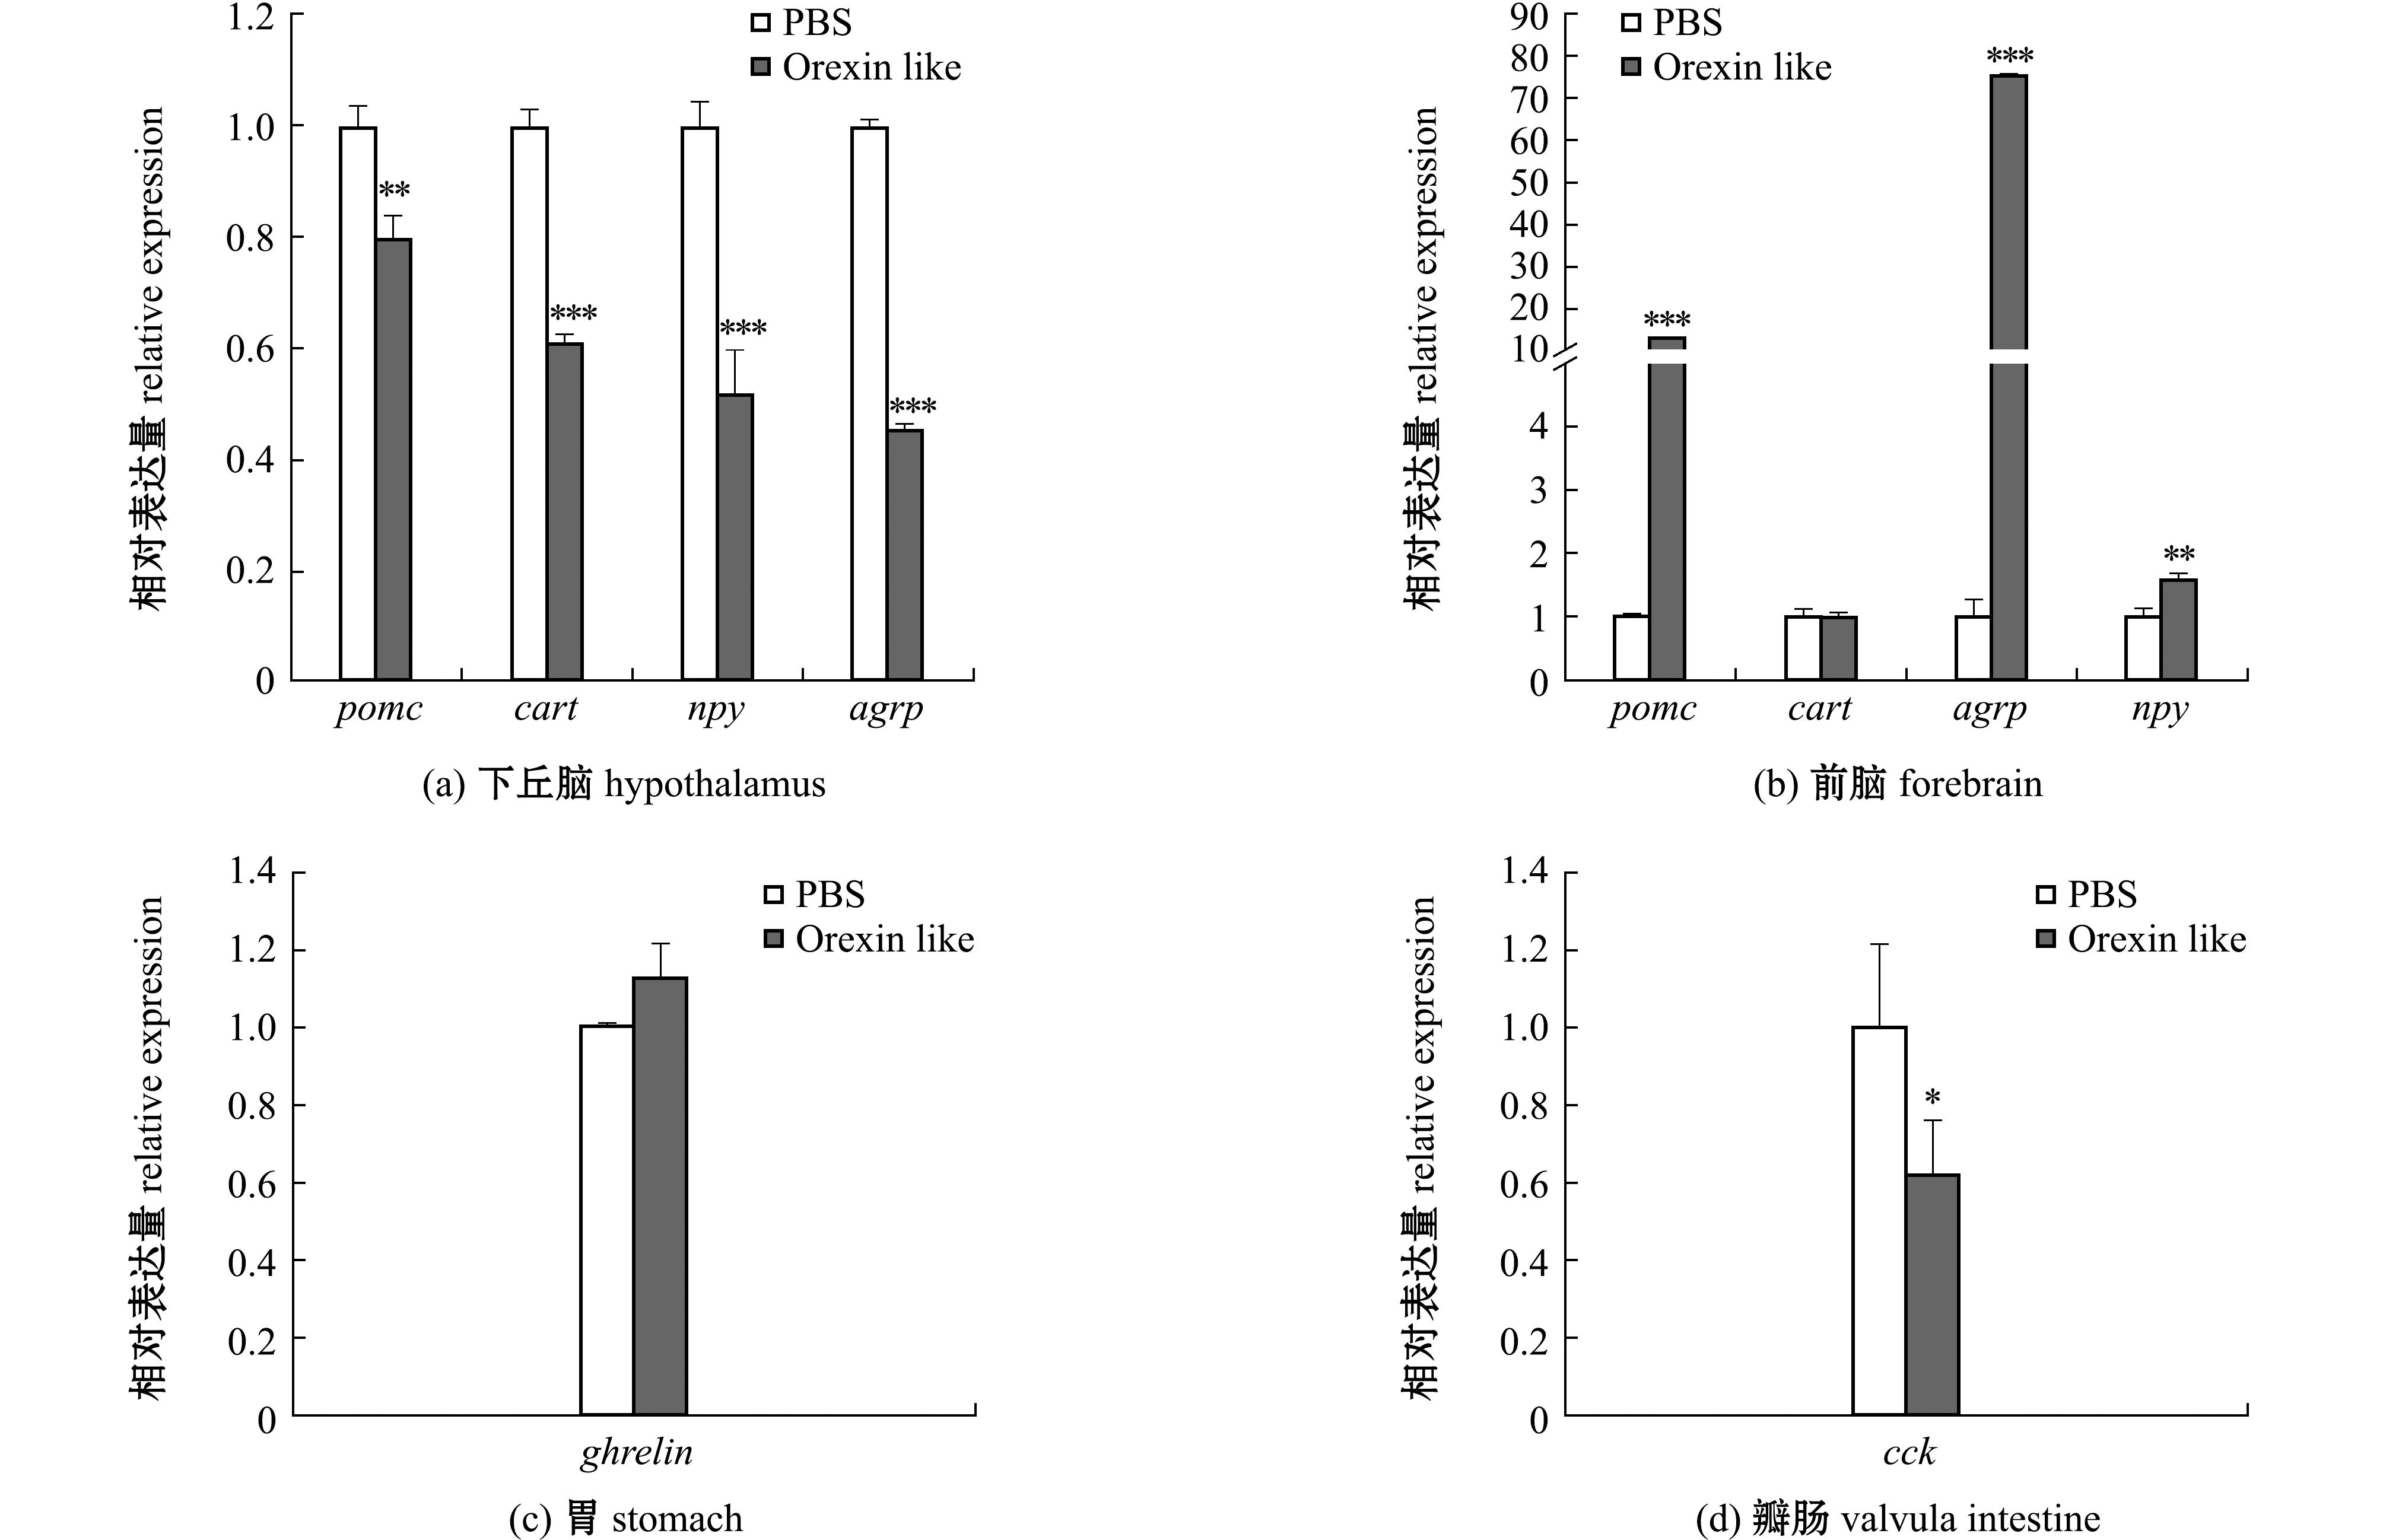
图8 腹腔注射orexin like成熟肽对食欲因子表达的影响
Fig.8 Effect of intraperitoneal injection of orexin-like mature peptides on the expression of appetite factors
3 讨论
3.1 Orexin-like基因结构特征
本研究中首次克隆获得了西伯利亚鲟orexin-like基因cDNA全长,序列分析表明,该基因编码的前体蛋白含39个氨基酸信号肽及31个氨基酸的类似orexin-A成熟肽段,未发现orexin-B同源结构域。这一结构特征与已报道的硬骨鱼orexin基因存在显著性差异。在硬骨鱼中,orexin前体蛋白普遍包含信号肽、orexin-A及orexin-B结构域。如大西洋鳕orexin前体蛋白包含38个氨基酸的信号肽、50个氨基酸的orexin-A和29个氨基酸的orexin-B[11]。条斑星鲽orexin前体蛋白含43个氨基酸的orexin-A和28个氨基酸的orexin-B[13]。斜带石斑鱼orexin前体蛋白则包含46个氨基酸的信号肽、43个氨基酸的orexin-A和27个氨基酸的orexin-B[12]。此外,河豚、金鱼、斑马鱼和鲤的orexin-A成熟肽段在第24~25位氨基酸间插入了额外的氨基酸序列,长度分别达到43、47、50、47个氨基酸[2,17]。而西伯利亚鲟orexin-like基因无orexin-B结构域且orexin-A无额外氨基酸插入,这一特征更接近哺乳动物orexin基因,与系统进化分析中西伯利亚鲟orexin-like与哺乳动物orexin关系更近的结果一致,暗示鲟形目orexin基因可能保留了脊椎动物orexin家族的原始结构特征,为研究orexin基因的演化提供了关键线索。
3.2 Orexin-like组织分布
在西伯利亚鲟幼鱼中,orexin-like基因在前脑中表达量最高,而下丘脑中的表达水平相对较低,这与硬骨鱼类的orexin组织分布模式存在明显差异。在尼罗罗非鱼中,orexin mRNA在下丘脑丰富表达,中脑次之[10]。大西洋鳕orexin mRNA在下丘脑、端脑和嗅球丰富表达[11]。鲤、斜带石斑鱼和条斑星鲽的orexin在下丘脑丰富表达[12-13,17]。慈鲷(Cichlasoma dimerus)orexin免疫活性的细胞分布于视前区与下丘脑[24]。然而,在哺乳动物中,orexin-A免疫反应阳性细胞体仅局限于下丘脑外侧区与眶旁核[25]。西伯利亚鲟orexin-like基因的前脑高表达模式,可能与其进化地位及摄食调控相关。前脑作为脊椎动物能量稳态及奖赏行为调控的核心区域,其高表达的orexin-like可能通过调控摄食动机与奖赏反应参与摄食行为调节,有待后续进一步探究。
3.3 Orexin-like对营养状态响应
鱼类的摄食行为及食欲调节机制显著受其自身饥饿状态、繁殖周期及所处环境等多重因素影响[26]。本研究中发现,西伯利亚鲟摄食后1 h前脑与下丘脑orexin-like mRNA表达量显著下降,而禁食1 d和7 d后表达量显著上调,该响应特征与哺乳动物及硬骨鱼类orexin基因表达规律类似。在哺乳动物中,成年大鼠禁食48 h后下丘脑orexin mRNA水平显著上升[27],且禁食时间延长可通过调节orexin神经元的突触前谷氨酸释放,实现能量保存与觅食驱动的动态平衡[28]。在硬骨鱼类中,尼罗罗非鱼禁食2~8 d后下丘脑orexin表达显著高于投喂组[10]。大西洋鳕摄食后2 h前脑orexin表达量均显著低于摄食前[11]。条斑星鲽禁食14 d后orexin表达显著上调[13]。上述结果表明,orexin作为促食欲信号分子,其“禁食诱导、摄食抑制”的表达特征在脊椎动物中十分保守,西伯利亚鲟orexin-like基因可能同样通过这种类似的表达模式参与饥饿状态下的觅食行为驱动。
3.4 Orexin-like调控摄食
为探究西伯利亚鲟orexin-like的摄食调控功能,本研究中通过腹腔注射不同剂量orexin-like成熟肽,发现剂量为200 ng/g BW可显著促进1 h摄食,100、200、400 ng/g BW剂量均能显著提升3 h和6 h累积摄食量。这一结果与其他物种的研究结果类似。如大鼠下丘脑室旁核注射orexin-A可显著提升3 h摄食量并加速胃排空[29]。金鱼脑室注射orexin-A或orexin-B可促进摄食[30]。斑马鱼侧脑室注射orexin-A能显著提高注射后15~60 min摄食量[20]。孔雀锦鱼(Thalassoma pavo)腹腔注射orexin-A(100 ng/g BW)后能促进24、48、96 h的摄食量[31]。洞穴鱼腹腔注射orexin-A(100 ng/g BW)能显著提高30 min摄食量[32]。以上结果表明,西伯利亚鲟orexin-like成熟肽具有类似于orexin-A促进摄食的功能。值得注意的是,本研究中400 ng/g BW orexin-like注射后1 h摄食量显著低于对照组,存在“高剂量抑制”效应,这一现象在鱼类orexin研究中较为罕见,推测其可能与高剂量orexin-A激活应激反应或受体脱敏有关,具体机制需进一步探究。
为了进一步解析orexin-like调控西伯利亚鲟摄食的分子机制,本研究中分析了腹腔注射orexin-like成熟肽对中枢与外周食欲因子表达的影响。研究结果显示,腹腔注射orexin-like成熟肽能显著抑制pomc、cart、npy和agrp表达。下丘脑NPY/AgRP和POMC/CART系统是脊椎动物摄食调控的核心通路[33]。尽管目前缺乏orexin-like调控摄食的研究报道,但其他硬骨鱼中已表明,orexin-A能上调下丘脑促食欲因子表达,如在斜带石斑鱼中,腹腔注射orexin-A能显著提高下丘脑npy表达量[12]。金鱼注射orexin-A可上调下丘脑npy mRNA[34]。然而,本研究中下丘脑促食欲和抑食欲基因同时下调的现象,提示orexin-like可能通过作用于其他靶器官调控食欲。值得注意的是,本研究发现,orexin-like成熟肽能显著上调前脑agrp、npy和pomc表达,但不影响cart表达。orexin-like在西伯利亚鲟前脑中呈现出相反的调控模式,能够显著上调pomc、agrp与npy基因的表达,表现出明显的脑区特异性。前脑在脊椎动物中调控能量稳态与奖赏行为的功能,orexin纤维可投射至基底前脑并与胆碱能神经元形成突触连接,通过OX1R调节胆碱能递质释放,影响嗅觉辨别、注意力及摄食动机[35-37]。本研究中前脑促食欲基因的上调,可能是通过激活前脑奖赏系统,增强摄食动机与食物寻求行为的分子体现,这与前文orexin-like在西伯利亚鲟前脑丰富表达的特征相呼应,暗示西伯利亚鲟orexin-like可能与通过中枢多脑区协同调控摄食有关。
摄食行为不仅受中枢神经系统调控,也受到一系列外周激素的精密调节。其中,CCK是由肠道Ⅰ细胞分泌的抑食欲激素,ghrelin是由胃泌酸腺X/A样细胞分泌的促食欲激素,二者在鱼类摄食调控中的功能保守[38]。已有研究证实,腹腔注射CCK可显著降低西伯利亚鲟摄食量,而注射ghrelin可显著促进西伯利亚鲟摄食[39-40]。本研究中腹腔注射orexin-like成熟肽对瓣肠cck表达的抑制作用,与大鼠orexin-A可逆转CCK抑制摄食的作用效应类似[41]。由上可知,西伯利亚鲟orexin-like成熟肽可通过前脑和瓣肠食欲激素的双重途径发挥促食欲作用。其对ghrelin无显著性影响,可能是由于ghrelin主要响应长期饥饿信号,而本研究采样时间为注射后1 h,未来将进一步探究orexin-like调控摄食的长期效应。
4 结论
1)本研究中克隆获得西伯利亚鲟orexin-like基因cDNA全长,其编码序列含类似orexin-A的orexin-like成熟肽区域,但无orexin-B同源结构域。
2)Orexin-like基因在西伯利亚鲟幼鱼前脑高表达,摄食后表达量显著降低,禁食则促进其表达,提示其可能参与摄食调控。
3)腹腔注射orexin-like成熟肽可促进西伯利亚鲟摄食。
4)本研究中鉴定的成熟肽有助于提高摄食量,后续将进一步探究其食欲调控机制及在鲟养殖生产中的应用。
[1] MOHAMMADKHANI A,MITCHELL C,JAMES M H,et al.Contribution of hypothalamic orexin (hypocretin) circuits to pathologies of motivation[J].British Journal of Pharmacology,2024,181(22):4430-4449.
[2] SOYA S,SAKURAI T.Evolution of orexin neuropeptide system:structure and function[J].Frontiers in Neuroscience,2020,14:691.
[3] YAMADA H,OKUMURA T,MOTOMURA W,et al.Inhibition of food intake by central injection of anti-orexin antibody in fasted rats[J].Biochemical and Biophysical Research Communications,2000,267(2):527-531.
[4] CHEN L H,TIAN R,WEI S Q,et al.Activation of orexin receptor 2 plays anxiolytic effect in male mice[J].Brain Research,2025,1859:149646.
[5] 陈颖,郭菲菲,孙向荣,等.Orexins对小鼠摄食和能量代谢的影响[J].现代生物医学进展,2017,17(26):5038-5042,5078.CHEN Y,GUO F F,SUN X R,et al.Effects of orexins on feeding and energy metabolism in mice[J].Progress in Modern Biomedicine,2017,17(26):5038-5042,5078.(in Chinese)
[6] NAKAJO H,CHOU M Y,KINOSHITA M,et al.Hungerpotentiates the habenular winner pathway for social conflict by orexin-promoted biased alternative splicing of the AMPA receptor gene[J].Cell Reports,2020,31(12):107790.
[7] ALVAREZ C E,SUTCLIFFE J G.Hypocretin is an early member of the incretin gene family[J].Neuroscience Letters,2002,324(3):169-172.
[8] MIURA T,MARUYAMA K,SHIMAKURA SI,et al.Regulation of food intake in the goldfish by interaction between ghrelin and orexin[J].Peptides,2007,28(6):1207-1213.
[9] KASLIN J,NYSTEDT J M,OSTERGÅRD M,et al.The orexin/hypocretin system in zebrafish is connected to the aminergic and cholinergic systems[J].The Journal of Neuroscience,2004,24(11):2678-2689.
[10] 陈文波,王鑫,周雅璐,等.尼罗罗非鱼Orexin前体基因的克隆、组织分布及其在摄食调控中的表达[J].动物学研究,2011,32(3):285-292.CHEN W B,WANG X,ZHOU Y L,et al.Molecular cloning,tissue distribution and the expression in the regulation of food intake of prepro-orexin in Nile tilapia (Oreochromis niloticus)[J].Zoological Research,2011,32(3):285-292.(in Chinese)
[11] XU M Y,VOLKOFF H.Molecular characterization of prepro-orexin in Atlantic cod (Gadus morhua):cloning,localization,developmental profile and role in food intake regulation[J].Molecular and Cellular Endocrinology,2007,271(1/2):28-37.
[12] YAN A F,ZHANG L,TANG Z G,et al.Orange-spotted grouper (Epinephelus coioides) orexin:molecular cloning,tissue expression,ontogeny,daily rhythm and regulation of NPY gene expression[J].Peptides,2011,32(7):1363-1370.
[13] AMIYA N,MIZUSAWA K,KOBAYASHI Y,et al.Food deprivation increases the expression of the prepro-orexin gene in the hypothalamus of the barfin flounder,Verasper moseri[J].Zoological Science,2012,29(1):43-48.
[14] BUCKLEY C,MACDONALD E E,TUZIAK S M,et al.Molecular cloning and characterization of two putative appetite regulators in winter flounder (Pleuronectes americanus):preprothyrotropin-releasing hormone (TRH) and preproorexin (OX)[J].Peptides,2010,31(9):1737-1747.
[15] 李斌,徐永江,柳学周,等.半滑舌鳎食欲素A体外重组表达及活性分析[J].水产学报,2016,40(9):1462-1471.LI B,XU Y J,LIU X Z,et al.Prokaryotic expression and bioactivity analysis of orexin A from Cynoglossus semilaevis[J].Journal of Fisheries of China,2016,40(9):1462-1471.(in Chinese)
[16] VARRICCHIO E,RUSSO F,COCCIA E,et al.The orexinergic system in rainbow trout Oncorhynchus mykiss and its regulation by dietary lipids[J].Microscopy Research and Technique,2015,78(8):707-714.
[17] YANG L P,ZHI S Y,HU J Y,et al.Common carp (Cyprinus carpio) orexin:molecular identification,tissue expression,and the role of Orexin-a in glucose metabolism[J].Aquaculture Reports,2020,18:100528.
[18] NAKAMACHI T,SHIBATA H,SAKASHITA A,et al.OrexinA enhances locomotor activity and induces anxiogenic-like action in the goldfish,Carassius auratus[J].Hormones and Behavior,2014,66(2):317-323.
[19] NAKAMACHI T,MATSUDA K,MARUYAMA K,et al.Regulation by orexin of feeding behaviour and locomotor activity in the goldfish[J].Journal of Neuroendocrinology,2006,18(4):290-297.
[20] YOKOBORI E,KOJIMA K,AZUMA M,et al.Stimulatory effect of intracerebroventricular administration of orexin A on food intake in the zebrafish,Danio rerio[J].Peptides,2011,32(7):1357-1362.
[21] GOUDA M,GANESH C B.Regulation of the gut-brain-pituitary-gonad axis in tilapia:evidence for the involvement of orexin[J].Neuropeptides,2025,111:102525.
[22] RAJKOV J,SHAO Z J,BERREBI P.Evolution of polyploidy and functional diploidization in sturgeons:microsatellite analysis in 10 sturgeon species[J].The Journal of Heredity,2014,105(4):521-531.
[23] SHEN L,SHI Y,ZOU Y C,et al.Sturgeon aquaculture in China:status,challenge and proposals based on nation-wide surveys of 2010-2012[J].Journal of Applied Ichthyology,2014,30(6):1547-1551.
[24] P REZ SIRKIN D I,SUZUKI H,C
 NEPA M M,et al.Orexin and neuropeptide Y:tissue specific expression and immunoreactivity in the hypothalamus and preoptic area of the cichlid fish Cichlasoma Dimerus[J].Tissue and Cell,2013,45(6):452-459.
[25] CUTLER D J,MORRIS R,SHERIDHAR V,et al.Differential distribution of orexin-A and orexin-B immunoreactivity in the rat brain and spinal cord[J].Peptides,1999,20(12):1455-1470.
[26] SNCHEZ-VELZQUEZ J,PE A-HERREJ
 N G A,AGUIRRE-BECERRA H.Fish responses to alternative feeding ingredients under abiotic chronic stress[J].Animals,2024,14(5):765.
[27] SAKURAI T,AMEMIYA A,ISHII M,et al.Orexins and orexin receptors:a family of hypothalamic neuropeptides and G protein-coupled receptors that regulate feeding behavior[J].Cell,1998,92(4):573-585.
[28] LINEHAN V,HIRASAWA M.Short-termfasting induces alternate activation of orexin and melanin-concentrating hormone neurons in rats[J].Neuroscience,2022,491:156-165.
[29] 王金鹏,王咪,郭菲菲,等.下丘脑室旁核orexin-A对大鼠摄食和胃动力影响及调控机制[J].现代生物医学进展,2018,18(14):2647-2651,2646.WANG J P,WANG M,GUO F F,et al.Effects of orexin-A on the feeding and gastric motility of rats in paraventricular nucleus and its regulatory mechanism[J].Progress in Modern Biomedicine,2018,18(14):2647-2651,2646.(in Chinese)
[30] VOLKOFF H,BJORKLUND J M,PETER R E.Stimulation of feeding behavior and food consumption in the goldfish,Carassius auratus,by orexin-A and orexin-B[J].Brain Research,1999,846(2):204-209.
[31] FACCIOLO R M,CRUDO M,GIUSI G,et al.Light- and dark-dependent orexinergic neuronal signals promote neurodegenerative phenomena accounting for distinct behavioral responses in the teleost Thalassoma pavo[J].Journal of Neuroscience Research,2009,87(3):748-757.
[32] PENNEY C C,VOLKOFF H.Peripheral injections of cholecystokinin,apelin,ghrelin and orexin in cavefish (Astyanax fasciatus Mexicanus):effects on feeding and on the brain expression levels of tyrosine hydroxylase,mechanistic target of rapamycin and appetite-related hormones[J].General and Comparative Endocrinology,2014,196:34-40.
[33] SI R R,PAN D,WANG Z X,et al.Regulation of the central melanocortin system on energy balance in mammals and birds[J].Neuropeptides,2022,95:102267.
[34] VOLKOFF H,PETER R E.Interactions between orexin A,NPY and galanin in the control of food intake of the goldfish,Carassius auratus[J].Regulatory Peptides,2001,101(1/2/3):59-72.
[35] ARRIGONI E,MOCHIZUKI T,SCAMMELL T E.Activation of the basal forebrain by the orexin/hypocretin neurones[J].ActaPhysiologica,2010,198(3):223-235.
[36] PIANTADOSI P T,HOLMES A,ROBERTS B M,et al.Orexin receptor activity in the basal forebrain alters performance on an olfactory discrimination task[J].Brain Research,2015,1594:215-222.
[37] ZAJO K N,FADEL J R,BURK J A.Orexin A-induced enhancement of attentional processing in rats:role of basal forebrain neurons[J].Psychopharmacology,2016,233(4):639-647.
[38] HONG S H,CHOI K M.Gut hormones and appetite regulation[J].Current Opinion in Endocrinology,Diabetes,and Obesity,2024,31(3):115-121.
[39] CHEN D F,LI Y Z,WU H W,et al.Ghrelin-Ghrelin receptor (GSHR) pathway via endocannabinoid signal affects the expression of NPY to promote the food intake of Siberian sturgeon (Acipenser baerii)[J].Hormones and Behavior,2022,143:105199.
[40] ZHANG X,TANG N,QI J W,et al.CCK reduces the food intake mainly through CCK1R in Siberian sturgeon (Acipenser baerii Brandt)[J].Scientific Reports,2017,7:12413.
[41] WILLIAMS D L,COIDURASI I,PARISE E M,et al.Hindbrain orexin 1 receptors blunt intake suppression by gastrointestinal nutrients and cholecystokinin in male rats[J].Peptides,2020,133:170351.