青海湖裸鲤(Gymnocypris przewalskii)俗称“湟鱼”,隶属鲤形目(Cypriniformes)鲤科(Cyprinidae)裂腹鱼亚科(Schizothoracinae)裸鲤属(Gymnocypris)[1],主要栖息在中国最大的内陆咸水湖青海湖(盐度12~14、pH 9.0~9.2),是青海湖中的野生珍稀鱼类,对青海湖生态系统的动态平衡起到重要作用[2]。20世纪50—80年代,由于自然环境的变化和人类活动的干扰,裸鲤资源急剧减少[3-4]。自2001年起,青海省实施全面封湖育鱼政策,实行零捕捞,并建立青海湖裸鲤救护中心,承担青海湖裸鲤人工增殖和放流任务[5],截至2023年8月,青海湖裸鲤的资源量已经恢复至12.03万t,约为保护初期的46倍[6]。目前,青海湖裸鲤已累计放流2.1亿尾,但对其野外资源恢复贡献率仅为26%[7]。为进一步提高人工放流对青海湖裸鲤的资源贡献率,并增强其对青海湖特有环境的适应能力,急需加强其生理抵抗能力,包括抗氧化能力和免疫能力,其中,在放流前的鱼饲料中添加如虾青素等抗氧化物质,有望增强其对氧化应激的抵抗能力,从而提高其整体环境适应性。
虾青素(astaxanthin)是一种广泛存在于水生动物(虾、蟹等甲壳动物)、植物、微藻及真菌中的天然类胡萝卜素[8],作为活性氧淬灭剂和自由基清除剂,拥有强大的抗氧化能力,其分子中的羟基酮和共轭双键能够提供电子或吸引自由基未配对电子,破坏氧化反应链,清除体内自由基,减少机体的氧化损伤[9]。虾青素可增强动物抗氧化防御系统中抗氧化酶的活力,对人和动物的氧化应激具有保护作用[10]。此外,合成虾青素作为一种稳定的外源性类胡萝卜素类饲料添加剂,已广泛应用于水产养殖[11]。饲料中添加虾青素可提高血鹦鹉鱼(Amphilophus citrinellus×Cichlasoma synspilum)、大鳞副泥鳅(Paramisgurnus dabryanus)等鱼类肠道和肝脏的抗氧化能力[12];虹鳟(Oncorhynchus mykiss)饲喂添加虾青素的饲料后,其肌肉、肝脏和血清中的丙二醛水平显著降低,同时羟基自由基的清除能力显著增强[13];此外,斑节对虾(Penaeus monodon)在盐度为32的环境中饲喂虾青素8周后,直接转入淡水中时,虾的恢复率显著高于对照组[14]。这些结果表明,虾青素具有明显的抗氧化作用,并能有效提升水生动物的环境适应能力。在研究Cr(Ⅵ)对斑马鱼(Danio rerio)和红尾蛇头鱼(Channa micropeltes)神经系统损害的过程中,发现虾青素作为一种天然抗氧化剂,在减轻Cr(Ⅵ)引发的毒性作用方面具有潜在的保护作用,虾青素能够显著抑制Cr(Ⅵ)引发的氧化应激反应,有效保护血脑屏障的完整性,从而减轻神经毒性。这表明,虾青素在缓解重金属引起的神经损伤方面具有重要的应用前景[15]。虾青素可增强动物抗氧化防御系统中抗氧化酶的活力,对人和动物的氧化应激具有保护作用[16]。虾青素可以在不破坏细胞膜的基础上,精确地插入并穿过细胞膜,通过Nrf2信号通路激活生物体内源性抗氧化系统,Nrf2信号通路的活化调控GSH等抗氧化酶合成加速,从而起到清除自由基和活性氧,预防机体氧化应激反应的作用[17]。
本研究中探讨了虾青素这类天然抗氧化剂对青海湖裸鲤肝组织的保护作用及机理,有助于更好地阐明虾青素对肝脏组织的生理保护性功能,包括抗氧化、抗炎症和免疫调节等,可为青海湖裸鲤健康发展提供技术支撑,提高其抗逆性的同时确保健康的养殖模式,另一方面也可为水产养殖领域增加一种更具环保性的保护方式,减少化学药物的使用,推动建立更安全、环保的养殖管理方法。
1 材料与方法
1.1 材料
根据前期实验室的研究发现,在青海湖裸鲤幼鱼的基础饲料中添加50 mg/kg虾青素,显著改善了裸鲤的生长性能(特定生长率和增重率)及形态学指标(肝体比、脏体比和肥满度)。因此,本研究在基础饲料中加入0、50 mg/kg虾青素(上海源叶生物科技有限公司,B25542-20 mg,HPLC≥98%),配制成2种试验饲料。
试验用青海湖裸鲤幼鱼由青海湖裸鲤救护中心提供,为同一批繁殖、健康无病的青海湖裸鲤幼鱼。选择体格健壮的裸鲤幼鱼180尾,初质量(20.62±1.15)g,在试验室条件下暂养2周,暂养期间投喂基础饲料。正式试验时,将试验用鱼随机分为2组,每组设置3个重复,每个重复放置30尾鱼,于室内养殖。暂养结束后,2组试验鱼分别投喂虾青素添加量为0 mg/kg(对照,AS0C)和50 mg/kg(AS3C)的试验饲料,持续投喂8周。试验用水为经曝气的自来水,水中溶氧浓度>7 mg/L,pH 6.7~7.4,日投喂量为鱼体质量的3%~5%,根据具体摄食情况进行调节,每天换水1次,换水量为总水量的1/4,饲养期间保持水温为17 ℃±1 ℃。
1.2 方法
1.2.1 样品采集 正式试验结束后,裸鲤幼鱼禁食24 h。从AS0C组和AS3C组中分别随机采集6尾鱼,经丁香酚麻醉后解剖,采集肝脏组织,液氮速冻后带回实验室,置于-80 ℃下保存,用于后续试验。
1.2.2 肝脏转录组学分析 采用Trizol Reagent(15596018CN,Thermo Fisher)提取各组青海湖裸鲤肝脏组织(50 mg)总RNA,利用10 g/L琼脂糖凝胶电泳和Agilent 2100检测RNA样品的完整性,利用Nanodrop 2000检测RNA样品纯度(OD260 nm/OD280 nm),利用Qubit 2.0定量RNA样品的浓度,选择完整性好、纯度高的RNA样品用于后续文库构建。采用NEBNext Ultra RNA Library prep Kit (NEB,USA)进行cDNA文库构建,然后采用Agilent 2100对文库质量进行检测,库检合格后,通过Illumina Hiseq 2500平台[18]进行高通量测序。
1.2.3 qRT-PCR验证 为验证转录组测序结果,从青海省西宁市青海湖裸鲤救护中心取10尾青海湖裸鲤进行验证,利用丁香酚进行麻醉后解剖处理,取其肌肉组织,样品采集分离后立即浸入液氮中速冻后置于-80 ℃超低温冰箱中保存。利用RNA提取试剂盒(TIANGEN,DP419)进行肌肉RNA的提取,利用凝胶电泳、Nanodrop 2000超微量分光光度计和Agilent 2100生物分析系统检测其浓度、纯度和完整性。RNA完整性指数(RIN) >7 的样本用于后续试验。使用反转录试剂盒(TIANGEN,KR106)将RNA逆转录为cDNA。选择筛选出的6个基因进行验证,采用Primer premier 5软件设计引物送至上海生工生物工程技术服务有限公司合成,引物信息见表1。以β-actin作为内参基因,结果采用2-ΔΔCt法计算基因在组织中的相对表达量。
表1 qRT-PCR引物信息
Tab.1 Primer information of qRT-PCR
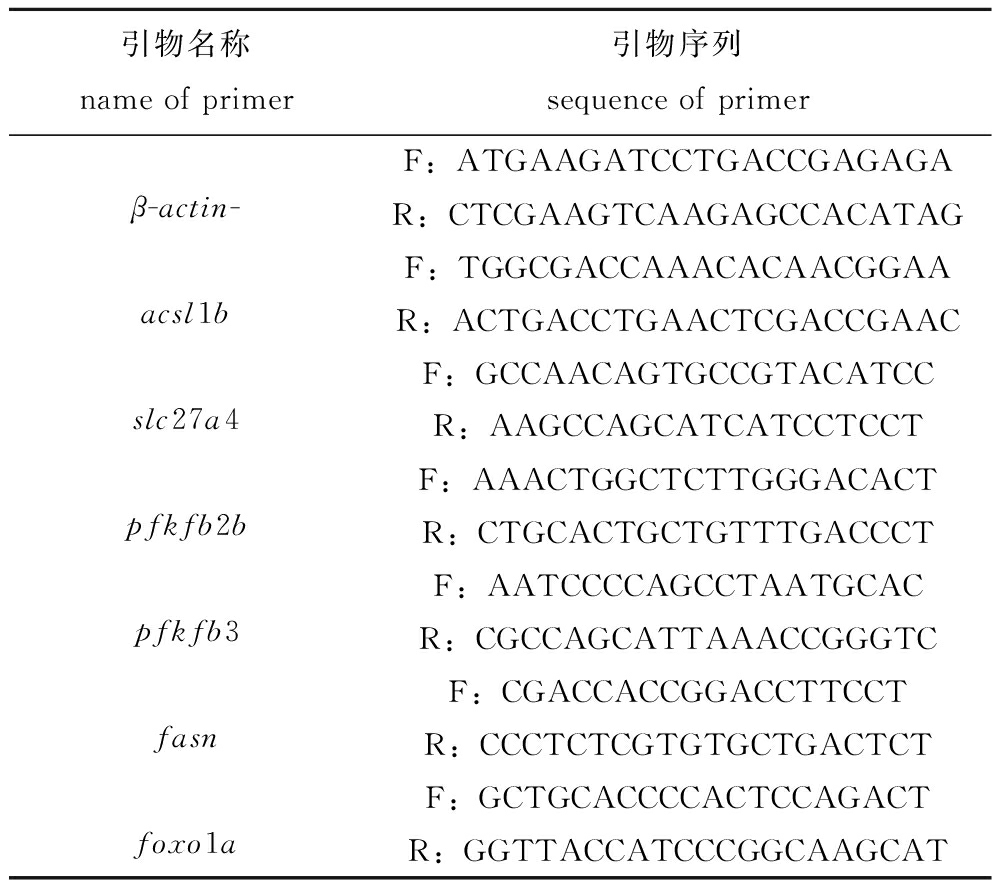
引物名称name of primer引物序列sequence of primerβ-actin-F:ATGAAGATCCTGACCGAGAGAR:CTCGAAGTCAAGAGCCACATAGacsl1bF:TGGCGACCAAACACAACGGAAR:ACTGACCTGAACTCGACCGAACslc27a4F:GCCAACAGTGCCGTACATCCR:AAGCCAGCATCATCCTCCTpfkfb2bF:AAACTGGCTCTTGGGACACTR:CTGCACTGCTGTTTGACCCTpfkfb3F:AATCCCCAGCCTAATGCACR:CGCCAGCATTAAACCGGGTCfasnF:CGACCACCGGACCTTCCTR:CCCTCTCGTGTGCTGACTCTfoxo1aF:GCTGCACCCCACTCCAGACTR:GGTTACCATCCCGGCAAGCAT
1.3 数据处理
对测序原始数据过滤后,使用Trinity软件对序列进行拼接,挑选其中最长的一条参考序列Unigene用于后续分析。使用DESeq2(V1.26.0)进行样品组间的差异表达基因(differentially expressed genes,DEGs)分析,计算差异倍数;以|log2(FC)|≥1且FDR<0.05作为筛选标准。使用R[19]语言中的ggplot2程序包绘制火山图。筛选出差异基因后,对其进行GO和KEGG富集分析,P<0.05为显著富集GO条目或信号通路。将原始数据上传至NCBI数据库,AS0C组为SRR36264303,AS3C组为SRR36264302。
2 结果与分析
2.1 数据质量汇总
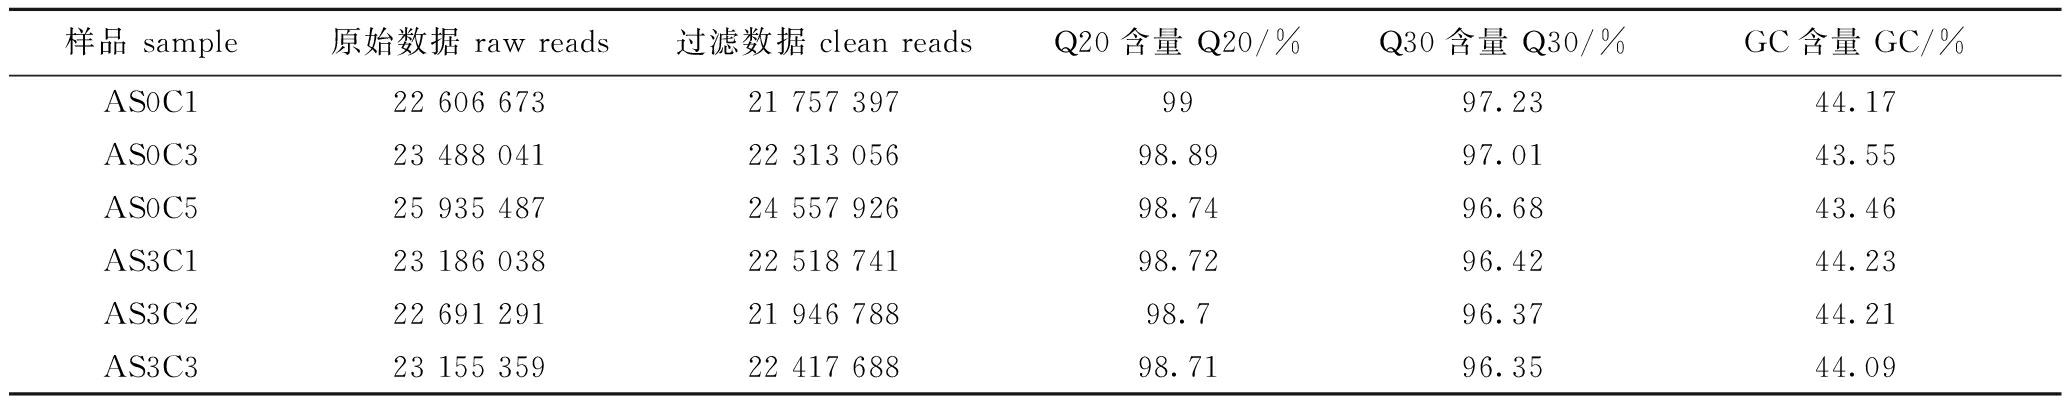
通过汇总6个不同处理组肝脏组织的转录组测序数据,共获得575 154 248 bp原始数据(raw reads),548 874 683 bp 过滤数据(clean reads),所有样本的过滤数据均达到21 757 397 bp及以上。检测6个样本质控序列的碱基分布和测序质量中,GC含量为43.46%~44.23%,Q20值均在98.7%以上,Q30值为均在96.35%以上,表明转录组测序数据良好,适合进行后续的分析与研究(表2)。
表2 测序数据统计表
Tab.2 Sequencing data statistics table
样品 sample原始数据 raw reads过滤数据 clean readsQ20含量 Q20/%Q30含量 Q30/%GC含量 GC/%AS0C122 606 67321 757 3979997.2344.17AS0C323 488 04122 313 05698.8997.0143.55AS0C525 935 48724 557 92698.7496.6843.46AS3C123 186 03822 518 74198.7296.4244.23AS3C222 691 29121 946 78898.796.3744.21AS3C323 155 35922 417 68898.7196.3544.09
注:Q20表示Phred质量值超过20的碱基在全部碱基中所占的比例;Q30表示Phred质量值高于30的碱基占总碱基数的百分比;GC表示过滤数据中G与C占4种碱基的百分比。
Note:Q20 represents the proportion of bases with Phred quality values more than 20 in the total of bases;Q30 refers to the percentage of bases with Phred quality values more than 30 in the total of bases;GC indicates the percentage of G and C among the four types of bases in clean reads.
经鉴定,AS0C组共鉴定到76 824个基因,AS3C组共鉴定到79 206个基因(图1)。在这两个组中,有55 033个基因在两组中均有表达,显示出它们在这两种条件下具有相似的表达模式。同时,AS0C组鉴定了21 791个特异性表达基因,AS3C组则鉴定了24 173个特异性表达基因,表明这两个组在基因表达上存在一定差异。
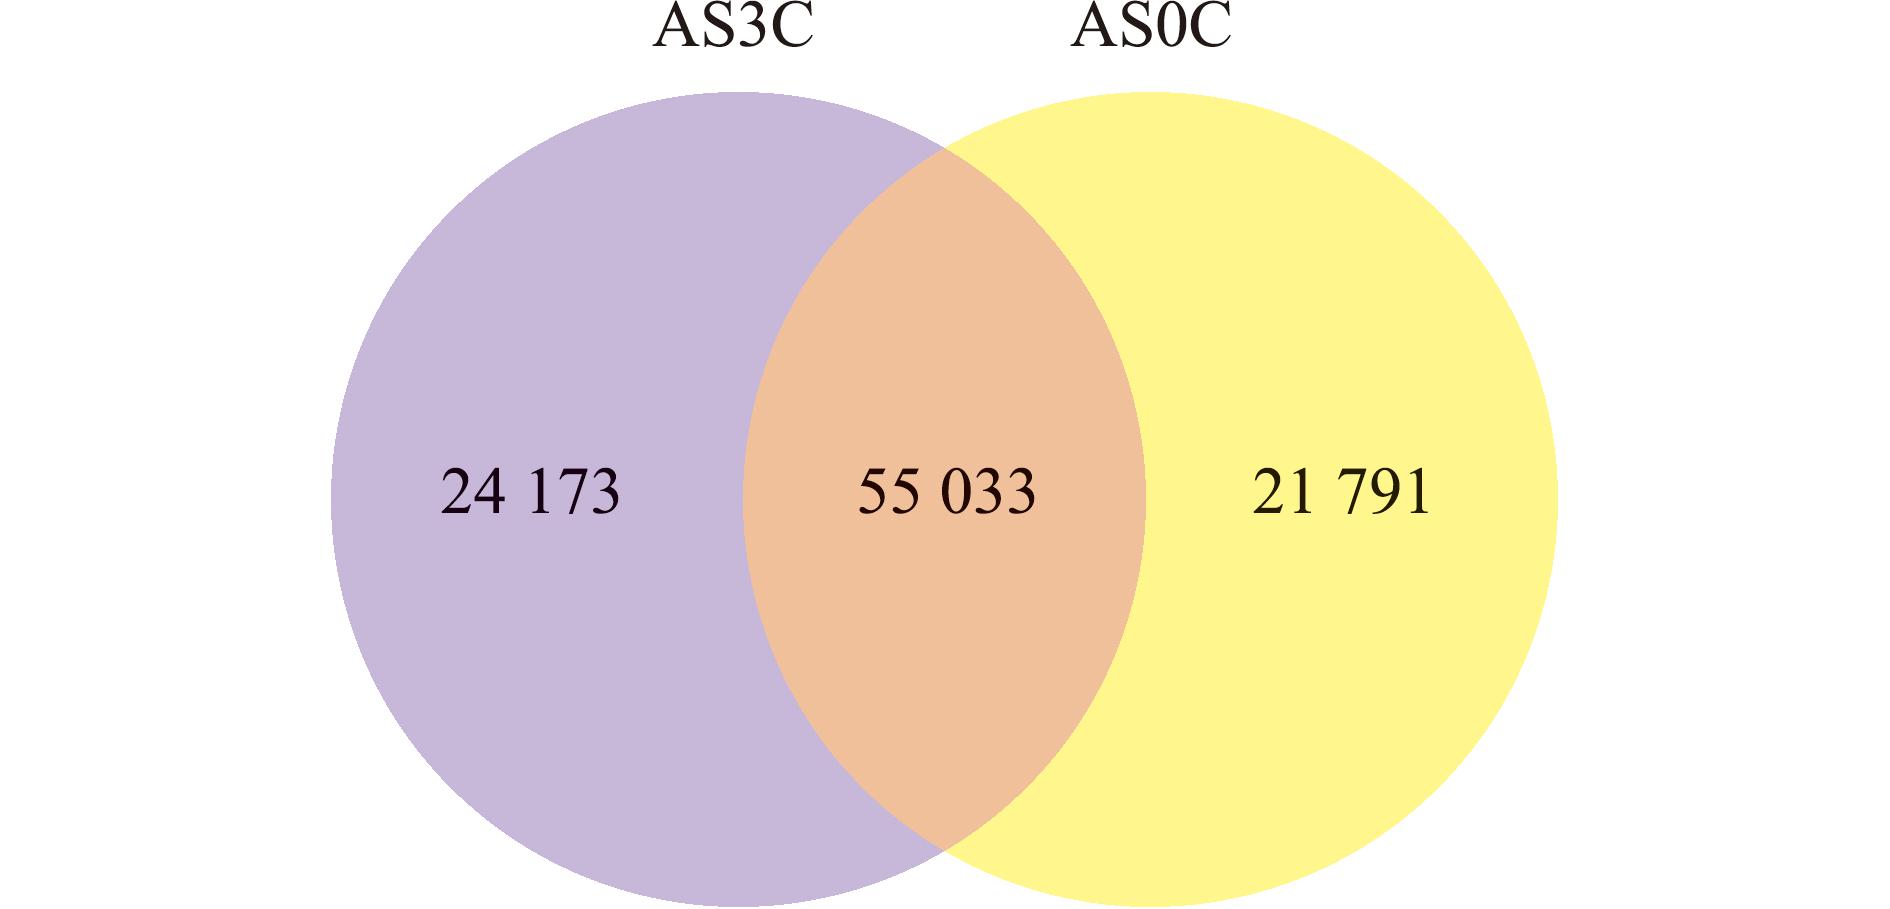
图1 基因表达韦恩图
Fig.1 Gene expression Venn plot
2.2 差异基因表达分析
为了深入探究AS3C组与AS0C组间肝脏组织基因表达的差异,对两组的差异表达基因(DEGs)进行了系统分析。通过筛选共鉴定出4 388个差异表达基因,在这些基因中,有2 571个基因在AS3C组中表达显著上调,有1 817个基因在AS3C组中表达显著下调(P<0.05)。另外有110 602个基因在两组中未出现显著的表达变化(图2)。
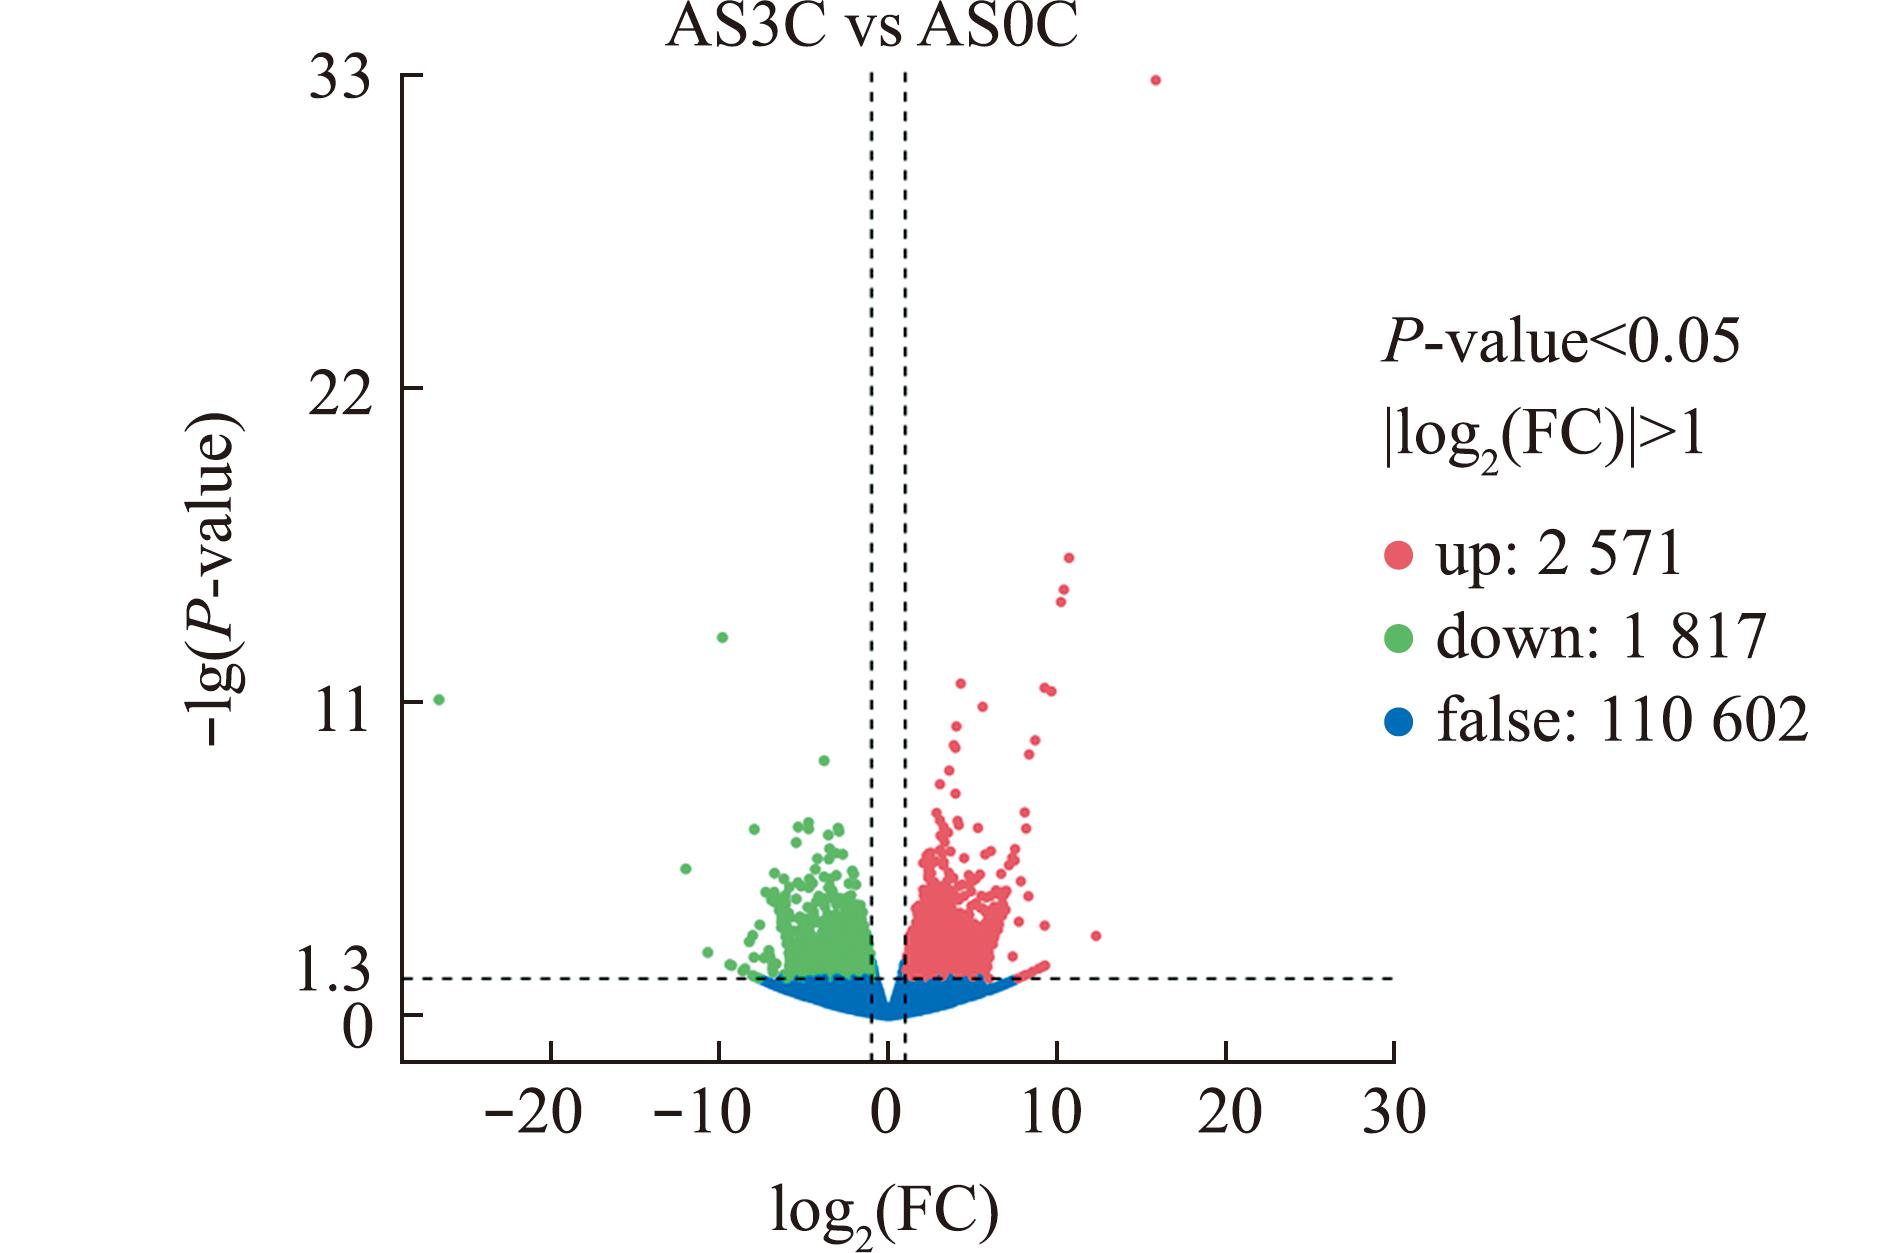
横坐标代表同样品组中的基因表达倍数变化,纵坐标代表基因表达量的变化显著程度,不同颜色表示不同的分类。
The x-axis represents the fold change in gene expression within the same sample group,while the y-axis represents the significance of changes in gene expression.Different colors indicate.
图2 差异基因火山图
Fig.2 Differential gene volcano map
2.3 差异表达基因功能注释
2.3.1 差异表达基因的GO富集 此外,对差异表达基因(DEGs)进行GO富集分析,结果显示,在生物过程分类中,差异表达基因主要富集于“细胞进程”(cellular process)与“代谢进程”(metabolic process),其次涉及“生物调控”(biological regulation)、“生物过程调节”(regulation of biological process)及“定位”(localization)等功能类别;在细胞组分上注释的差异表达基因在“细胞解剖实体”(cellular anatomical entity)、细胞内(intracellular)的DEGs最多,其次是“含蛋白质复合物”(protein-containing complex)等;在分子功能上注释的“结合”(binding)、“催化作用”(catalytic activity)的DEGs最多,其次为“转运活性”(transporter activity)、“分子功能调节剂”(molecular function regulator)、“转录调节因子活性”(transcription regulator activity)等(图3)。
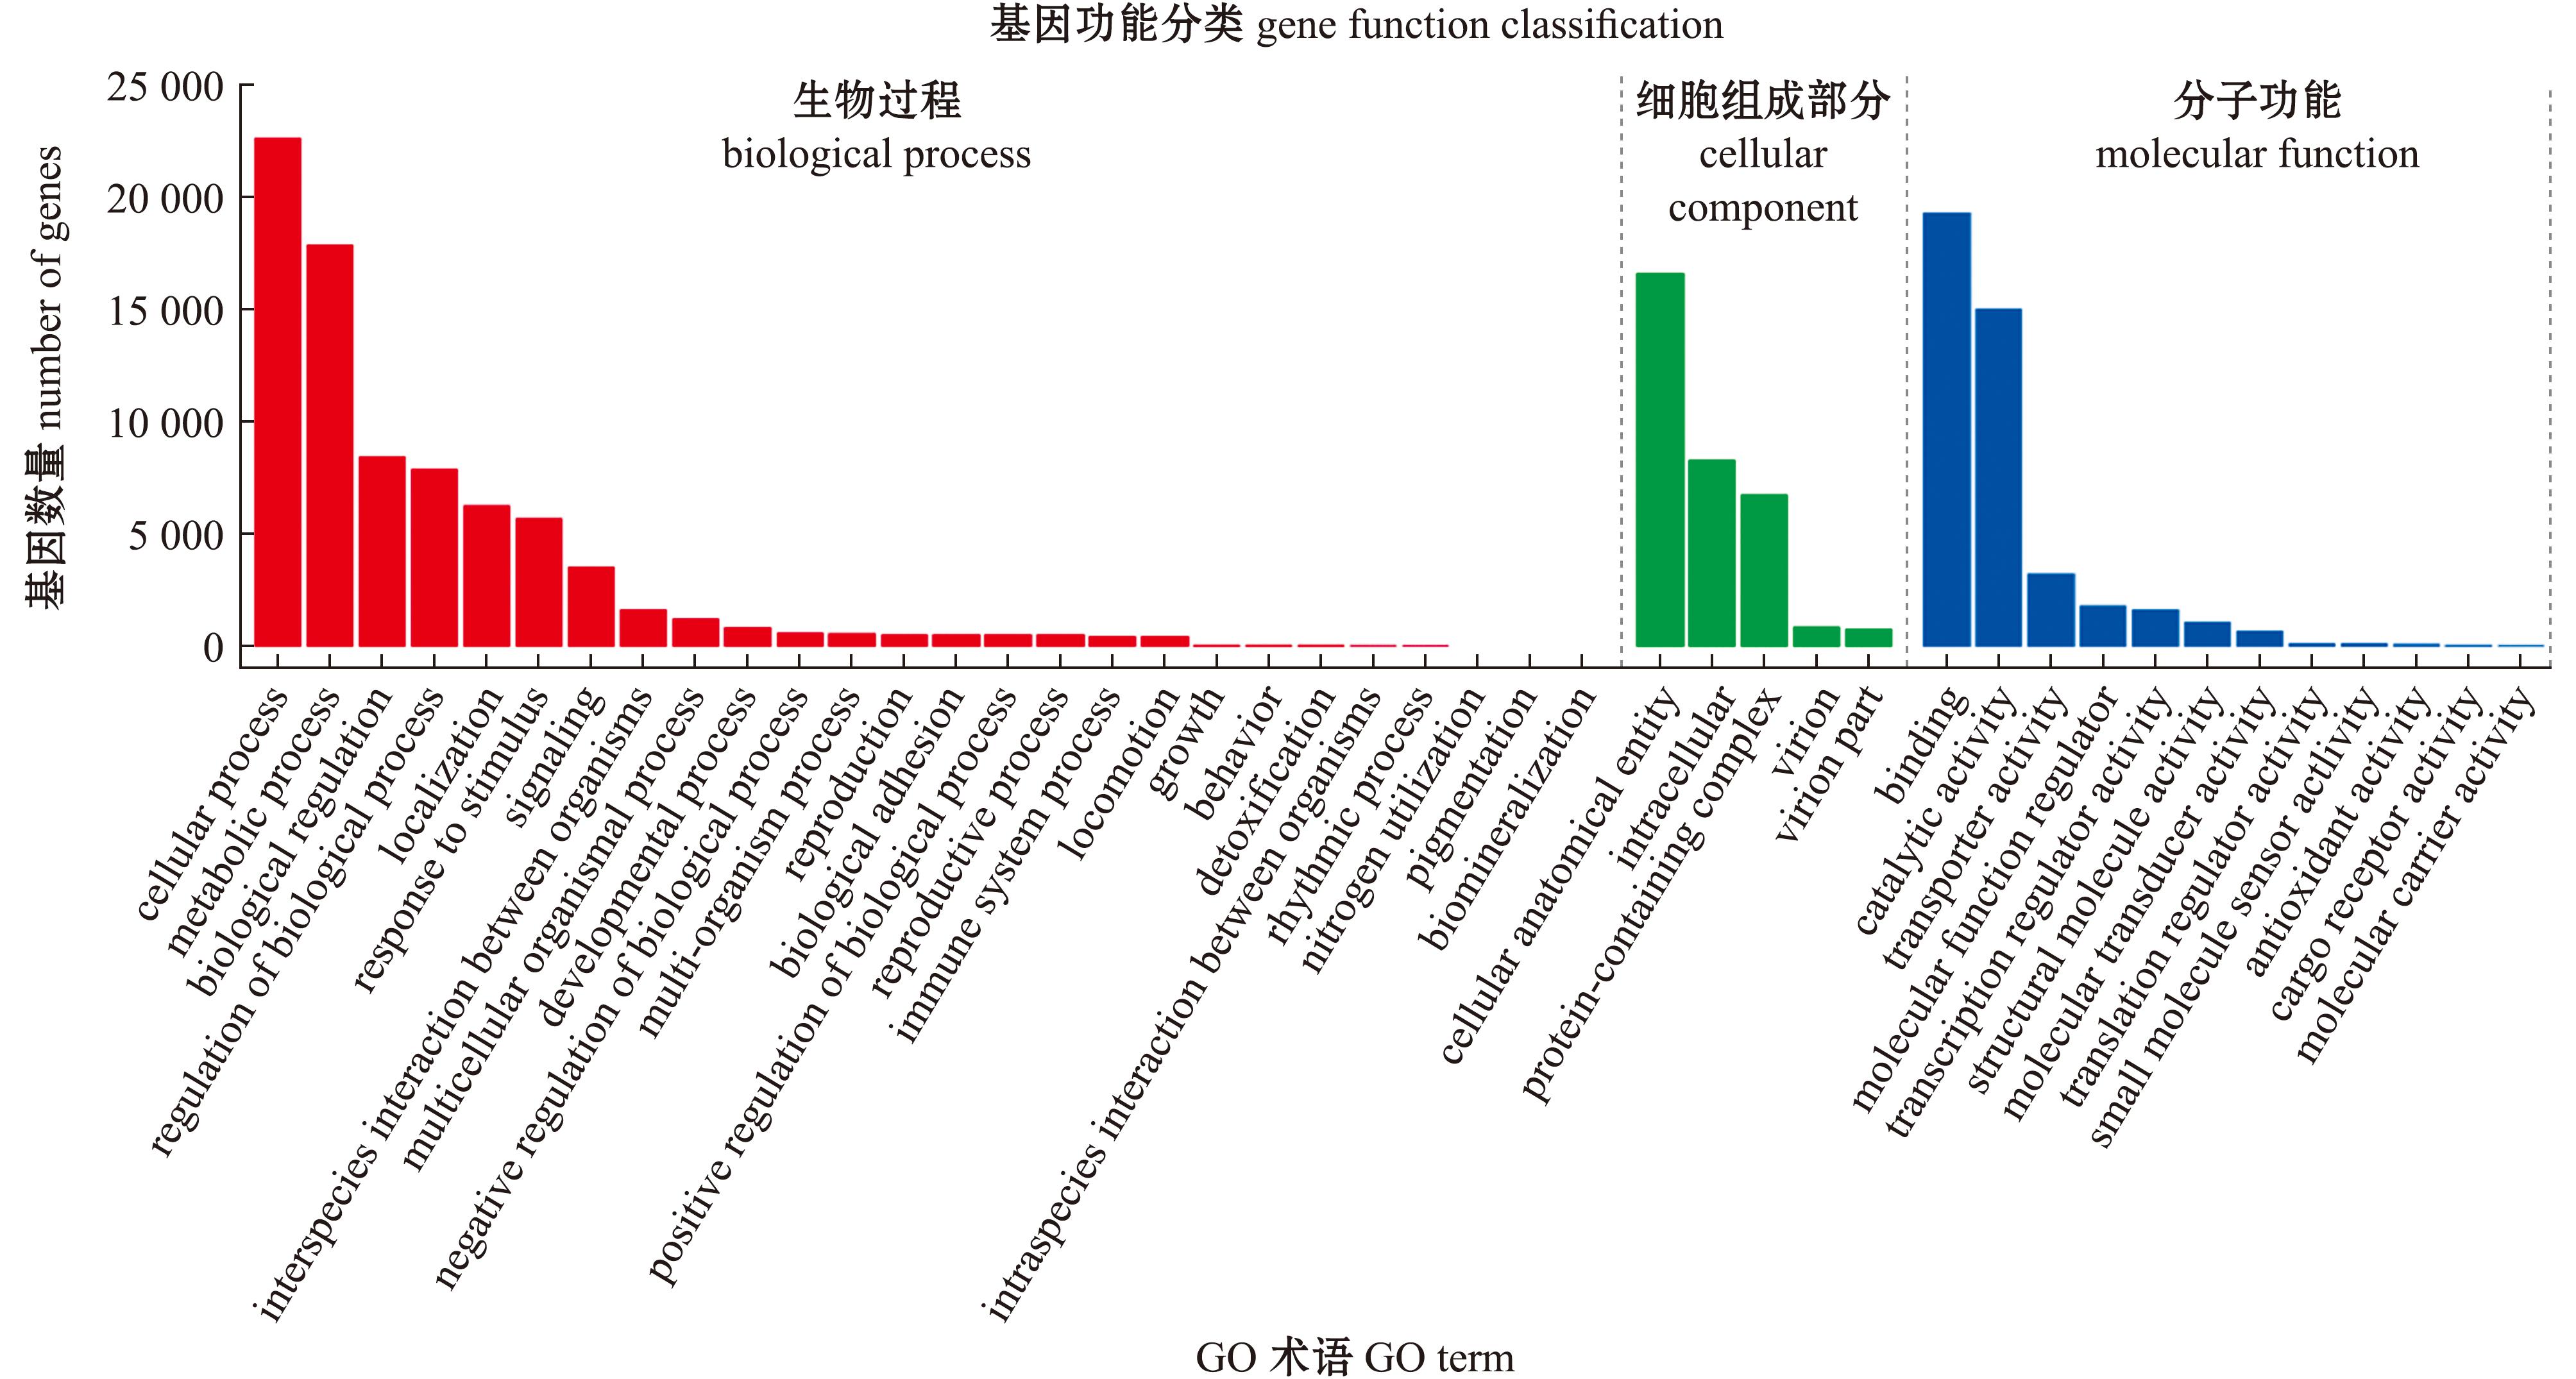
图3 GO注释分类统计图
Fig.3 Statistical chart of GO annotation categorization
GO富集结果表明,DEGs无显著富集的GO条目(P>0.05),在“类囊体”(thylakoid)、“质体”(plastid)和“细胞膜”(plasma membrane)等条目中注释较多,表明这些基因可能参与了细胞的能量代谢和物质交换。此外,DEGs在“受体配体活性”(receptor ligand activity)和“分子转导活性”(molecular transducer activity)等GO条目中也有较高的富集,提示这些基因可能在细胞信号转导和外部刺激响应中发挥重要作用。进一步分析表明,注释到“线粒体基因表达”(mitochondrial gene expression)和“脂质结合”(lipid binding)等过程的DEGs可能与细胞的能量代谢和脂质代谢有关。此外,注释到“神经系统过程”(nervous system process)和“运动活动”(motor activity)的DEGs可能在神经调节和细胞运动中具有潜在作用(图4)。
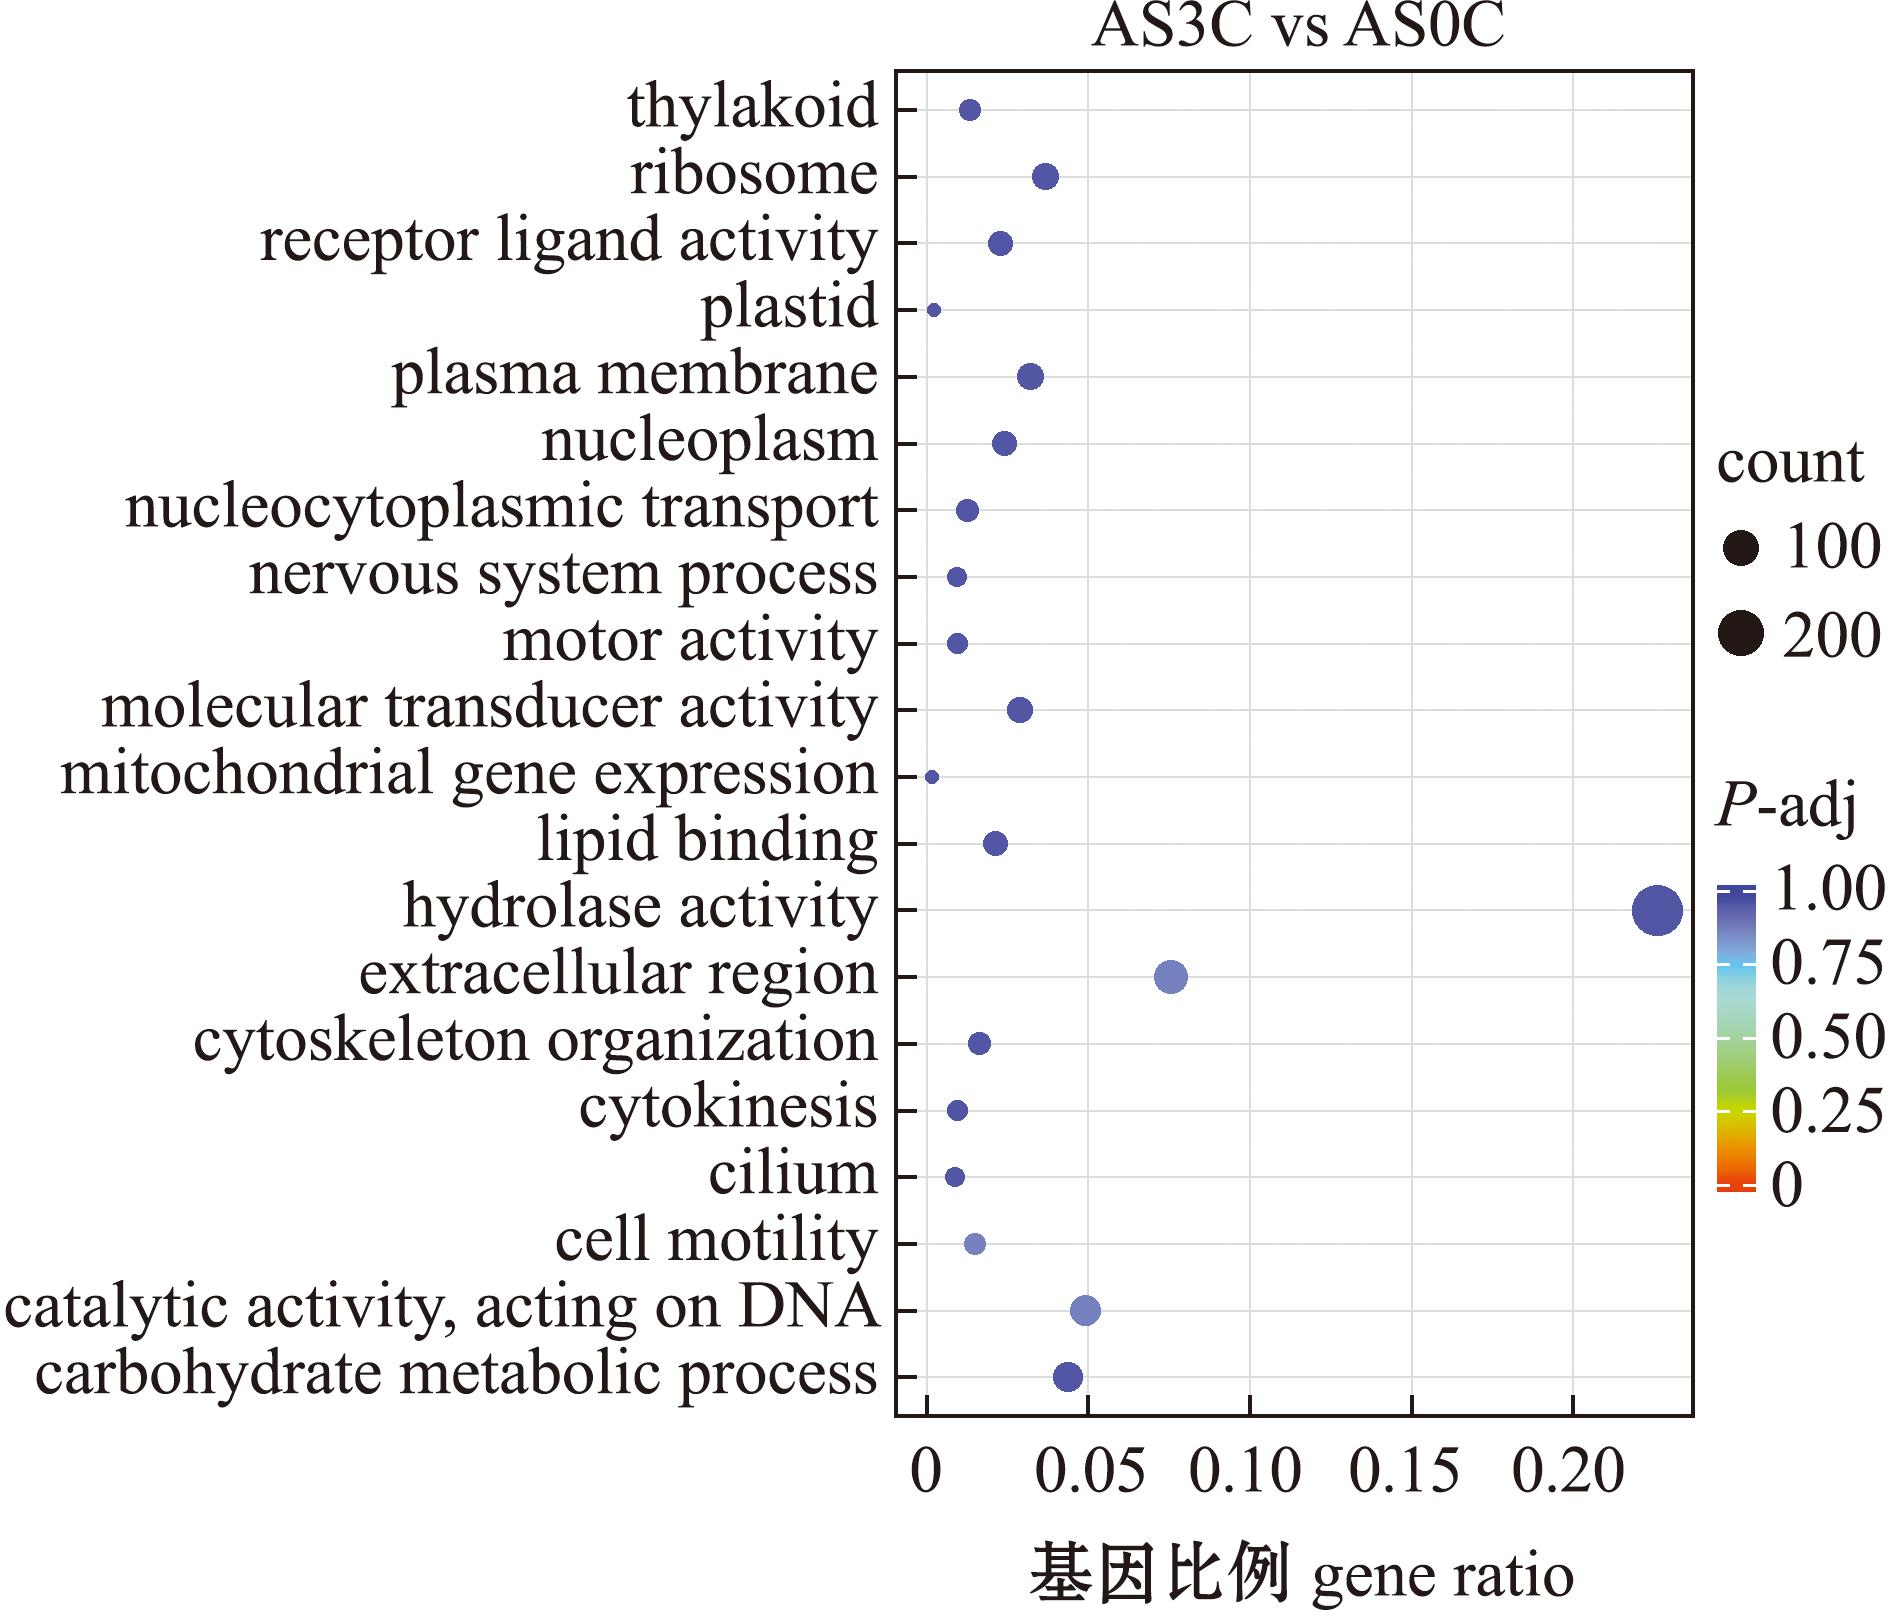
横坐标展示GO术语对应的基因比率,纵坐标则标识不同的通路名称。各个通路下差异基因数量的多少,通过圆点面积进行直观表征,数量越多,圆点面积越大,以此实现数据可视化呈现。
The horizontal axis shows the gene ratio corresponding to the GO term,and the vertical axis indicates the different pathway names. The number of differentially expressed genes under each pathway is visually represented by the size of points. The larger the number,the larger the point size,thereby achieving the visualization of data.
图4 GO通路富集气泡图
Fig.4 GO pathway enrichment scatter bubble plot
2.3.2 差异表达基因的KEGG通路富集分析 在KEGG富集分析中,基因富集数目较多的前五条通路分别为PPAR信号通路(PPAR signaling pathway)、AMPK信号通路(AMPK signaling pathway)、胰岛素耐受性(insulin resistance)、胰岛素信号通路(insulin signaling pathway)、HIF-1信号通路(HIF-1 signaling pathway),其上分别有28、28、26、25、22个基因(图5)。
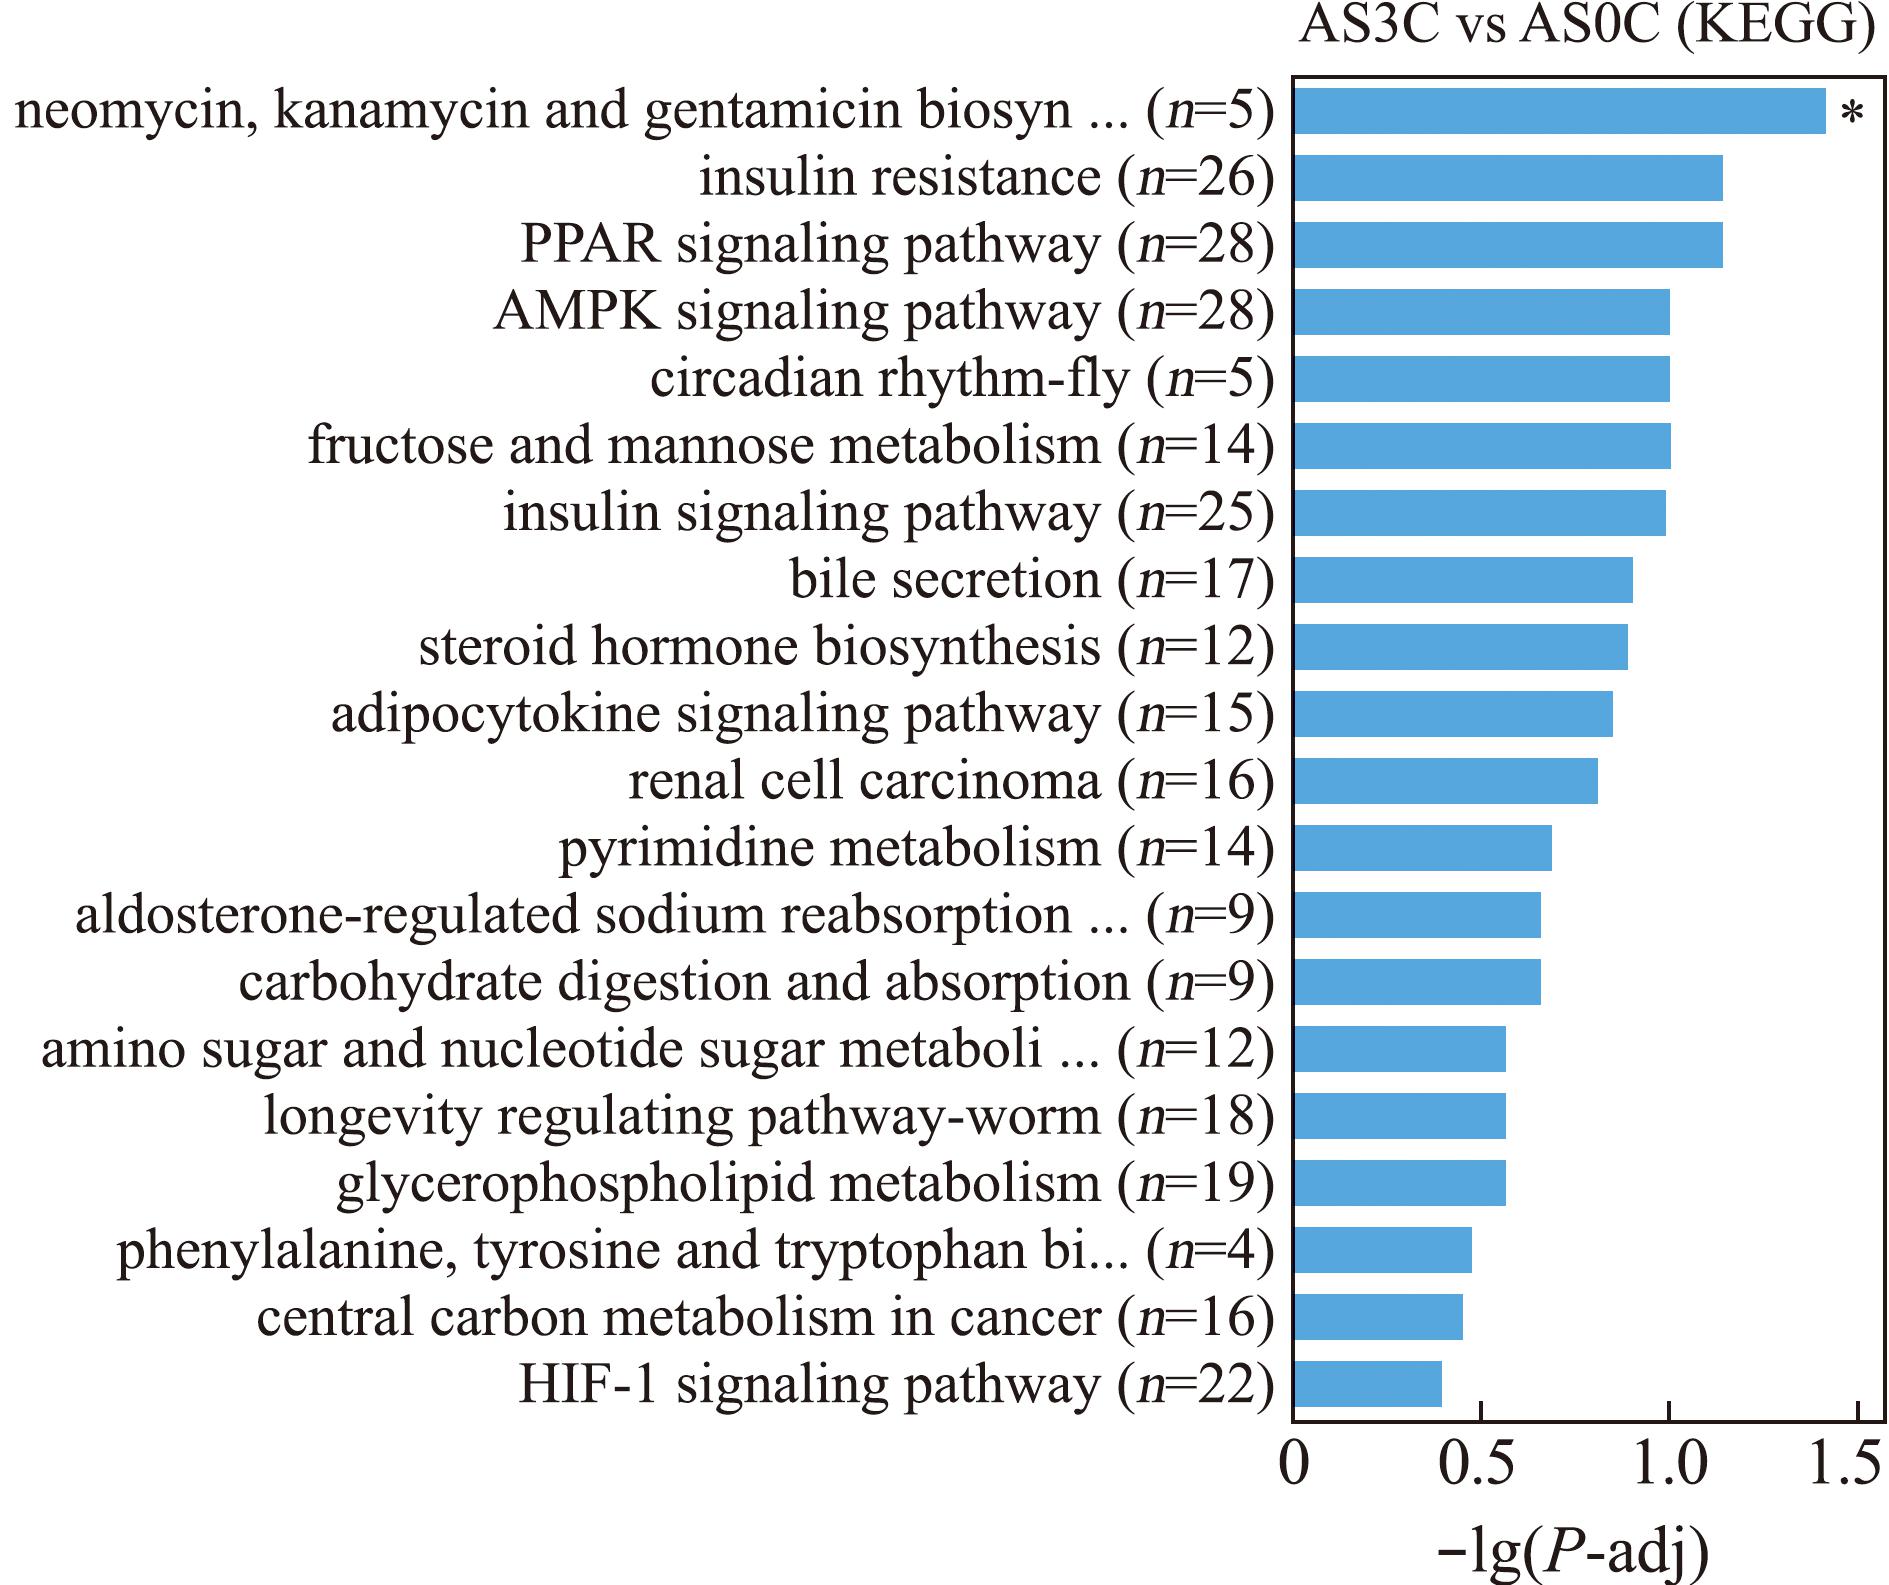
图5 差异基因KEGG富集结果
Fig.5 Differential gene KEGG enrichment results
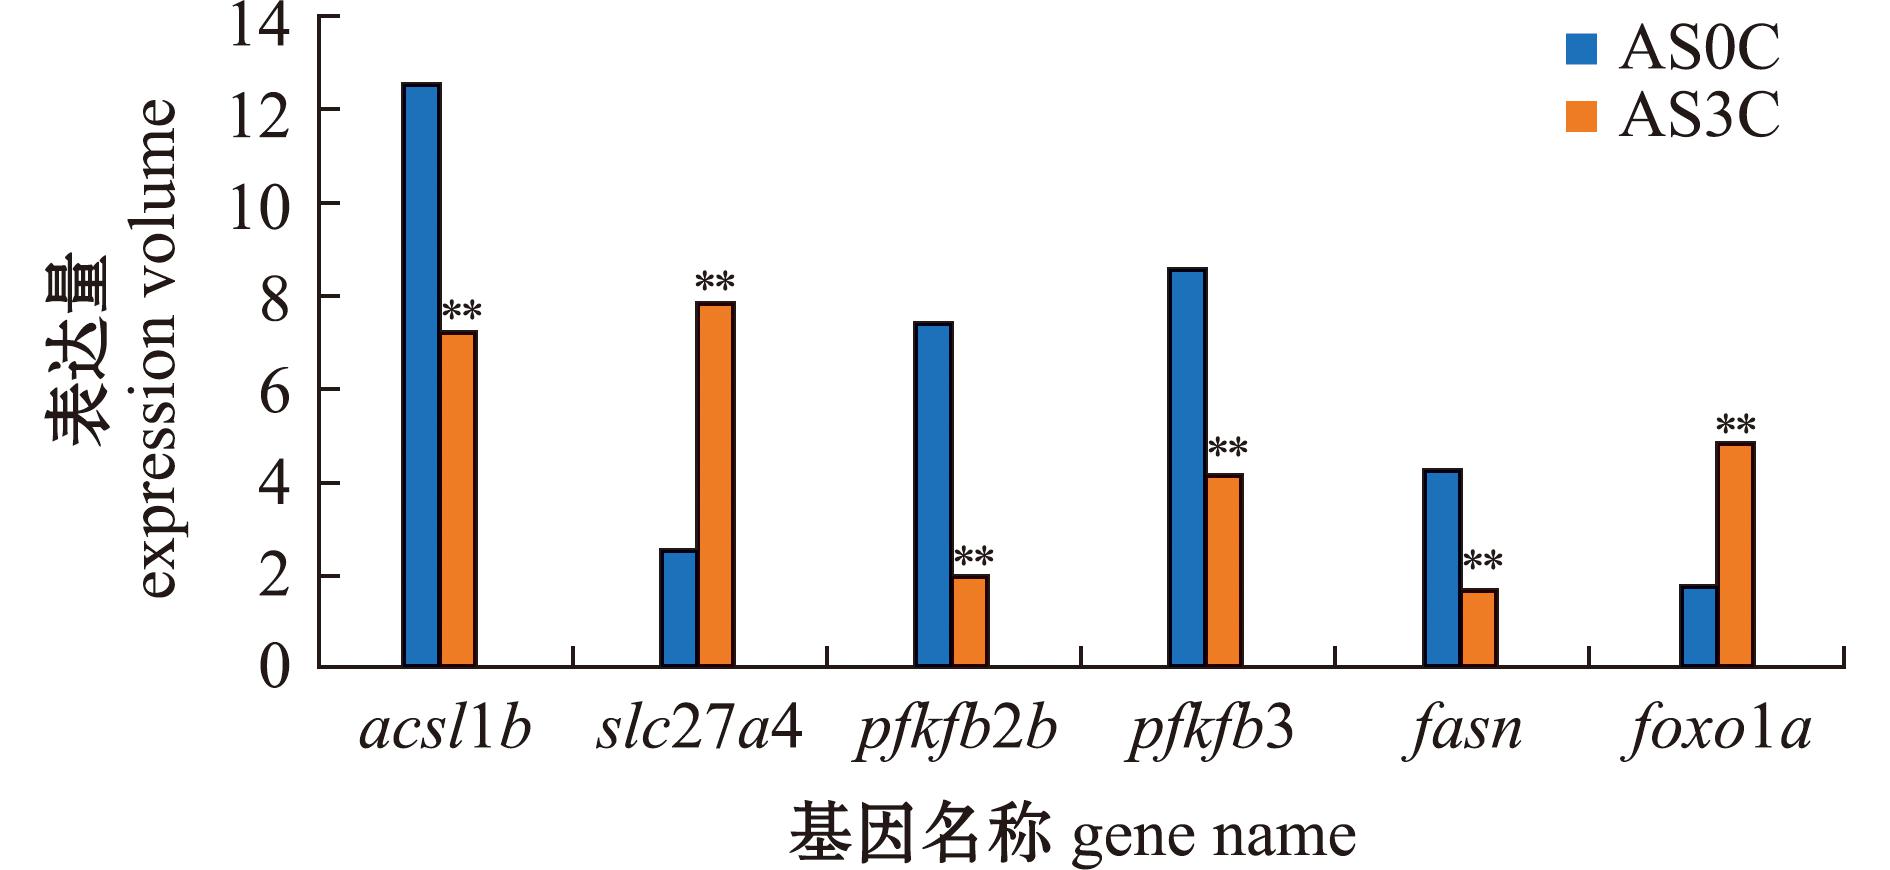
KEGG通路富集结果显示,DEGs在多个代谢及信号调控相关通路显著富集(P<0.05)(图6),其中,“PPAR信号通路”(PPAR signaling pathway,n=28)、“AMPK信号通路”(AMPK signaling pathway,n=28)及“胰岛素抵抗通路”(Insulin resistance,n=26)为主要富集通路,提示这些通路在调控虾青素干预下的肝脏代谢过程中可能发挥重要作用。笔者重点关注注释到PPAR信号通路中的acsl1b、slc27a4基因和AMPK信号通路中的pfkfb2b、pfkfb3、fasn和foxo1a等基因,其中,PPAR信号通路中的acsl1b基因在AS3C组表达下调、slc27a4基因表达上调;AMPK信号通路中的pfkfb2b、pfkfb3、fasn3个基因在AS3C组表达下调,foxo1a基因表达上调。
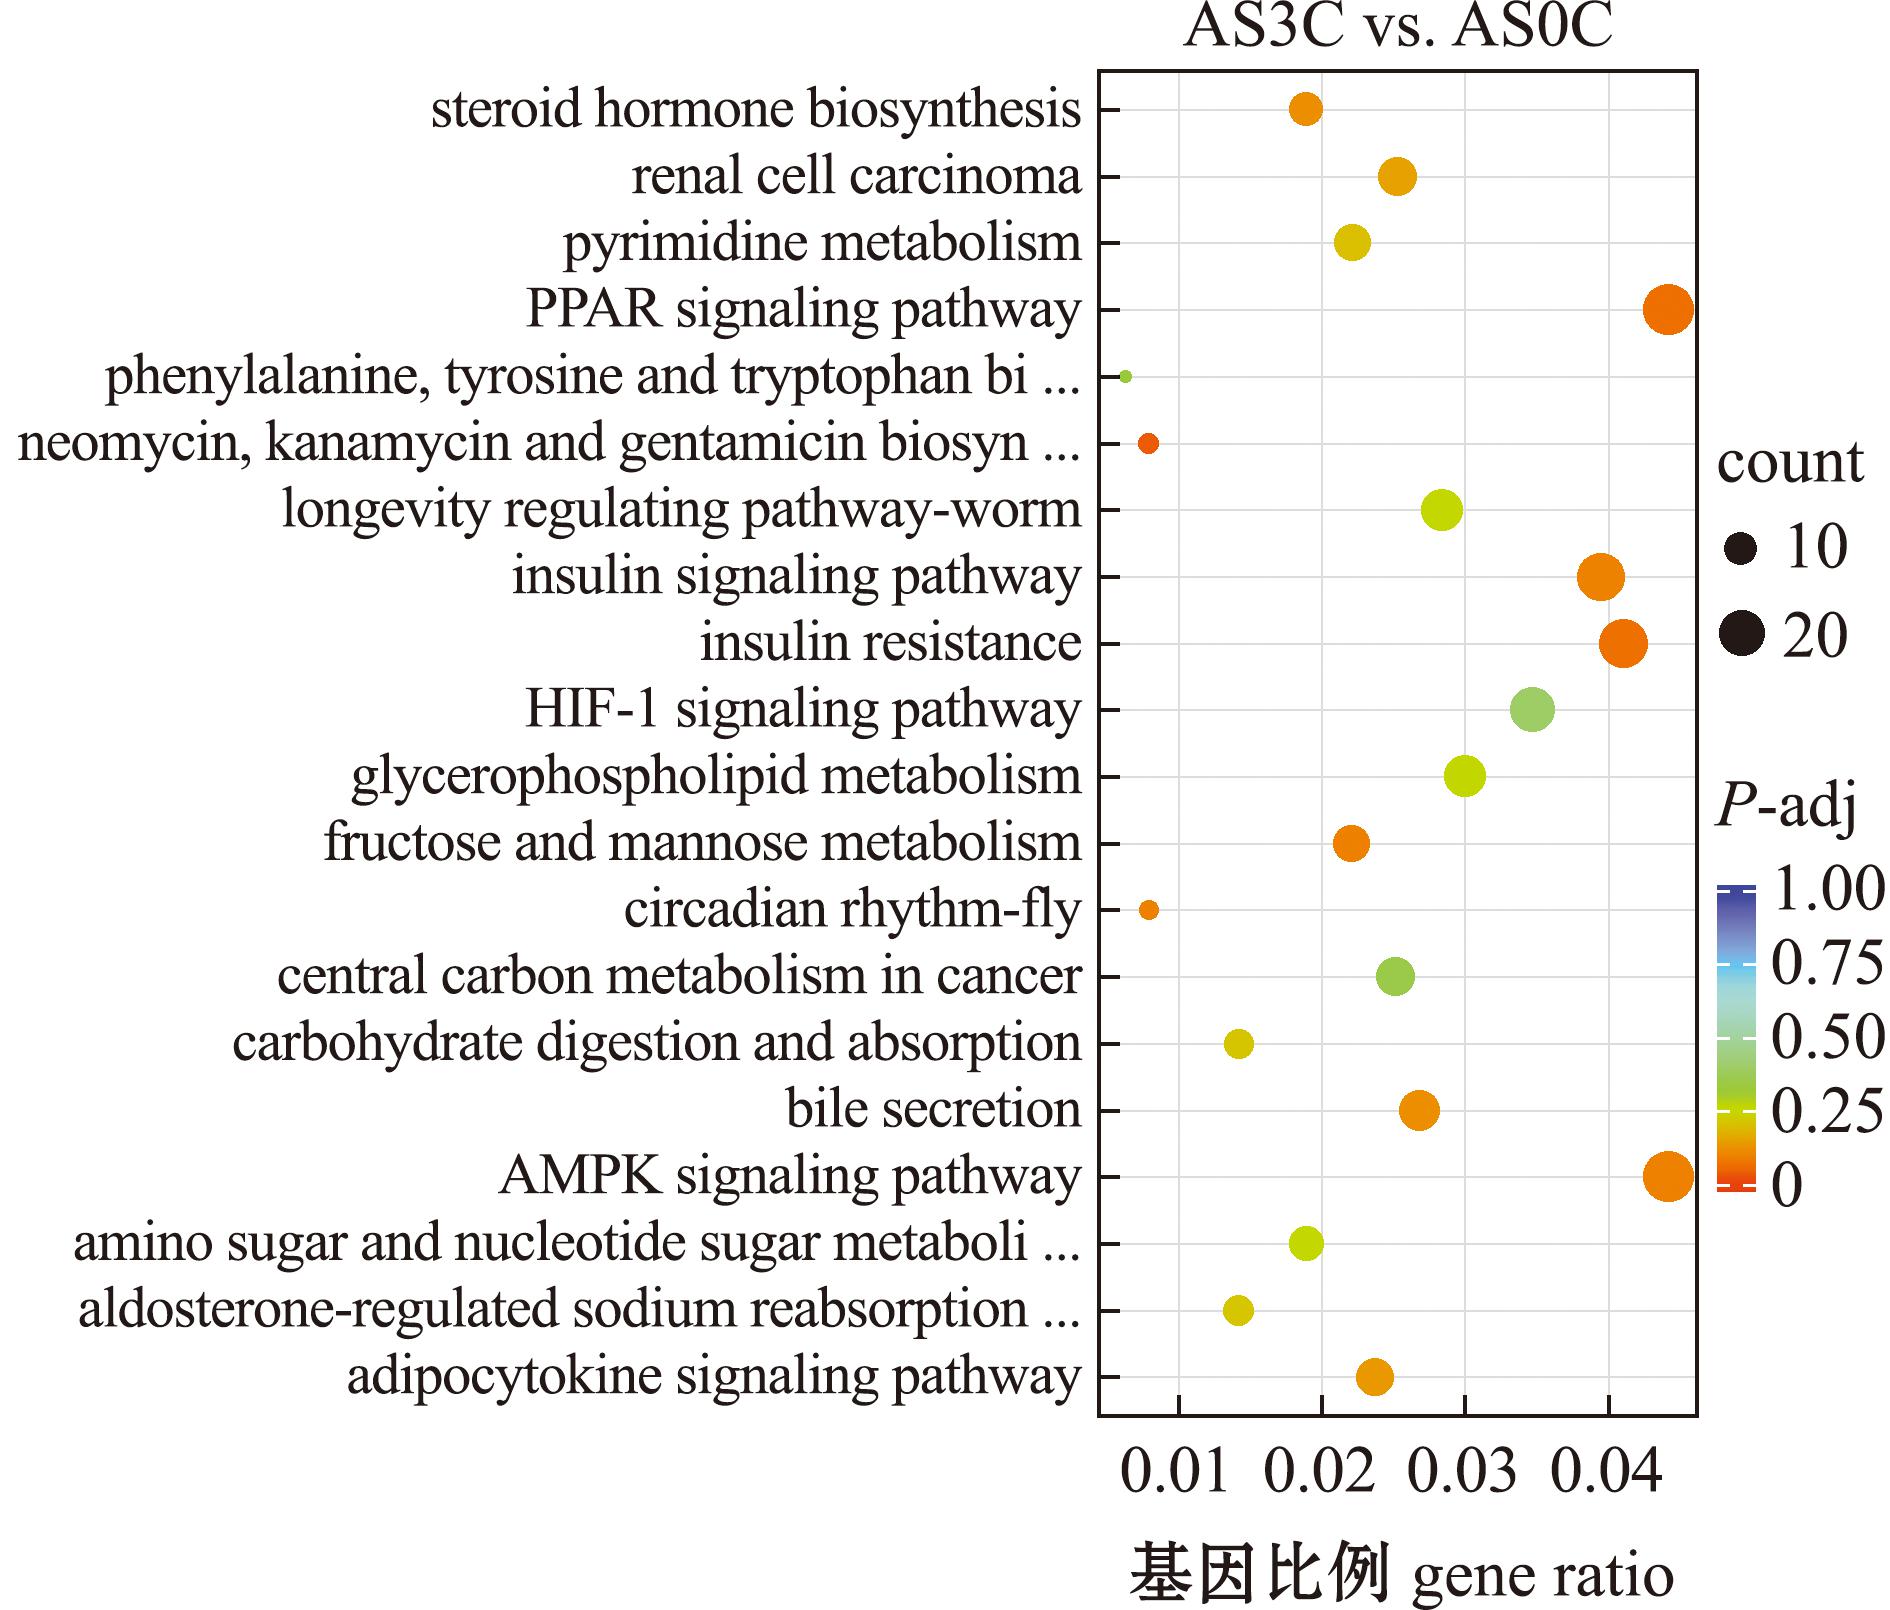
图6 KEGG通路富集气泡图
Fig.6 KEGG pathway enrichment scatter bubble plot
2.3.3 qRT-PCR验证差异表达基因 试验结果如图7所示,蓝色为对照组表达结果,橙色为试验组测序表达结果,所有基因的表达趋势与转录组数据相一致,说明转录组测序数据可靠。两种方法下的变化幅度有差异,反映了技术方法上的差异。
**表示差异性显著(P<0.05)。
** means significant difference (P<0.05).
图7 qRT-PCR验证结果
Fig.7 Results of qRT-PCR verification
3 讨论
3.1 虾青素的作用
虾青素呈红色粉末形态,其在生物体内肠道和肝脏组织的运输和储存过程中,主要与各种脂蛋白分子结合以维持其稳定性,最终运输到特定组织进行沉积[20],它可以精准地插入并穿过细胞膜同时不造成损伤,并通过Nrf2信号通路激活生物体内源性抗氧化系统。Nrf2信号通路激活调节GSH等抗氧化酶的加速合成,这有助于清除自由基和活性氧类物质,预防机体出现氧化应激反应[21]。许多研究表明,在饲料中添加虾青素能够显著改善鱼类的生长性能,如条纹狼鲈(Morone saxatilis)[22]、三倍体虹鳟(Oncorhynchus mykiss)[23]等鱼类在食用了添加虾青素的饲料后提高了生长率和增重率。饲料中添加虾青素能够显著提高金鲷(Sparus aurata)的免疫应答能力,提高其对病原体的抗性,减少氧化应激,提升抗氧化酶的活性。此外,虾青素能改善大西洋鲷的脂质代谢,降低血脂水平,优化脂肪储存及脂肪酸组成,提高鱼类的生长性能和健康状态[24]。作为一种强效的天然抗氧化剂,虾青素能够显著提高豹纹鳃棘鲈(Plectropomus leopardus)的抗氧化能力,增强其免疫系统功能,提高其抗病能力[25]。
3.2 PPAR信号通路对肝脏保护机制
PPAR(过氧化物酶体增殖物激活受体)信号通路是一种核受体转录因子,在脂质代谢、能量平衡、炎症反应及细胞分化等多种生理过程中起关键调控作用[26]。PPAR信号通路主要包含3种亚型,即PPARα、PPARβ/δ和PPARγ。在被脂肪酸、类固醇和抗氧化剂等配体激活后,PPAR 受体形成二聚体复合物并与PPRE结合以调节下游基因的表达[27]。本研究中重点关注PPAR信号通路上的关键差异表达基因acsl1b(长链脂肪酸酰基辅酶a合成酶)和slc27a4(脂肪酸转运蛋白4)。
acsl1b作为脂肪酸代谢中的关键酶,催化长链脂肪酸与辅酶A之间的反应产生脂肪酸酰基辅酶A,这一步骤在脂肪酸的合成、β-氧化及能量代谢中至关重要[28]。它参与脂质合成和储存过程,为细胞膜磷脂和甘油三酯的合成提供必须的脂肪酸,并调节能量平衡[29]。相关研究结果表明,金鲳(Trachinotus ovatus)acsl基因家族具有特定的分子结构和功能特性,这些基因在肝脏、肌肉和肠道等代谢活性组织中表达水平较高。在不同营养条件下,脂肪酸比例的变化对acsl基因的表达有显著影响,这个基因家族在脂质代谢中起关键作用[30]。与对照组相比,acsl1b出现显著下调,表明其在肝脏中的功能受到抑制,进而影响肝脏中的脂肪酸代谢、能量平衡和其他重要生理过程,可能导致脂肪肝、胰岛素抵抗、肝损伤和其他代谢疾病。
slc27a4在脂肪酸的跨膜运输中发挥重要作用,在肠道、肝脏和脂肪组织中,它能促进长链脂肪酸的摄取。通过将脂肪酸转运到细胞内,为脂肪酸的代谢和储存提供支持,调节脂质代谢过程[31]。研究发现,在温度快速变化的条件下,豹纹鳃棘鲈肝脏中的slc27a4基因表现出显著变化。温度变化引起的应激反应可能通过调节slc27a4基因的表达来影响脂肪酸的代谢,从而影响鱼类的整体能量代谢和适应性[32]。与对照组相比,slc27a4基因显著上调,这可能是借助促进脂肪酸的摄取和代谢影响肝脏的脂质合成、能量代谢及脂肪储存。虾青素通过调节PPAR信号通路对肝脏具有多重正向作用。它可以通过促进脂肪酸氧化和减少脂肪积累来改善肝脏中的脂质代谢,还可以通过抗炎、提高胰岛素敏感性、增强抗氧化能力、促进肝脏修复机制等方式预防和治疗脂肪肝、代谢症候群及其他肝脏疾病。
3.3 AMPK信号通路对肝脏保护机制
AMPK信号通路作为一种关键的能量感知机制,可对细胞内的能量状态进行实时监测,并且借助调节代谢过程来维持机体的能量稳态[33]。研究显示,该通路借助磷酸化修饰抑制乙酰辅酶A羧化酶(ACC)的活性,这一过程可促进脂肪酸的氧化分解,减少丙二酰辅酶A的合成,从而抑制脂肪酸的生物合成[34]。在AMPK信号通路中,多个与葡萄糖代谢和脂质合成相关的基因也发生明显变化。pfkfb2b和pfkfb3这两个基因在糖酵解途径及对细胞能量代谢的调控方面均有体现,借助产生果糖-2,6-二磷酸(F2,6BP)来推动糖酵解,增强细胞的能量生成。这对于快速增殖的细胞或者如肝脏、肌肉等需要大量能量供应的组织而言非常关键[35]。pfkfb2b和pfkfb3在斑马鱼胚胎发育过程对能量代谢的调控发挥着关键作用,在过量营养影响胚胎发育和食欲调节情况下,调节这些基因的表达可能是应对能量过载和调节食欲的重要机制[36]。pfkfb2b和pfkfb3与对照组相比显著下调,这可能致使糖代谢和能量稳态出现紊乱。作为调节糖酵解的关键基因,这些基因的下调会使果糖-2,6-二磷酸的合成降低,抑制磷酸果糖激酶-1(PFK-1)的活性,减缓糖酵解过程。这种抑制可能造成肝脏细胞能量供应不足,同时可能借助提高糖异生来补偿血糖水平的下降。
fasn通过促进脂肪酸的合成,参与脂质代谢和脂肪积累。在许多癌症及代谢性疾病中,fasn大多时候被过度表达,它的高表达可促进肿瘤细胞生长并推动肥胖和代谢紊乱的发展[37]。在研究白藜芦醇借助MAPK-PPAR通路抑制红罗非鱼脂肪酸合成机制的同时,抑制了fasn基因的表达。这一调控作用导致脂肪酸合成减少,抑制了脂肪的积累。fasn与对照组相比显著下调,可能依靠减少脂肪酸合成、促进脂肪酸氧化和调节能量代谢,对肝脏功能产生积极作用,有助于改善肝脏的脂质代谢,防止脂肪肝的发生,并改善胰岛素敏感性。foxo1a在胰岛素信号通路中起关键作用,调节胰岛素对肝脏、肌肉和脂肪的作用,影响糖代谢、脂质代谢等。foxo1a还可以促进抗氧化酶的表达,保护细胞免受氧化应激的损伤[38]。在对橙色石斑鱼(Epinephelus coioides)研究中,发现foxo1a基因在不同组织中的表达有较大的组织特异性,可能凭借调控cyp19a1a基因的表达参与橙斑石斑鱼的性别决定和内分泌调节[39]。foxo1a与对照组相比显著上调,可能通过调节糖异生、脂肪酸合成、胰岛素敏感性及细胞增殖等机制,对肝脏的能量代谢和代谢稳态产生显著影响。添加虾青素后,青海湖裸鲤体内AMPK信号通路被激活,通过调节能量、脂肪、炎症反应、抗氧化应激和自噬等方面发挥保护作用,给予身体充足的能量来源以抵抗恶劣环境的压力。
4 结论
1)转录组测序结果显示,虾青素可通过多个途径来促进青海湖裸鲤肝脏受损后的恢复。
2)PPARx信号通路中的acsl1b和slc27a4基因,AMPK信号通路中的pfkfb2b、pfkfb3、fasn和foxo1a基因可能是虾青素保护过程中具有重要作用的靶点,从而使虾青素能够通过调节脂质代谢、改善糖代谢、降低肝脏脂肪沉积、保护肝细胞等多种机制显著地提升肝健康,并且促进脂肪酸氧化、调节胰岛素敏感性及肝脏自我修复,为抵御肝损伤和促进肝功能恢复提供治疗策略。
[1] 严青春,李长忠,王丽楠,等.基于比较转录组学揭示青海湖裸鲤耐盐碱关键基因和潜在作用机制[J].大连海洋大学学报,2025,40(2):223-234.YAN Q C,LI C Z,WANG L N,et al.Comparative transcriptomics reveals key genes and underlying mechanisms of salinity-alkalinity tolerance in Gymnocypris przewalskii[J].Journal of Dalian Ocean University,2025,40(2):223-234.(in Chinese)
[2] 付生云,周卫国,张涛,等.青海湖裸鲤洄游排卵、受精高峰期的繁殖特征[J].畜牧兽医科技信息,2019(11):33-34.FU S Y,ZHOU W G,ZHANG T,et al.Reproductive characteristics of naked carp in Qinghai Lake at the peak of ovulation and fertilization[J].Chinese Journal of Animal Husbandry and Veterinary Medicine,2019(11):33-34.(in Chinese)
[3] 谈龙飞,徐东坡,祁洪芳,等.沙柳河青海湖裸鲤早期资源发生量及时空分布[J].水生生物学报,2022,46(2):265-272.TAN L F,XU D P,QI H F,et al.The spatial and temporal distribution in early life history stages of Gymnocypris przewalskii in Shaliu river[J].Acta Hydrobiologica Sinica,2022,46(2):265-272.(in Chinese)
[4] 张开,丁柏峰.青海湖裸鲤资源与流域内人类活动关系分析[J].干旱区资源与环境,2014,28(11):60-66.ZHANG K,DING B F.The relationship between Gymnocypris przewalskii resource in Qinghai Lake and the human activities in watershed[J].Journal of Arid Land Resources and Environment,2014,28(11):60-66.(in Chinese)
[5] 荣义峰.泉吉河青海湖裸鲤自然产卵场的生境特征及规模评估[D].上海:上海海洋大学,2022.RONG Y F.The habitat characteristics and scale assessment of the natural spawning grounds of Gymnocypris przewalskii in Quanji River [D].Shanghai:Shanghai Ocean University,2022.(in Chinese)
[6] 史建全,祁洪芳,杨建新,等.青海湖裸鲤增殖放流效果评估[J].农技服务,2016,33(12):128-129.SHI J Q,QI H F,YANG J X,et al.Evaluation on the effect of proliferation and release of naked carp in Qinghai Lake[J].Agricultural Technology Service,2016,33(12):128-129.(in Chinese)
[7] 付生云,祁洪芳,罗颖.2002—2023年青海湖裸鲤增殖放流效果评估[J].青海科技,2024,31(2):29-33.FU S Y,QI H F,LUO Y.Effect evaluation of Gymnocypris przewalskii enhancement release from 2002 to 2023[J].Qinghai Science and Technology,2024,31(2):29-33.(in Chinese)
[8] BEGUM H,MD.YUSOFF F,BANERJEE S,et al.Availability and utilization of pigments from microalgae[J].C R C Critical Reviews in Food Technology,2016,56(13):2209-2222.
[9] 马骏,李勇,张静,等.3种非营养性抗氧化剂在水产动物中的研究进展[J].水产科学,2018,37(3):414-420.MA J,LI Y,ZHANG J,et al.Research progress on three non-nutritive antioxidants in aquatic animals:a review[J].Fisheries Science,2018,37(3):414-420.(in Chinese)
[10] NAGUIB Y M A.Antioxidant activities of astaxanthin and related carotenoids[J].Journal of Agricultural and Food Chemistry,2000,48(4):1150-1154.
[11] 吕小燕,李建东,张磊,等.低鱼粉饲料添加虾青素对虹鳟幼鱼生长及抗氧化能力的影响[J].饲料研究,2024,47(6):65-69.LÜ X Y,LI J D,ZHANG L,et al.Effects of astaxanthin supplementation in low-fishmeal feed on growth and antioxidant capacity of Oncorhynchus mykiss juvenile[J].Feed Research,2024,47(6):65-69.(in Chinese)
[12] CHEN X M,GAO C S,DU X Y,et al.Effects of dietary astaxanthin on the growth,innate immunity and antioxidant defence system of Paramisgurnus dabryanus[J].Aquaculture Nutrition,2020,26(5):1453-1462.
[13] 张春燕,文登鑫,姚文祥,等.不同来源虾青素对虹鳟生长性能、肉色和抗氧化能力的影响[J].动物营养学报,2021,33(2):1008-1019.ZHANG C Y,WEN D X,YAO W X,et al.Effects of different astaxanthin sources on growth performance,flesh color and antioxidant ability of rainbow trout (Oncorhynchus mykiss)[J].Chinese Journal of Animal Nutrition,2021,33(2):1008-1019.(in Chinese)
[14] PAN C H,CHIEN Y H,CHENG J H.Effects of light regime,algae in the water,and dietary astaxanthin on pigmentation,growth,and survival of black tiger prawn Penaeus monodon post-larvae[J].Zoological Studies,2001,40(4):371-382.
[15] LI M Y,SHI Y C,XU W X,et al.Exploring Cr(Ⅵ)-induced blood-brain barrier injury and neurotoxicity in zebrafish and snakehead fish,and inhibiting toxic effects of astaxanthin[J].Environmental Pollution,2024,355:124280.
[16] NAGUIB Y M A.Antioxidant activities of astaxanthin and related carotenoids[J].Journal of Agricultural and Food Chemistry,2000,48(4):1150-1154.
[17] 高金伟,王洪柱,周文礼.虾青素在观赏鱼养殖中的应用研究进展[J].经济动物学报,2022,26(4):342-350.GAO J W,WANG H Z,ZHOU W L.Research progress on application of astaxanthin in ornamental fish culture[J].Journal of Economic Animal,2022,26(4):342-350.(in Chinese)
[18] 王震,徐飞,蔡乐靖,等.基于Illumina Hiseq 2500测序平台的小片段DNA文库的构建方法:CN104946623A[P].2015-09-30.WANG Z,XU F,CAI L J,et al.Construction method of small fragment DNA library based on Illumina Hiseq 2500 sequencing platform:CN104946623A[P].2015-09-30.(in Chinese)
[19] 王斌会.多元统计分析及R语言建模[M].2版.广州:暨南大学出版社,2011.WANG B H.Multivariate statistical analysis and modeling for R language[M].2nd ed.Guangzhou:Jinan University Press,2011.(in Chinese)
[20] YAO Q M,MA J Q,CHEN X M,et al.A natural strategy for astaxanthin stabilization and color regulation:interaction with proteins[J].Food Chemistry,2023,402:134343.
[21] 高金伟,王洪柱,周文礼.虾青素在观赏鱼养殖中的应用研究进展[J].经济动物学报,2022,26(4):342-350.GAO J W,WANG H Z,ZHOU W L.Research progress on application of astaxanthin in ornamental fish culture[J].Journal of Economic Animal,2022,26(4):342-350.(in Chinese)
[22] 许长峰,王海丽,宫彬彬.虾青素对鲈鱼生长性能、抗氧化及非特异性免疫能力的影响[J].饲料研究,2023,46(3):52-55.XU C F,WANG H L,GONG B B.Effect of astaxanthin on growth performance,antioxidant and non-specific immunity of sea bass[J].Feed Research,2023,46(3):52-55.(in Chinese)
[23] MENG X X,YANG F M,ZHU L L,et al.Effects of dietary astaxanthin supplementation on growth performance,antioxidant status,immune response,and intestinal health of rainbow trout (Oncorhynchus mykiss)[J].Animal Nutrition,2024,17:387-396.
[24] CAMPOS-S NCHEZ J C,ESTEBAN M .Effects of dietary astaxanthin on immune status and lipid metabolism in gilthead seabream (Sparus aurata)[J].Fish &Shellfish Immunology,2024,151:109731.
[25] ZHU X W,HAO R J,ZHANG J P,et al.Dietary astaxanthin improves the antioxidant capacity,immunity and disease resistance of coral trout (Plectropomus leopardus)[J].Fish &Shellfish Immunology,2022,122:38-47.
[26] LIU Y,COLBY J K,ZUO X S,et al.The role of PPAR-δ in metabolism,inflammation,and cancer:many characters of a critical transcription factor[J].International Journal of Molecular Sciences,2018,19(11):3339.
[27] QIU Y Y,ZHANG J,ZENG F Y,et al.Roles of the peroxisome proliferator-activated receptors (PPARs) in the pathogenesis of nonalcoholic fatty liver disease (NAFLD)[J].Pharmacological Research,2023,192:106786.
[28] YAN S,YANG X F,LIU H L,et al.Long-chain acyl-CoA synthetase in fatty acid metabolism involved in liver and other diseases:an update[J].World Journal of Gastroenterology,2015,21(12):3492-3498.
[29] CHENG H L,CHEN S,XU J H,et al.Molecular cloning and nutrient regulation analysis of long chain acyl-CoA synthetase 1 gene in grass carp,Ctenopharyngodon idella L.[J].Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology,2017,204:61-68.
[30] YANG Z G,ZHU H B,HUANG X P,et al.Molecular characterization,tissue distribution profile,and nutritional regulation of acsl gene family in golden pompano (Trachinotus ovatus)[J].International Journal of Molecular Sciences,2022,23(12):6437.
[31] ZHANG H M,SHEN Z L,YANG Z D,et al.Abundance of solute carrier family 27 member 6 (SLC27A6) in the bovine mammary gland alters fatty acid metabolism[J].Food &Function,2021,12(11):4909-4920.
[32] GUO Y L,JIN C F,WEI C,et al.The effects of acute temperature changes on transcriptomic responses in the liver of leopard coral groupers (Plectropomus leopardus)[J].Antioxidants,2025,14(2):223.
[33] GARCIA D,SHAW R J.AMPK:mechanisms of cellular energy sensing and restoration of metabolic balance[J].Molecular Cell,2017,66(6):789-800.
[34] SUKUMARAN A,CHOI K,DASGUPTA B.Insight on transcriptional regulation of the energy sensing AMPK and biosynthetic mTOR pathway genes[J].Frontiers in Cell and Developmental Biology,2020,8:671.
[35] PEGORARO C,MACZKOWIAK F,MONSORO-BURQ A H.Pfkfb (6-phosphofructo-2-kinase/fructose-2,6-bisphosphatase) isoforms display a tissue-specific and dynamic expression during Xenopus laevis development[J].Gene Expression Patterns,2013,13(7):203-211.
[36] KONADU B,COX C K,GARRETT M R,et al.Excess glucose or fat differentially affects gene expression and appetite regulation during zebrafish embryogenesis[J].SSRN Electronic Journal,2023:26(7):107063.
[37] WANG H C,ZHOU Y,XU H W,et al.Therapeutic efficacy of FASN inhibition in preclinical models of HCC[J].Hepatology,2022,76(4):951-966.
[38] WANG X N,KANG X Y,LI B W,et al.High glucose treatment induces nuclei aggregation of microvascular endothelial cells via the foxo1a-klf2a pathway[J].Arteriosclerosis,Thrombosis,and Vascular Biology,2025,45(3):398-411.
[39] NING Y F,FAN M,LIU Q Y,et al.Two Foxo1 homologues in the orange-spotted grouper Epinephelus coioides:sequences,expression,and possible involvement in the activation of cyp19a1a expression in the ovary[J].Fish Physiology and Biochemistry,2021,47(5):1597-1610.