腺苷酸活化蛋白激酶(AMPK)是一种具有丝氨酸/苏氨酸蛋白激酶活性的代谢传感器,在维持真核细胞能量稳态及能量代谢信号传导中发挥重要作用[1]。AMPK是由一个催化亚基AMPKα、两个调节亚基AMPKβ和AMPKγ组成的异源三聚体蛋白[2],在脊椎动物中,3种亚基均存在多种亚型,即α亚基(α1、α2)、β亚基(β1、β2)、γ亚基(γ1、γ2和γ3),通过不同亚基的组合共可形成12种不同的AMPK[3]。而在低等水生生物中,很少发现AMPK不同亚基的亚型分化现象。AMPKα亚基蛋白结构N端含有丝氨酸/苏氨酸激酶结构域,其激酶结构域C端的苏氨酸(Thr172)残基是上游激酶磷酸化AMPK的关键位点,该结构域C端还存在一个自身抑制结构域(AID)[4]。β亚基是AMPK复合体的结构核心,其中β-CTD负责连接α亚基与γ亚基,而碳水化合物结合结构域(CBM)作为非催化活性结构域,能够识别并结合碳水化合物,在AMPK动态调节能量平衡的过程中发挥作用[5]。AMPKγ亚基由4个串联的胱硫醚-β-合酶(CBS)结构域组成,该结构能够结合AMP、ADP、ATP,这可能是AMPK能够敏感感知细胞内AMP/ATP和ADP/ATP的原因[6-7]。AMPK在真核生物几乎所有的细胞中均有表达,在细胞生长、增殖、分化、能量代谢、氧化还原调节、自噬和线粒体稳态等多种生物学过程中发挥重要作用[8-9]。
AMPK作为细胞内关键的代谢“调节剂”,在生物体应对外界环境胁迫及病原入侵时,对维持细胞能量稳态具有重要作用[10]。AMPK生物学活性主要受细胞内AMP/ATP及ADP/ATP比值变化的调控,可通过直接磷酸化多种代谢途径的关键因子,调节细胞内糖类、脂类、蛋白质等主要能源物质分解与合成过程[11]。AMPK可通过抑制合成代谢减少ATP的消耗及增加分解代谢促进ATP的生成来维持细胞内的能量平衡[12]。当生物体因外界胁迫产生能量应激时,AMPK可通过激活分解代谢途径,促进糖原与脂质等物质的分解以维持细胞能量供给[13]。在糖代谢方面,AMPK通过提升葡萄糖转运蛋白活性,加速细胞对葡萄糖的摄取与利用[14]。在脂质代谢方面,AMPK不仅能增强甘油三酯脂肪酶(ATGL)等关键酶活性以加速脂肪分解,还能促进胞质内游离脂肪酸向线粒体的转运及氧化。通过以上途径,AMPK有效增加了糖酵解和脂肪酸β氧化的效率,最终提高ATP的合成速率[15]。在细胞能量应激状态下,AMPK还可通过抑制合成代谢途径减少能量消耗,进而维持细胞能量稳态[16]:首先,AMPK能够直接磷酸化并抑制乙酰辅酶A羧化酶(ACC)的活性,阻断脂质合成的起始步骤;其次,通过抑制HMG-CoA还原酶的磷酸化修饰,降低该酶活性,从而抑制脂质与固醇类物质的合成;此外,AMPK还可促进糖原合酶(GS)发生磷酸化,使其活性受到抑制,进而减少糖原的合成与储存[17]。通过上述机制,AMPK能够有效抑制脂质合成、糖原累积等耗能过程,推动细胞快速恢复能量稳态。Cheng等[18]研究发现,南美白对虾(Litopenaeus vannamei)在盐度4的环境胁迫下AMPK的响应激活显著升高,导致机体维持平衡消耗的能量增加,同时降低对溶藻弧菌的抵抗能力。Jin等[19]在拟穴青蟹(Scylla paramamosain)低盐胁迫试验中发现,低盐环境会显著增加细胞内ADP、AMP/ATP比例,提升糖脂代谢速率,同时添加二甲双胍激活AMPK会加速拟穴青蟹对盐度适应。Yang等[20]在大口黑鲈(Micropterus salmoides)急性缺氧诱导试验中发现,急性低氧会激活AMPK-HIF-1α通路,诱导缺氧条件下糖脂代谢过程相关酶的表达,从而维持细胞能量平衡。然而,目前对脊尾白虾(Exopalaemon carinicauda)AMPK相关研究及其在环境胁迫下的能量代谢调控机制研究鲜有报道。
脊尾白虾是中国东部沿海地区的重要养殖虾类,占中国东部混养池塘总产量的三分之一,由于脊尾白虾耐受盐度范围广,并具有生长发育快、抗逆性强等特点[21],已被引入内地低盐水域养殖,有效拓展了养殖空间,提升了低盐水体利用率。然而,随着水产养殖规模逐渐扩大和养殖环境变化,虾类养殖面临环境胁迫和病害频发等问题,而低盐及病原侵染等因素会直接影响脊尾白虾细胞渗透压和能量供应,导致大量能量被用于维持细胞正常的生理环境平衡,进而影响机体正常生长发育[22]。基于AMPK在机体免疫和能量代谢方面发挥的作用,推测AMPK在脊尾白虾应对环境压力及外界病原侵染时可能发挥着一定免疫和代谢调节作用。然而,目前市面上AMPKα抗体较少,且主要针对脊椎动物,在脊尾白虾中的特异性较低,严重阻碍了不同环境胁迫下虾类能量代谢调控机制研究。为了能够获得具有高特异性抗脊尾白虾AMPKα蛋白的抗体,本研究中在蛋白层面对脊尾白虾能量代谢进行深入研究,通过获得AMPKα基因,构建重组表达载体,并利用原核表系统获得脊尾白虾AMPKα蛋白抗原,旨在制备脊尾白虾AMPKα亚基蛋白多克隆抗体,从而解决目前缺乏脊尾白虾AMPKα多克隆抗体的问题,以期为脊尾白虾能量代谢深入研究提供理论依据和支撑。
1 材料与方法
1.1 材料
1.1.1 动物材料 脊尾白虾取自连云港市赣榆佳信水产养殖公司,体长为(5.40±0.31)cm,体质量为(2.52±0.21)g,在盐度23~25,温度22 ℃的50 L水箱中暂养7 d,每天早晚以虾体质量3%投喂饲料。
1.1.2 菌株和载体 原核表达载体pET-22b(+)和原核表达菌株大肠杆菌BL21(DE3)购自生工生物工程(上海)股份有限公司。
1.2 方法
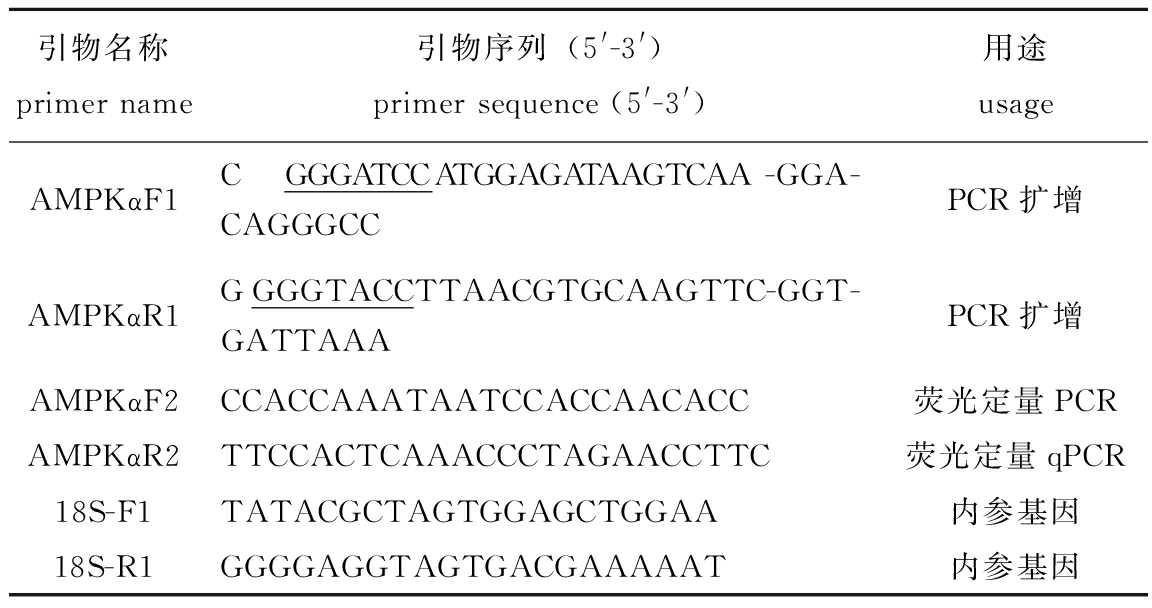
1.2.1 脊尾白虾AMPKa基因的克隆 根据实验室脊尾白虾转录组数据库基因序列,利用Primer Premier 5.0软件进行AMPKα上、下游扩增引物AMPKα-F1/R1(表1)设计,并交由上海生工生物工程有限公司合成。以脊尾白虾为试验样本,使用RNA抽提试剂(UNlQ-10柱式Trizol总RNA抽提试剂盒,上海生工)提取各组织RNA并利用琼脂糖凝胶电泳验证其完整性,利用RNA逆转录试剂盒(TransScript® One-Step gDNA Removal and cDNA Synthesis SuperMix)对RNA进行反转录,将所得到的cDNA进行PCR扩增。反应体系(50 μL):cDNA 2 μL,上、下游引物各2 μL,无菌水19 μL,2×Taq Plus Master Mix Ⅱ(Dye Plus)25 μL。反应程序:95 ℃下预变性5 min,95 ℃下变性30 s,60 ℃下退火30 s,72 ℃下延伸2 min,共进行30个循环。产物经过10 g/L琼脂糖凝胶电泳后在荧光可见凝胶成像系统拍照并回收目的条带,纯化后的产物和带有BamHI和KpnI酶切位点的pET-22b(+)表达载体进行双酶切后进行连接反应,构成重组质粒pET-22b-AMPKα,继而将重组质粒转化至大肠杆菌DH5α化学感受态细胞中,挑取阳性菌落进行菌液PCR验证后送至生工生物工程(上海)股份有限公司进行测序。
表1 引物序列
Tab.1 Primers used in this study
引物名称primer name引物序列(5'-3')primer sequence (5'-3')用途usageAMPKαF1CGGGATCCATGGAGATAAGTCAA-GGA-CAGGGCCPCR扩增AMPKαR1GGGGTACCTTAACGTGCAAGTTC-GGT-GATTAAAPCR扩增AMPKαF2CCACCAAATAATCCACCAACACC荧光定量PCRAMPKαR2TTCCACTCAAACCCTAGAACCTTC荧光定量qPCR18S-F1TATACGCTAGTGGAGCTGGAA内参基因18S-R1GGGGAGGTAGTGACGAAAAAT内参基因
注:下划线表示BamHI和KpnI酶切位点序列。
Note:Underlined regions in the table represent the BamHI and KpnI restriction site sequences.
1.2.2 生物信息学分析 通过Expasy在线网站(https://www.expasy.org/)的ProtParam工具对AMPK蛋白质的理化性质进行分析,利用ProtScale进行蛋白质亲水性分析。通过SignalP-4.1,TMHMM和SOPMA预测蛋白质信号肽、跨膜区和二级结构。利用DNAMAN和MEGA11进行氨基酸序列多序列比对和系统进化树构建。
1.2.3 荧光定量PCR 基于获得的AMPKα基因CDS序列,使用Primer Premier 5.0软件设计荧光定量引物AMPKαF2/R2,以18S rRNA为内参基因,提取脊尾白虾各组织RNA,并反转录为cDNA作为模板进行实时荧光定量PCR(LightCycler 96,瑞士),对各组织相对表达量进行分析。具体反应体系为cDNA 4 μL,上、下游引物各0.4 μL,2×PerfectStartTMGreen qPCR SuperMix 10 μL,Nuclease-free Water 5.2 μL。反应程序为94 ℃ 下预变性30 s,94 ℃下变性 5 s,60 ℃ 下退火30 s,共进行40个循环。以2-ΔΔCt方法计算AMPKα各组织相对表达量。
1.2.4 载体构建、原核表达与蛋白纯化 将测序正确的pET-22b-AMPKα重组质粒转化至大肠杆菌 BL21(DE3)感受态细胞中,将复苏菌液均匀涂布到含有卡那霉素的LB固体培养基上,挑取单菌落到含卡那霉素的LB液体培养基中,并在37 ℃下以200 r/min培养4 h,至菌液OD600 nm为0.6~0.8后,分别向不同菌液中加入IPTG至终浓度分别为0.2、1 mmol/L进行诱导表达,继续 37 ℃下诱导4 h后将不同条件培养菌液转移至不同离心管中,以12 000 r/min 离心5 min收集沉淀,加入20 μL的5×上样缓冲液和80 μL的1×PBS缓冲液重悬沉淀,100 ℃水浴5 min后进行SDS-PAGE检测。取上一步各条件菌液离心收集菌体,加入缓冲液破碎(Tris-NaCl buffer),上清沉淀分别制样,进行SDS-PAGE分析。
选取表达最优克隆菌株37 ℃扩大培养于LB培养基至OD600 nm=0.6~0.8,37 ℃诱导4 h收菌,将所得菌体以12 000 r/min离心10 min,收集沉淀,用1×PBS缓冲液重悬菌体后超声破碎,离心收集沉淀,再加入10 mL变性缓冲液(8 mol/L尿素,50 mmol/L Tris,300 mmol/L NaCL,pH 8.0)处理2 h,离心收集上清液,上清液进行Ni柱亲和层析纯化,收集咪唑(250 mmol/L)洗脱的亲和纯化蛋白进行SDS-PAGE分析。
1.2.5 AMPKα多克隆抗体制备和效价检测 取0.5 mg的纯化蛋白作为抗原免疫新西兰兔,整个过程包括1次免疫和3次加强免疫,在第41天采集颈动脉血清进行酶联免疫吸附效价检测。之后对血清抗体浓缩纯化,并通过SDS-PAGE电泳分析抗体纯度和特异性。
1.2.6 Western blot检测抗体特异性 通过Western blot检测抗体特异性,并通过制备的抗体检测脊尾白虾鳃组织中AMPKα的表达情况。采用RIPA裂解液提取脊尾白虾鳃组织总蛋白。按照标准方法配制SDS-PAGE凝胶,取50 ng的脊尾白虾鳃组织总蛋白,并加入5 μL蛋白上样缓冲液,95 ℃下高温变性5 min混匀离心后置于冰上,将变性后的蛋白质产物全部加入到胶孔中,120 V恒压电泳1 h。提前将0.45 μm孔径PVDF膜用甲醇激活后与吸水滤纸在转膜缓冲液中充分浸透,25 V恒压转膜45 min,将蛋白质吸附到PVDF膜上,用5%牛血清白蛋白封闭液室温封闭1 h,将AMPKα的抗体1∶1 000稀释作为一抗,4 ℃孵育过夜。1×TBST洗膜3次,加入HRP标记的山羊抗兔二抗(爱博泰克AS014)(1∶10 000)孵育1 h后,用1×TBST洗膜3次,DAB显色反应后得到免疫印迹结果图。同时用购买的商用AMPKα抗体作为一抗,在相同试验条件下进行免疫印迹分析,以此作为对照来验证所制备抗体的特异性。
1.3 数据处理
试验数据均以平均值±标准差(mean±S.D.)表示,利用SPSS 23.0软件进行单因素方差分析(ANOVA),采用Tukey HSD法进行多重比较,显著性水平设为0.05。
2 结果与分析
2.1 生物信息学分析
2.1.1 AMPKα理化性质和分子特征 脊尾白虾AMPKα序列CDS区序列全长为1 587 bp,可编码528个氨基酸,含量最高和最低的氨基酸分别是色氨酸(46)和亮氨酸(4),AMPKα分子式为C2 689H4 229N725O771S24,预测分子量约为59 820,总平均亲水系数为-0.283,为亲水性蛋白,等电点为8.26。含有61个带负电氨基酸(31个Asp和30个Glu),以及64个带正电氨基酸(24个Arg和40个Lys)。不含典型的跨膜结构域和信号肽,说明其可能为非跨膜蛋白和胞内蛋白,可以同时定位于细胞质、细胞核、线粒体、内质网和高尔基体,占比分别为56.5%,26.1%,8.7%,4.3%和4.3%。含有158个α螺旋、76个直链延伸和294个无规卷曲(图1)。
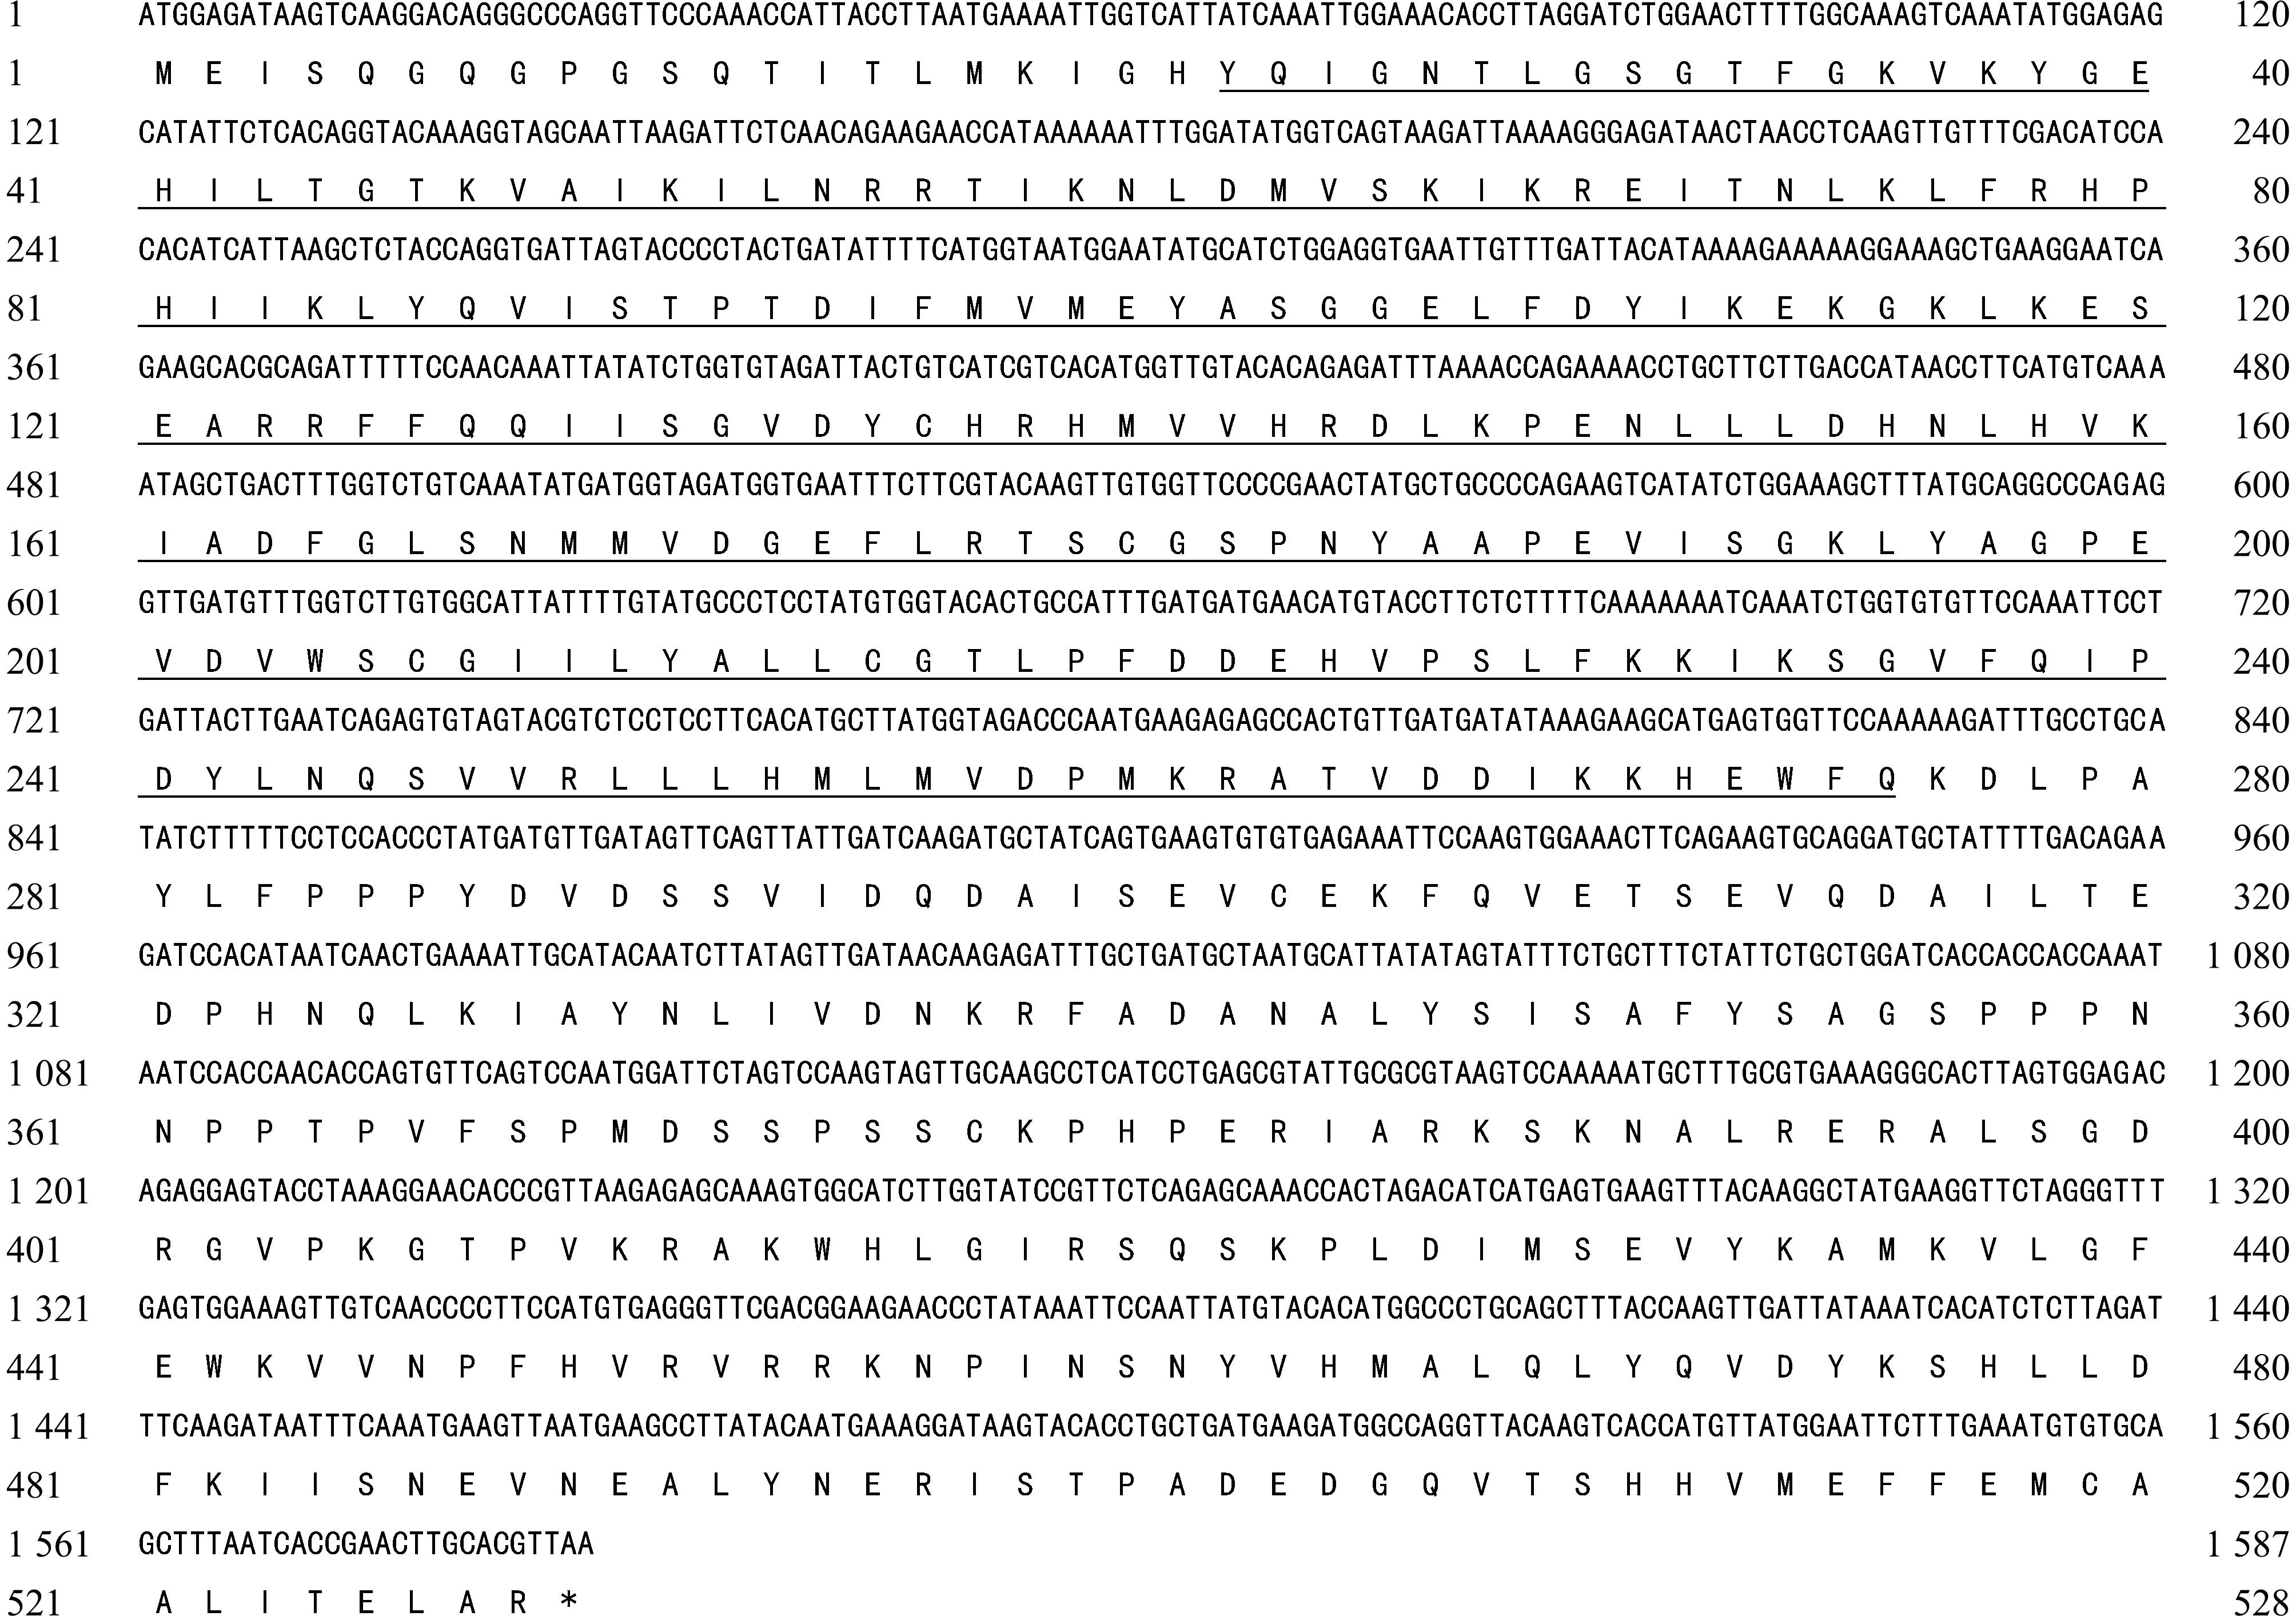
下划线序列为S-TKc结构域;*表示终止密码子。
Underlined sequence is the S-TKc domain;* means stop codon.
图1 脊尾白虾AMPKα基因序列分析
Fig.1 Sequence analysis of AMPKα gene in Exopalaemon carinicauda
2.1.2 AMPKα序列比对及系统进化树分析 通过对脊尾白虾AMPKα氨基酸序列与其他物种进行多序列比对,结果显示,脊尾白虾氨基酸序列与其他虾蟹类,如日本沼虾(Macrobrachium nipponense)、夏威夷火山虾(Halocaridina rubra)、四脊滑螯虾(Cherax quadricarinatus)、克氏原螯虾(Procambarus clarkii)、瓷蟹(Petrolisthes manimaculis)、锦绣龙虾(Panulirus ornatus)、美洲螯龙虾(Homarus americanus)、中华绒螯蟹(Eriocheir sinensis)和三疣梭子蟹(Portunus trituberculatus)具有较高的一致性,与日本沼虾一致性最高,结果表明,AMPKα的S_TKc结构域是高度保守的,这表明AMPK蛋白在整个进化过程中均不可缺少。研究中构建了AMPK氨基酸序列的系统发育树,结果表明,脊尾白虾与日本沼虾和夏威夷火山虾聚为一大枝,与日本沼虾聚为一小支,表明脊尾白虾AMPKα与日本沼虾进化距离最近,说明AMPKa在不同虾种之间的保守性较高,为深入探究AMPKα在甲壳动物乃至其他物种中的分子进化机制及功能研究提供了重要参考依据(图2、图3)。
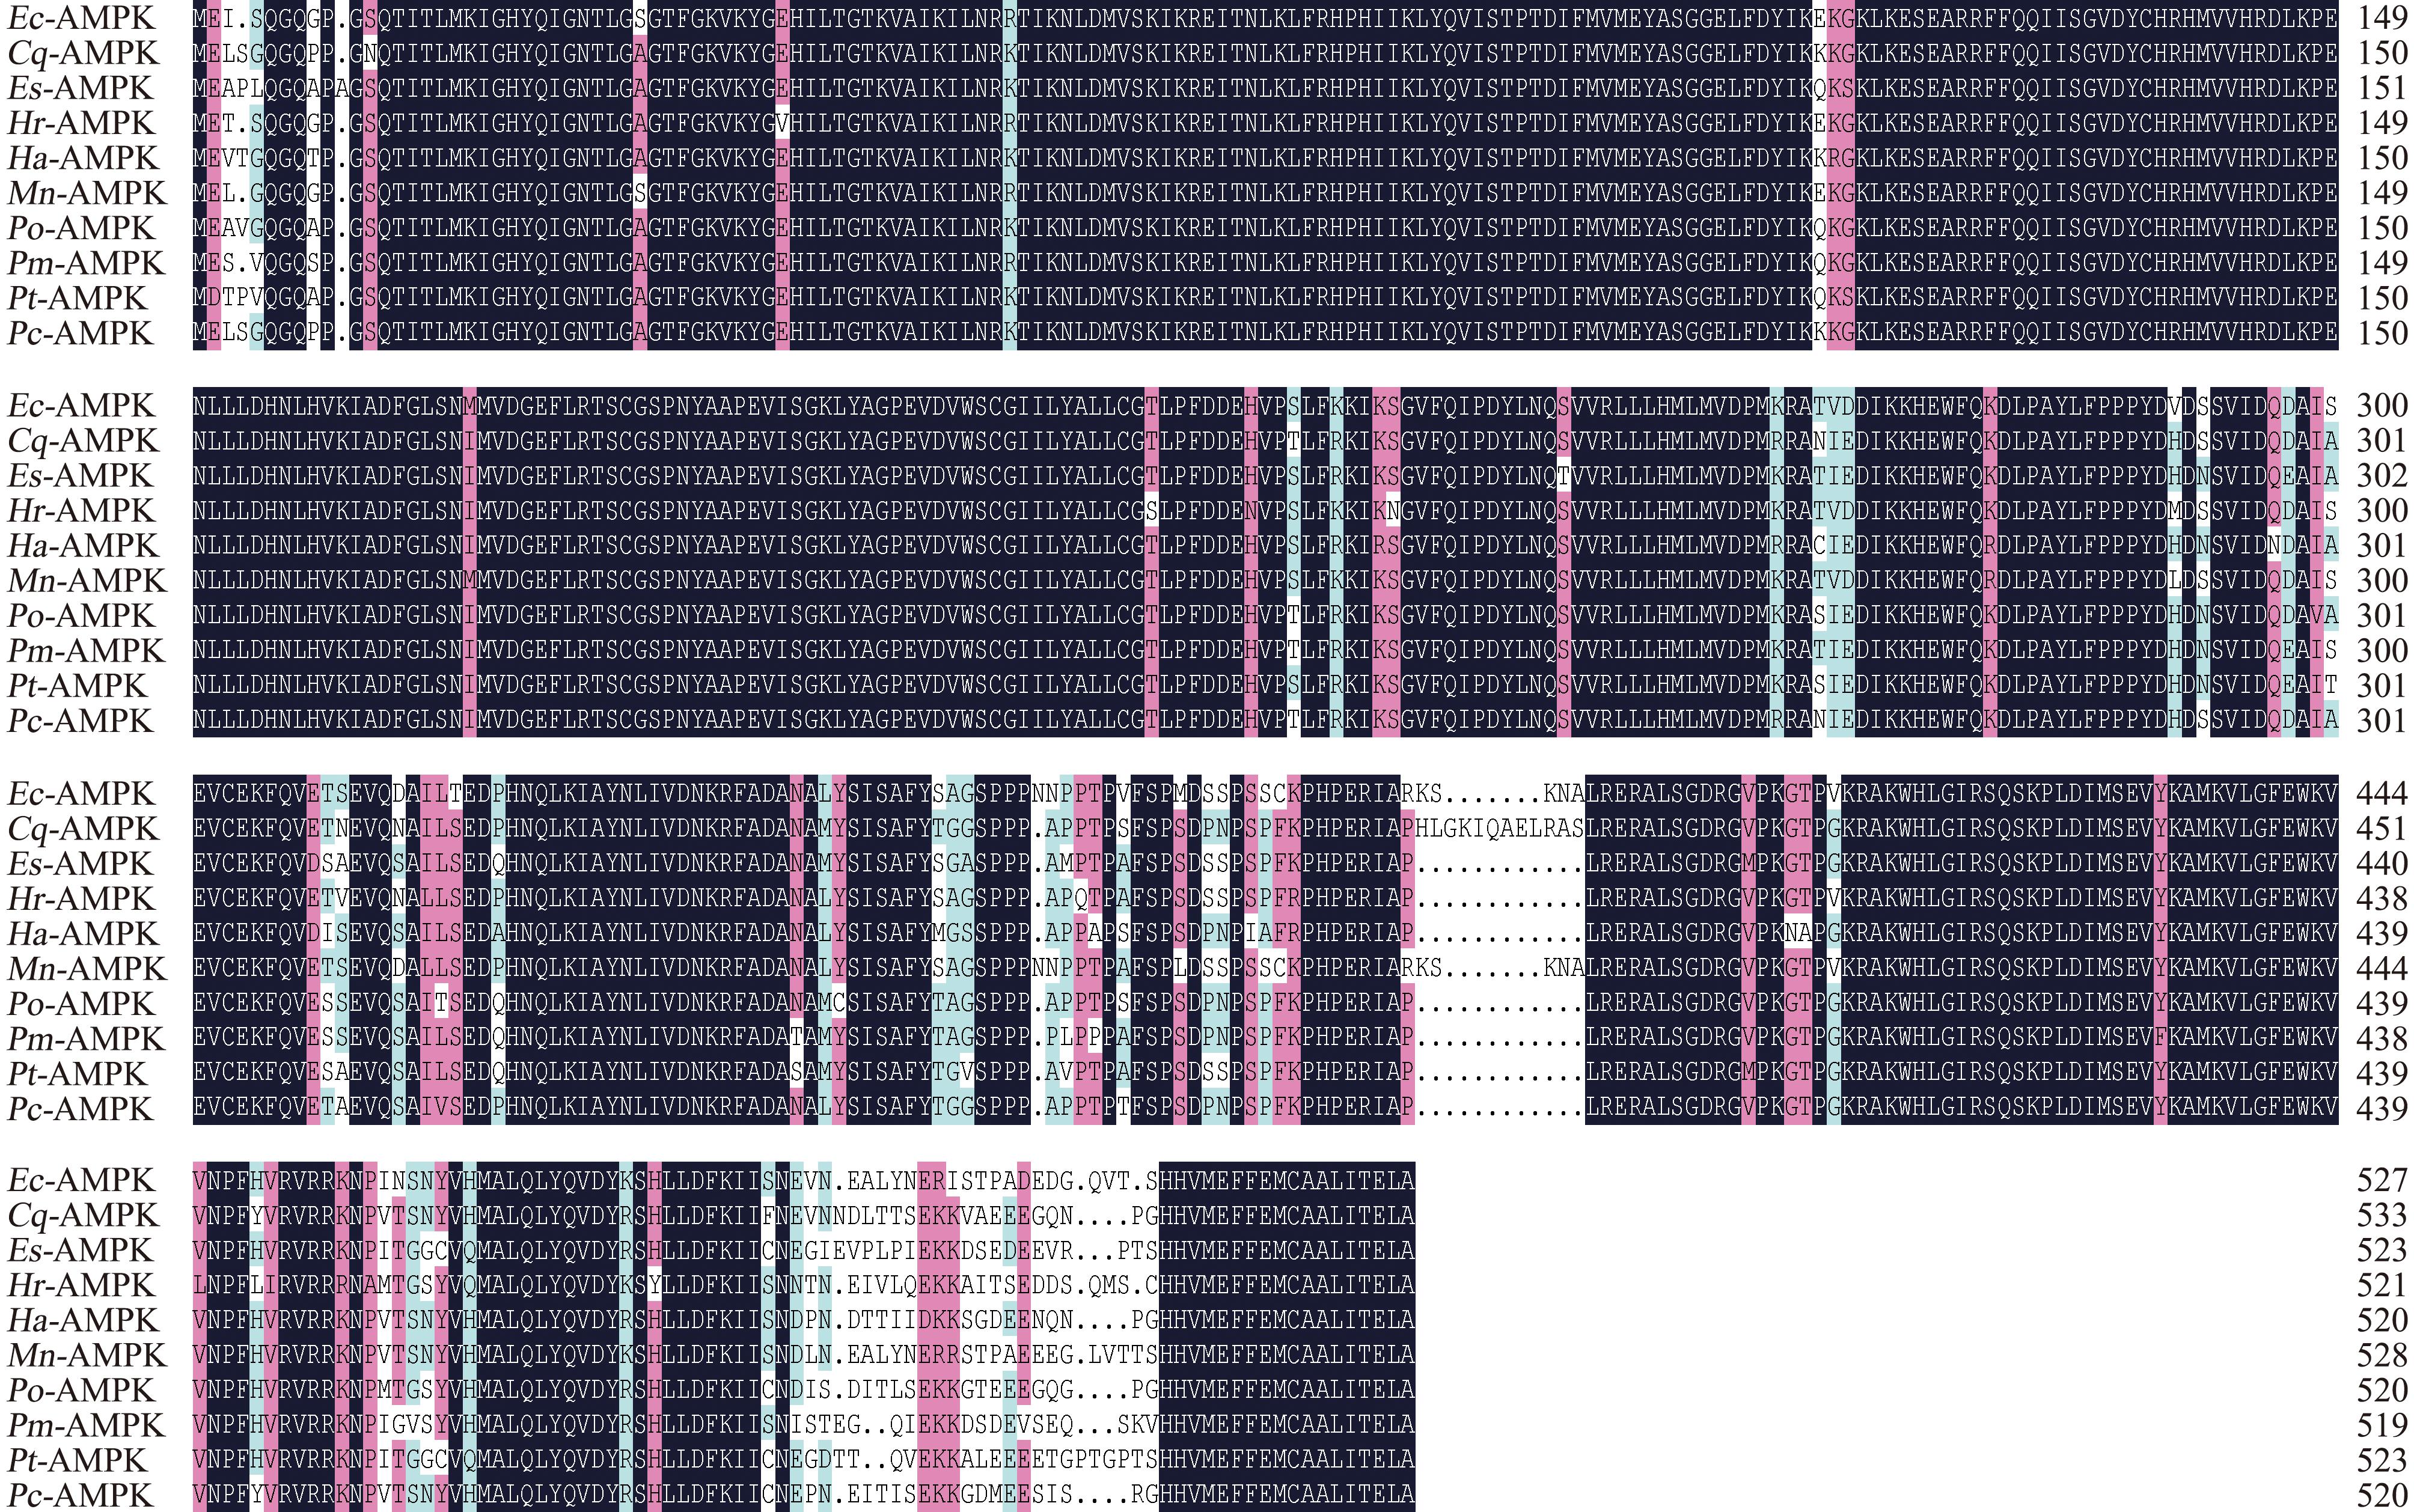
Ec-AMPK—脊尾白虾;Cq-AMPK—四脊滑螯虾;Es-AMPK—中华绒螯蟹;Hr-AMPK—夏威夷火山虾;Ha-AMPK—美洲螯龙虾;Mn-AMPK—日本沼虾;Po-AMPK—锦绣龙虾;Pm-AMPK—瓷蟹;Pt-AMPK—三疣梭子蟹;Pc-AMPK—克氏原螯虾。
Ec-AMPK—Exopalaemon carinicauda;Cq-AMPK—Cherax quadricarinatus;Es-AMPK—Eriocheir sinensis;Hr-AMPK—Halocaridina rubra;Ha-AMPK—Homarus americanus;Mn-AMPK—Macrobrachium nipponense;Po-AMPK—Panulirus ornatus;Pm-AMPK—Petrolisthes manimaculis;Pt-AMPK—Portunus trituberculatus;Pc-AMPK—Procambarus clarkia.
图2 脊尾白虾AMPKα与其他物种氨基酸序列比对
Fig.2 Comparison of AMPKα amino acid sequence between Exopalaemon carinicauda and other species
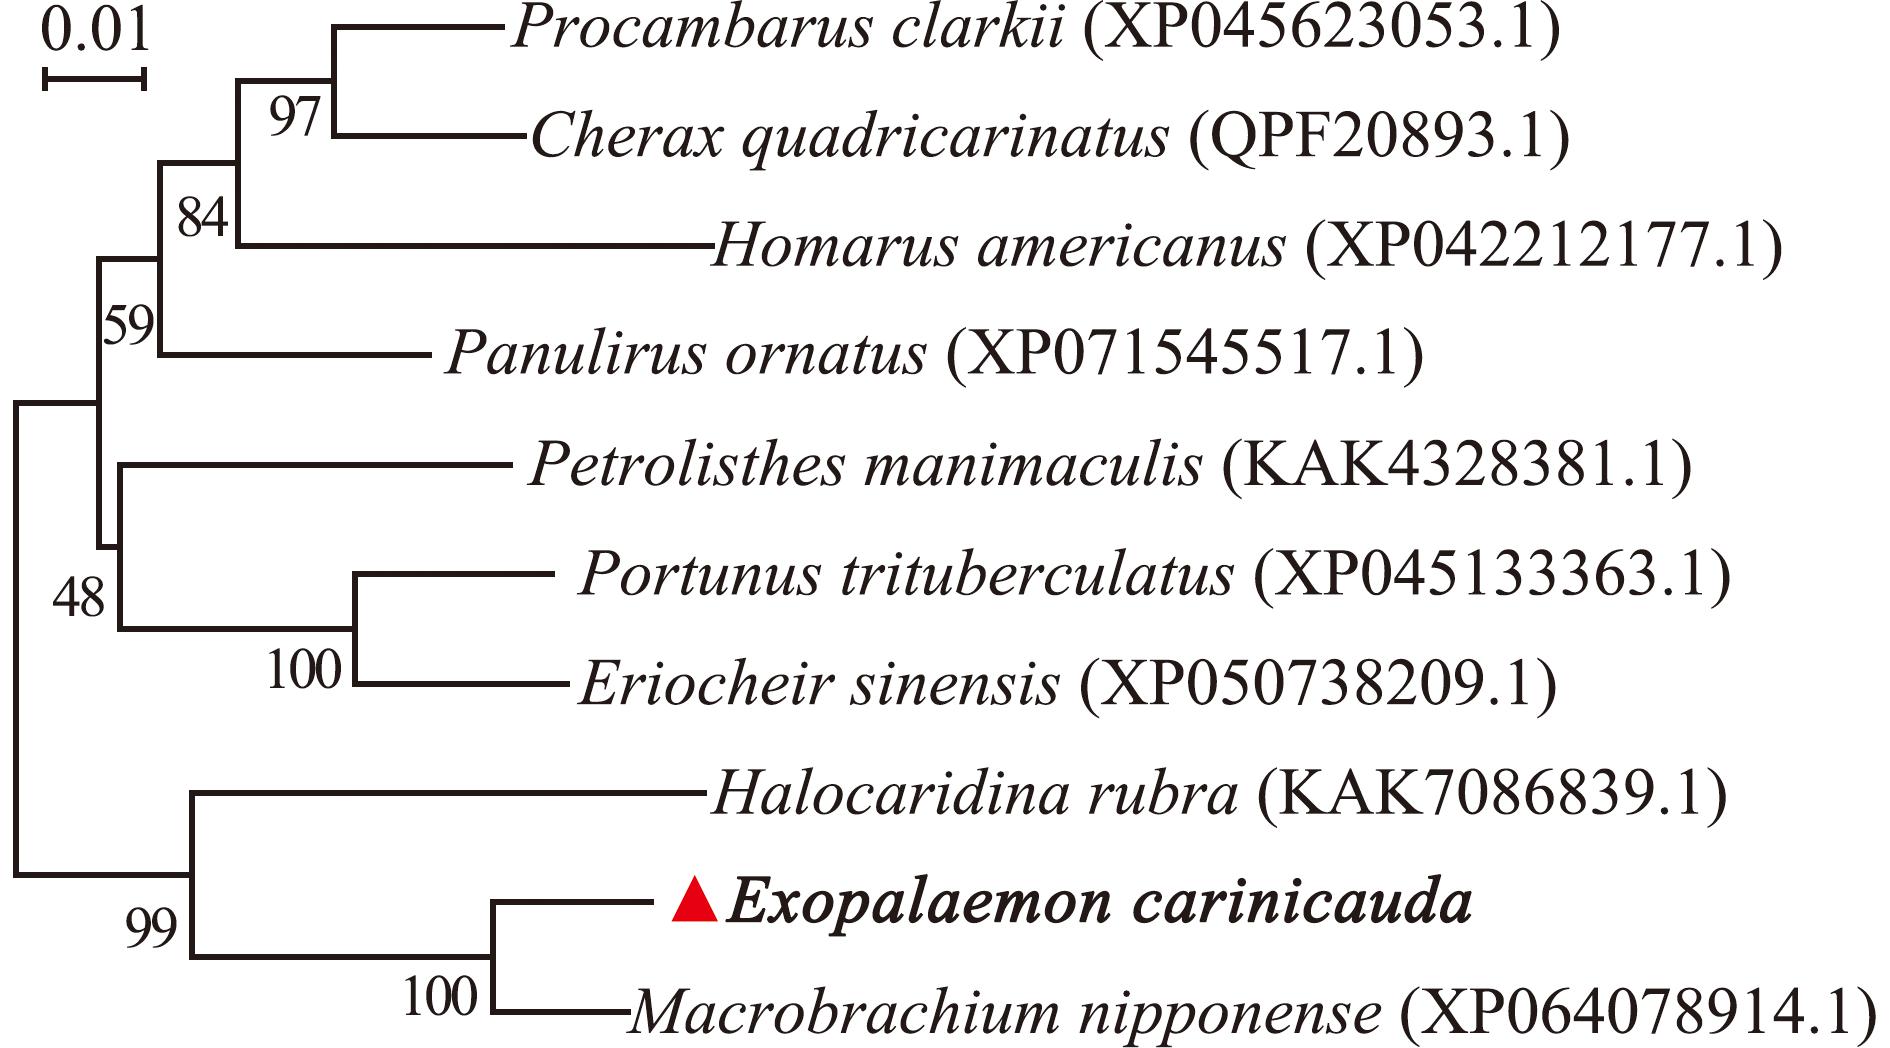
图3 不同物种AMPKα氨基酸序列系统进化树分析
Fig.3 Phylogenetic tree of AMPKα amino acid sequence in different species
2.2 脊尾白虾AMPKα基因在不同组织中的表达分析
实时荧光定量PCR结果表明,脊尾白虾AMPKα基因在鳃、肌肉、肝胰腺、胃、肠道、血淋巴和心脏组织均有表达,从图4可见,AMPKα在心脏的表达量最高,其次是肌肉,在血淋巴和肝胰腺表达量较低,鳃、胃和肠道组织中AMPKα表达量相近,均显著低于肌肉和心脏中的表达量,其各组织表达模式与文蛤中各组织AMPKα表达模式相似[23]。
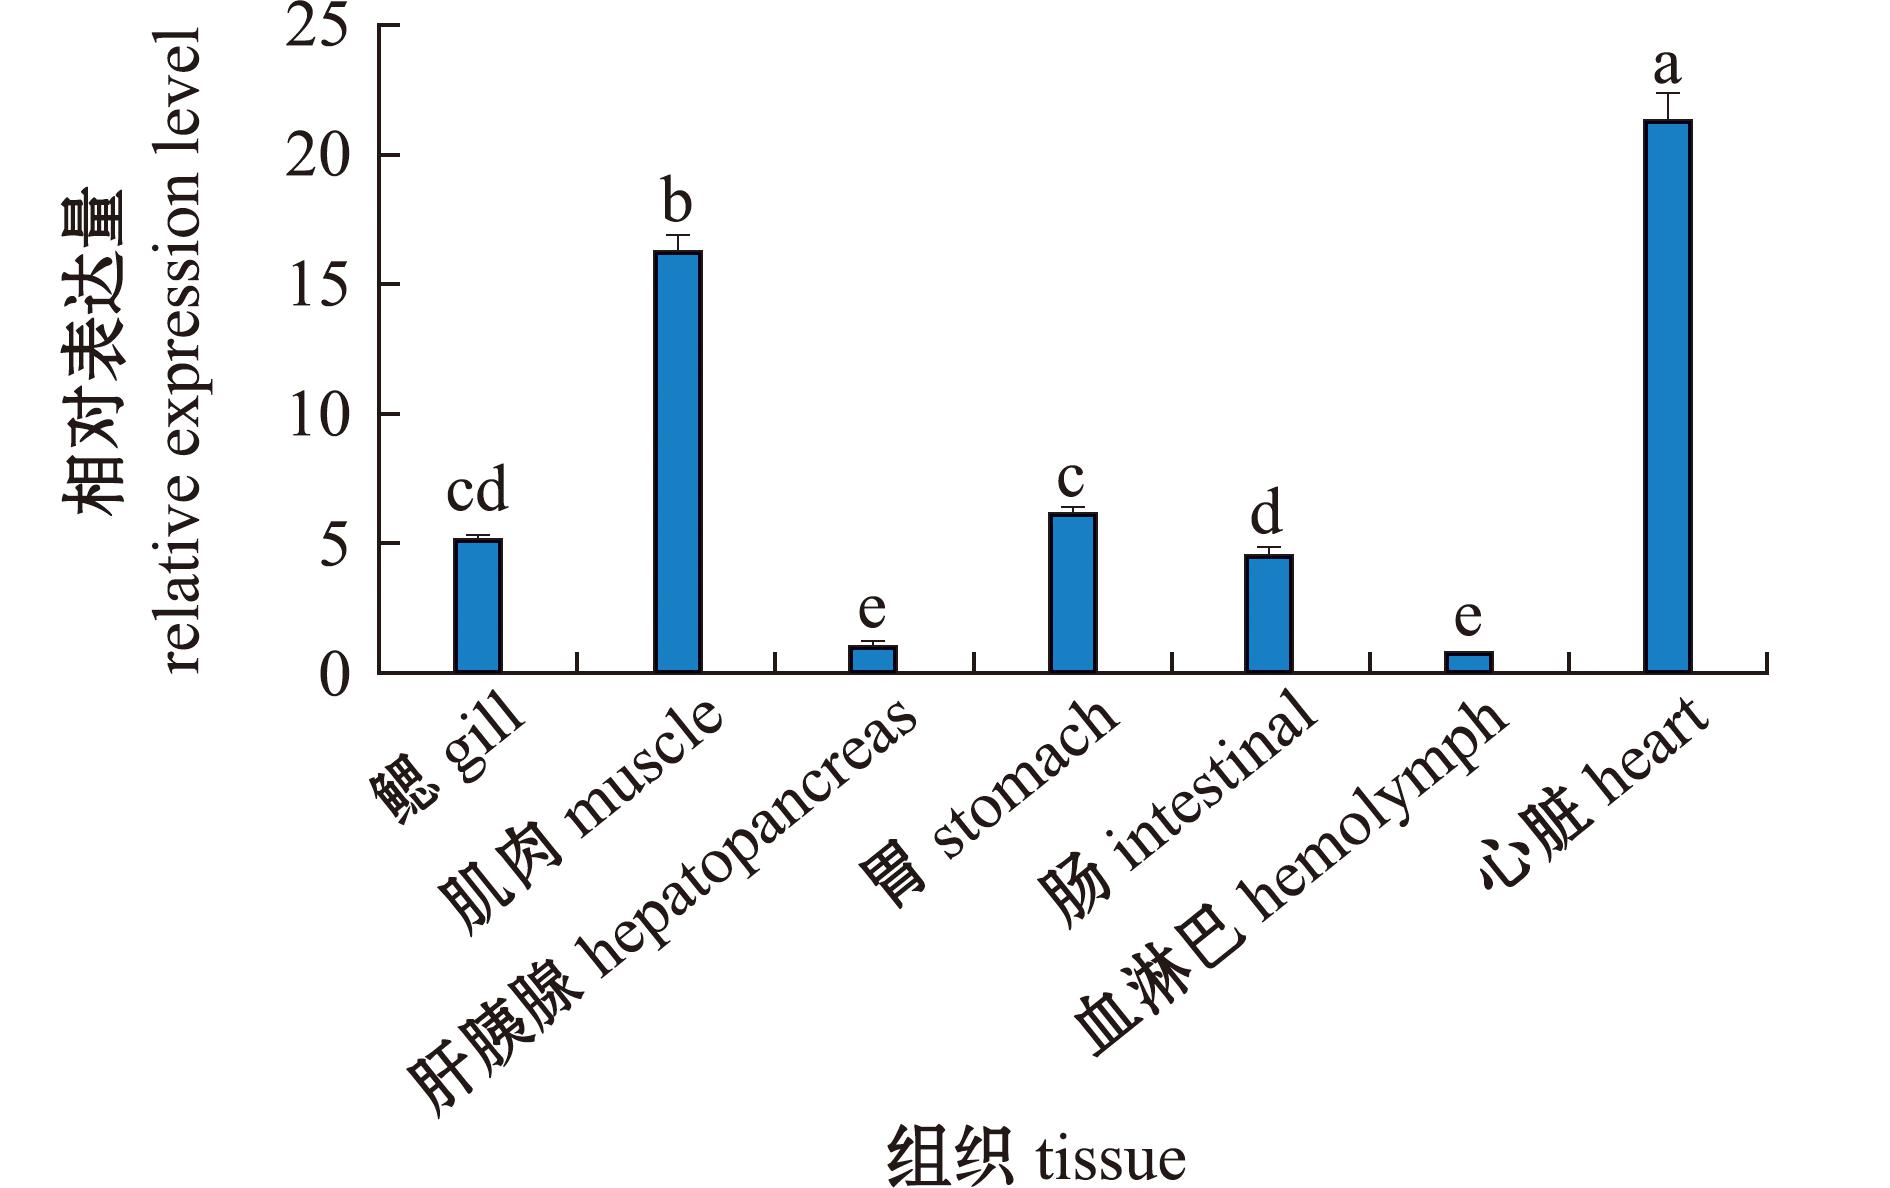
标有不同小写字母者表示组间有显著性差异(P<0.05),标有相同小写字母者表示组间无显著性差异(P>0.05)。
The means with different letters are significant differences at the 0.05 probability level,and the means with the same letters are not significant differences.
图4 AMPKα基因在各组织中的表达情况
Fig.4 Expression level of AMPKα gene in different tissues
2.3 AMPKα原核表达和多克隆抗体
SDS-PAGE结果显示,IPTG诱导表达的融合蛋白分子量大小约为60 000(图5(a)),与预测分子量大小一致。Western blot检测到的条带对应分子量为60 000(图5(b)),结果表明成功诱导表达出AMPK融合蛋白。对纯化后的蛋白进行SDS-PAGE电泳,结果表明,其蛋白条带单一(图6),且通过BCA法测定纯化后的蛋白浓度达到1.0 mg/mL。血清ELISA检测结果如图7(a)所示,抗AMPKα血清达到128 000的抗体效价,纯化后的蛋白抗体SDS-PAGE电泳结果如图7(b)所示,在55 000附近出现明显条带,表明制备的抗体效价和灵敏度较高。
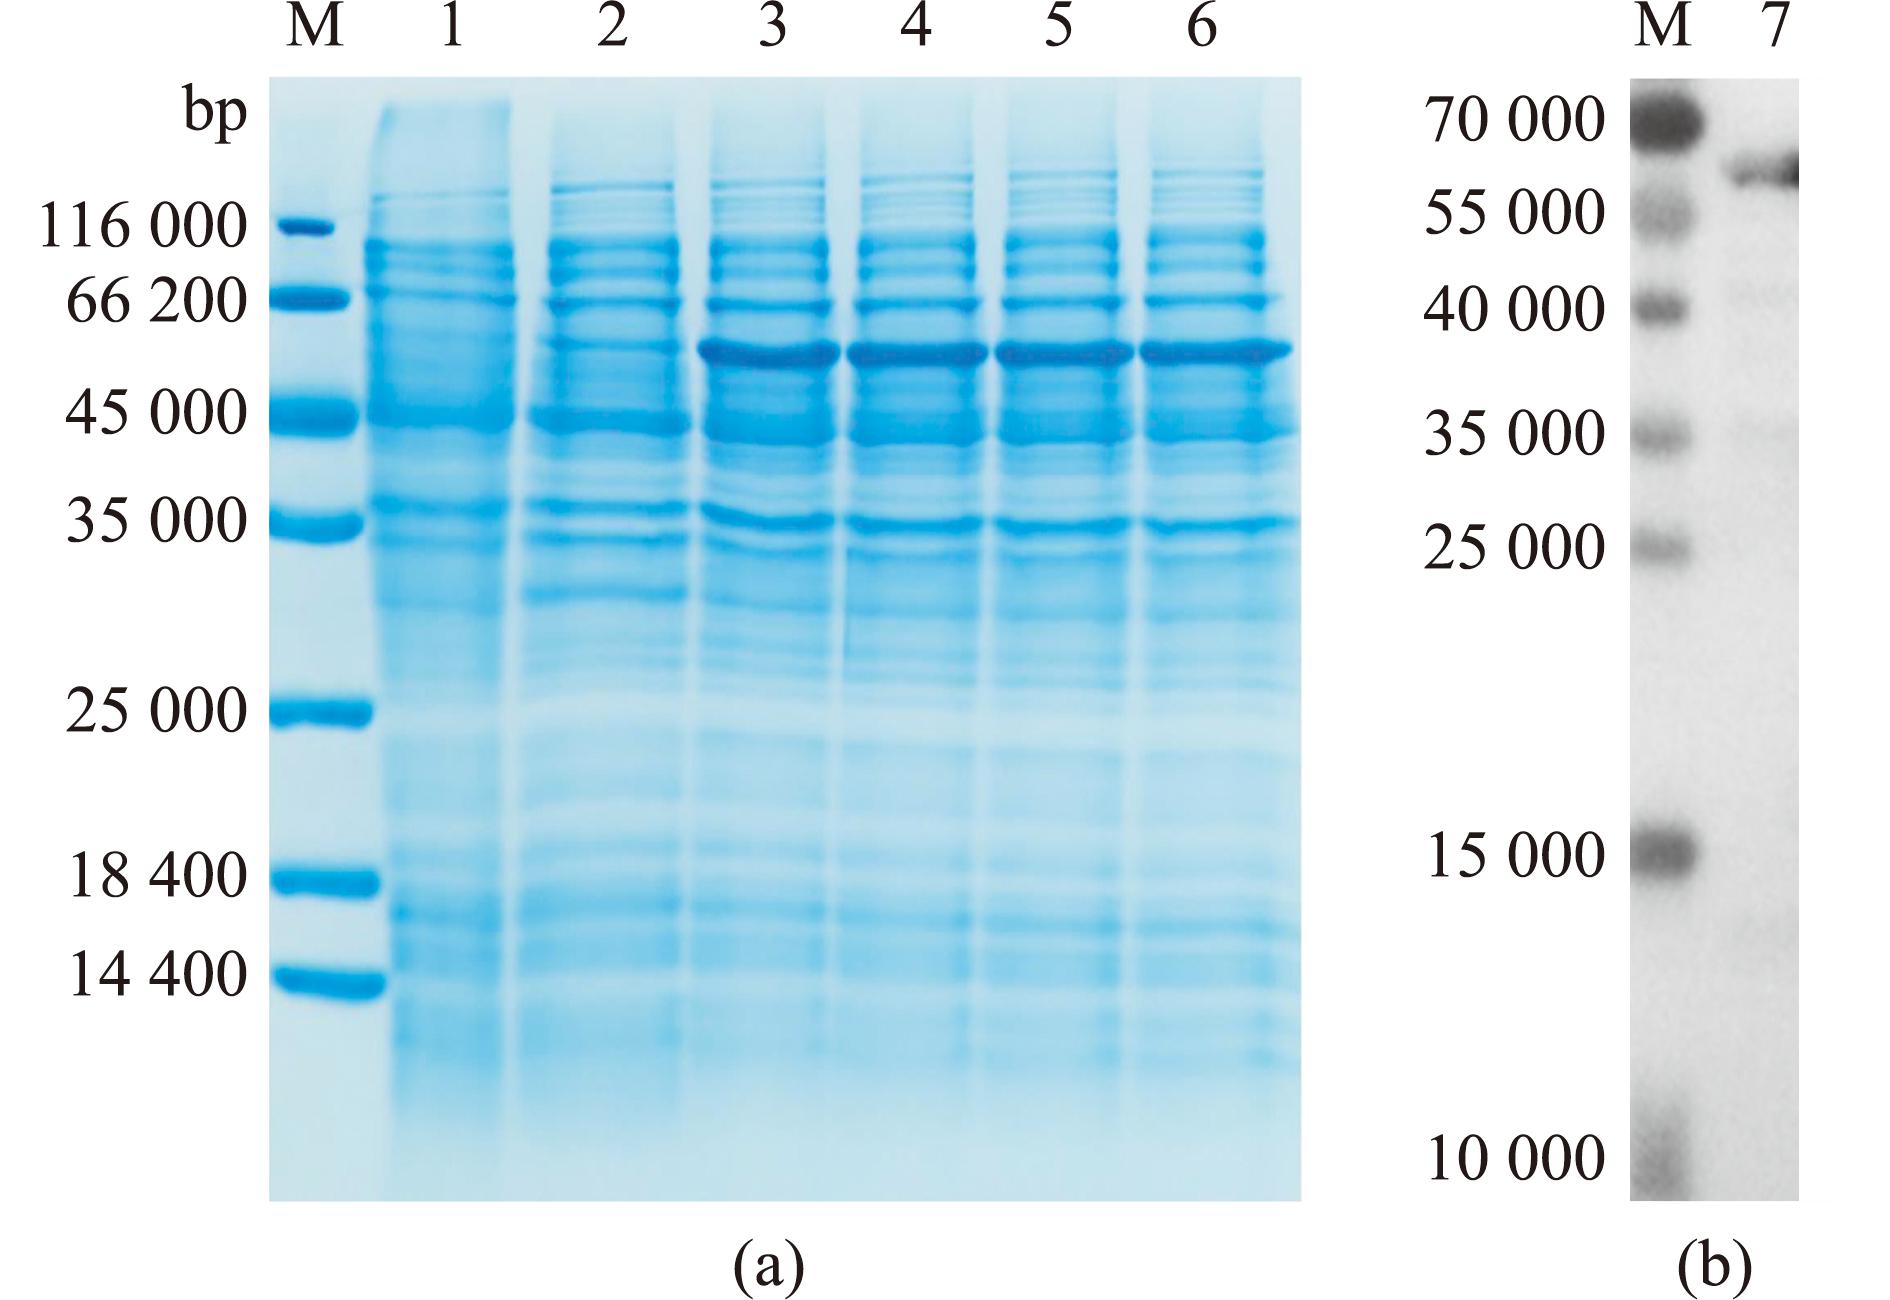
M—标准分子量;1—未诱导样品;2~6—诱导后样品;7—重组蛋白Western blot结果。
M—marker;1—uninduced sample;2-6—induced samples;7—Western blot results of recombinant proteins.
图5 AMPKα蛋白表达鉴定
Fig.5 Expression identification of AMPKα protein
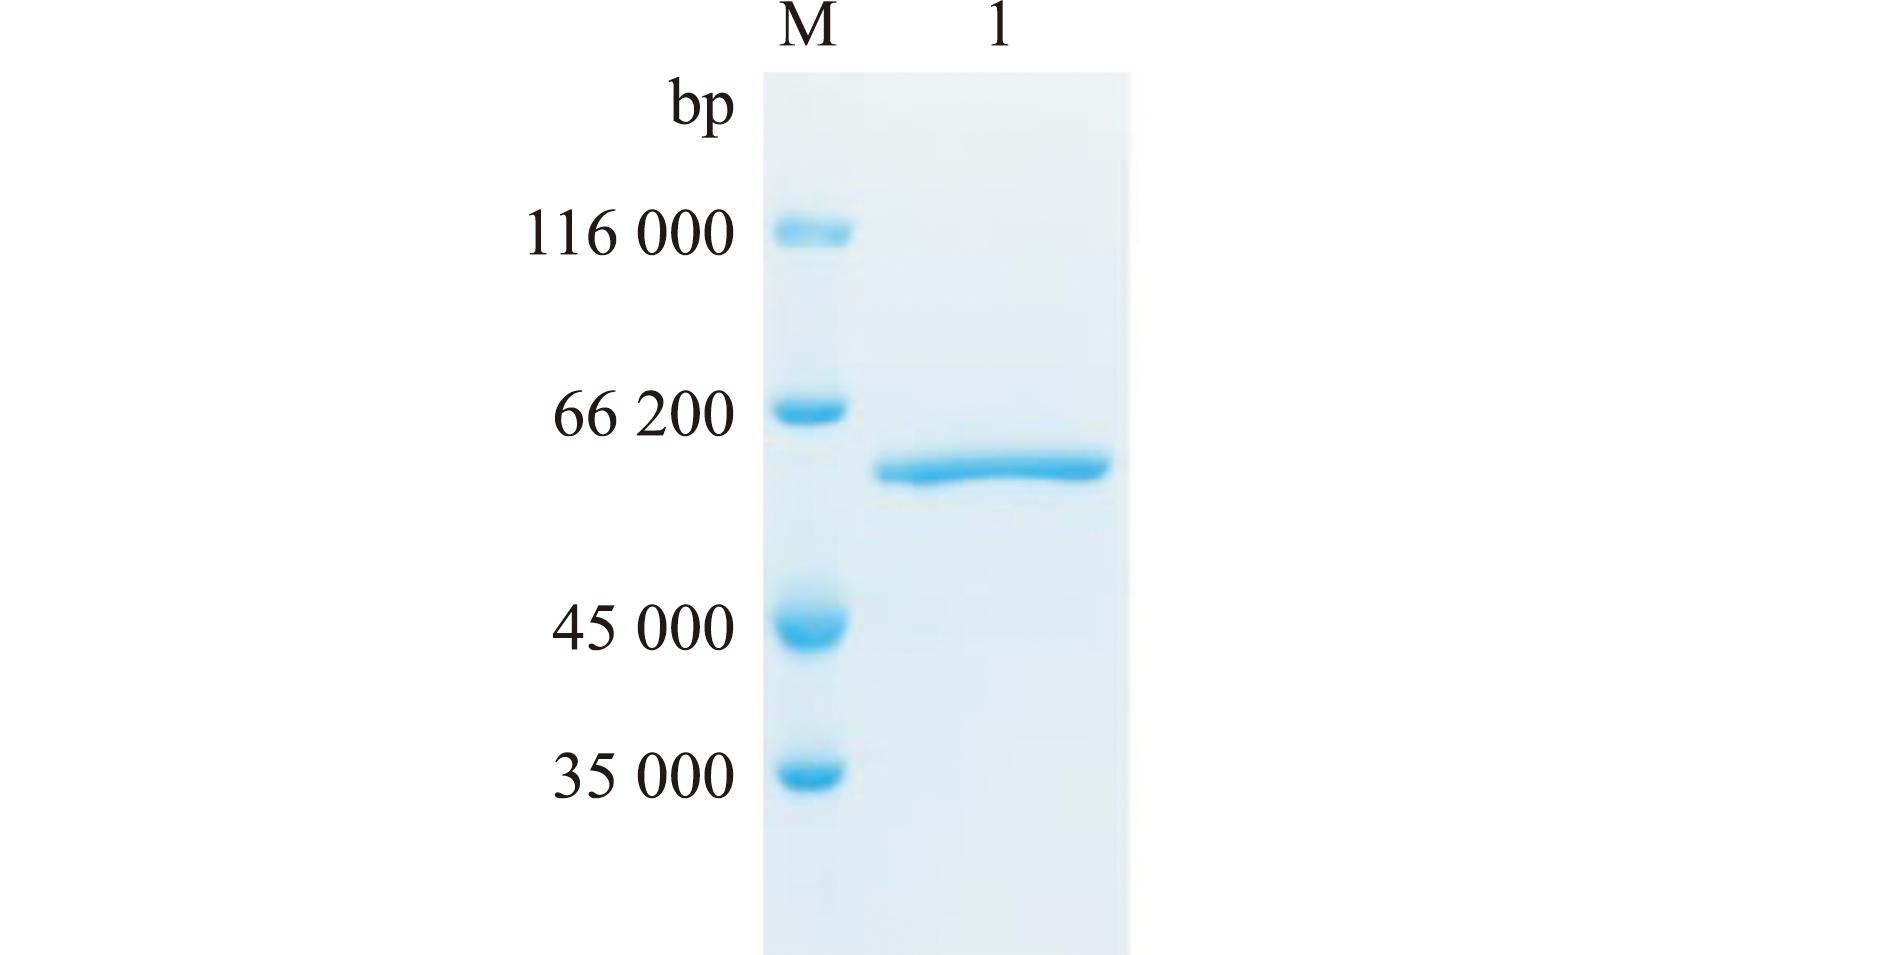
M—标准分子量;1—纯化后的重组蛋白。
M—marker;1—purified recombinant protein.
图6 重组蛋白纯化后的SDS-PAGE结果
Fig.6 SDS-PAGE results after purification of recombinant proteins
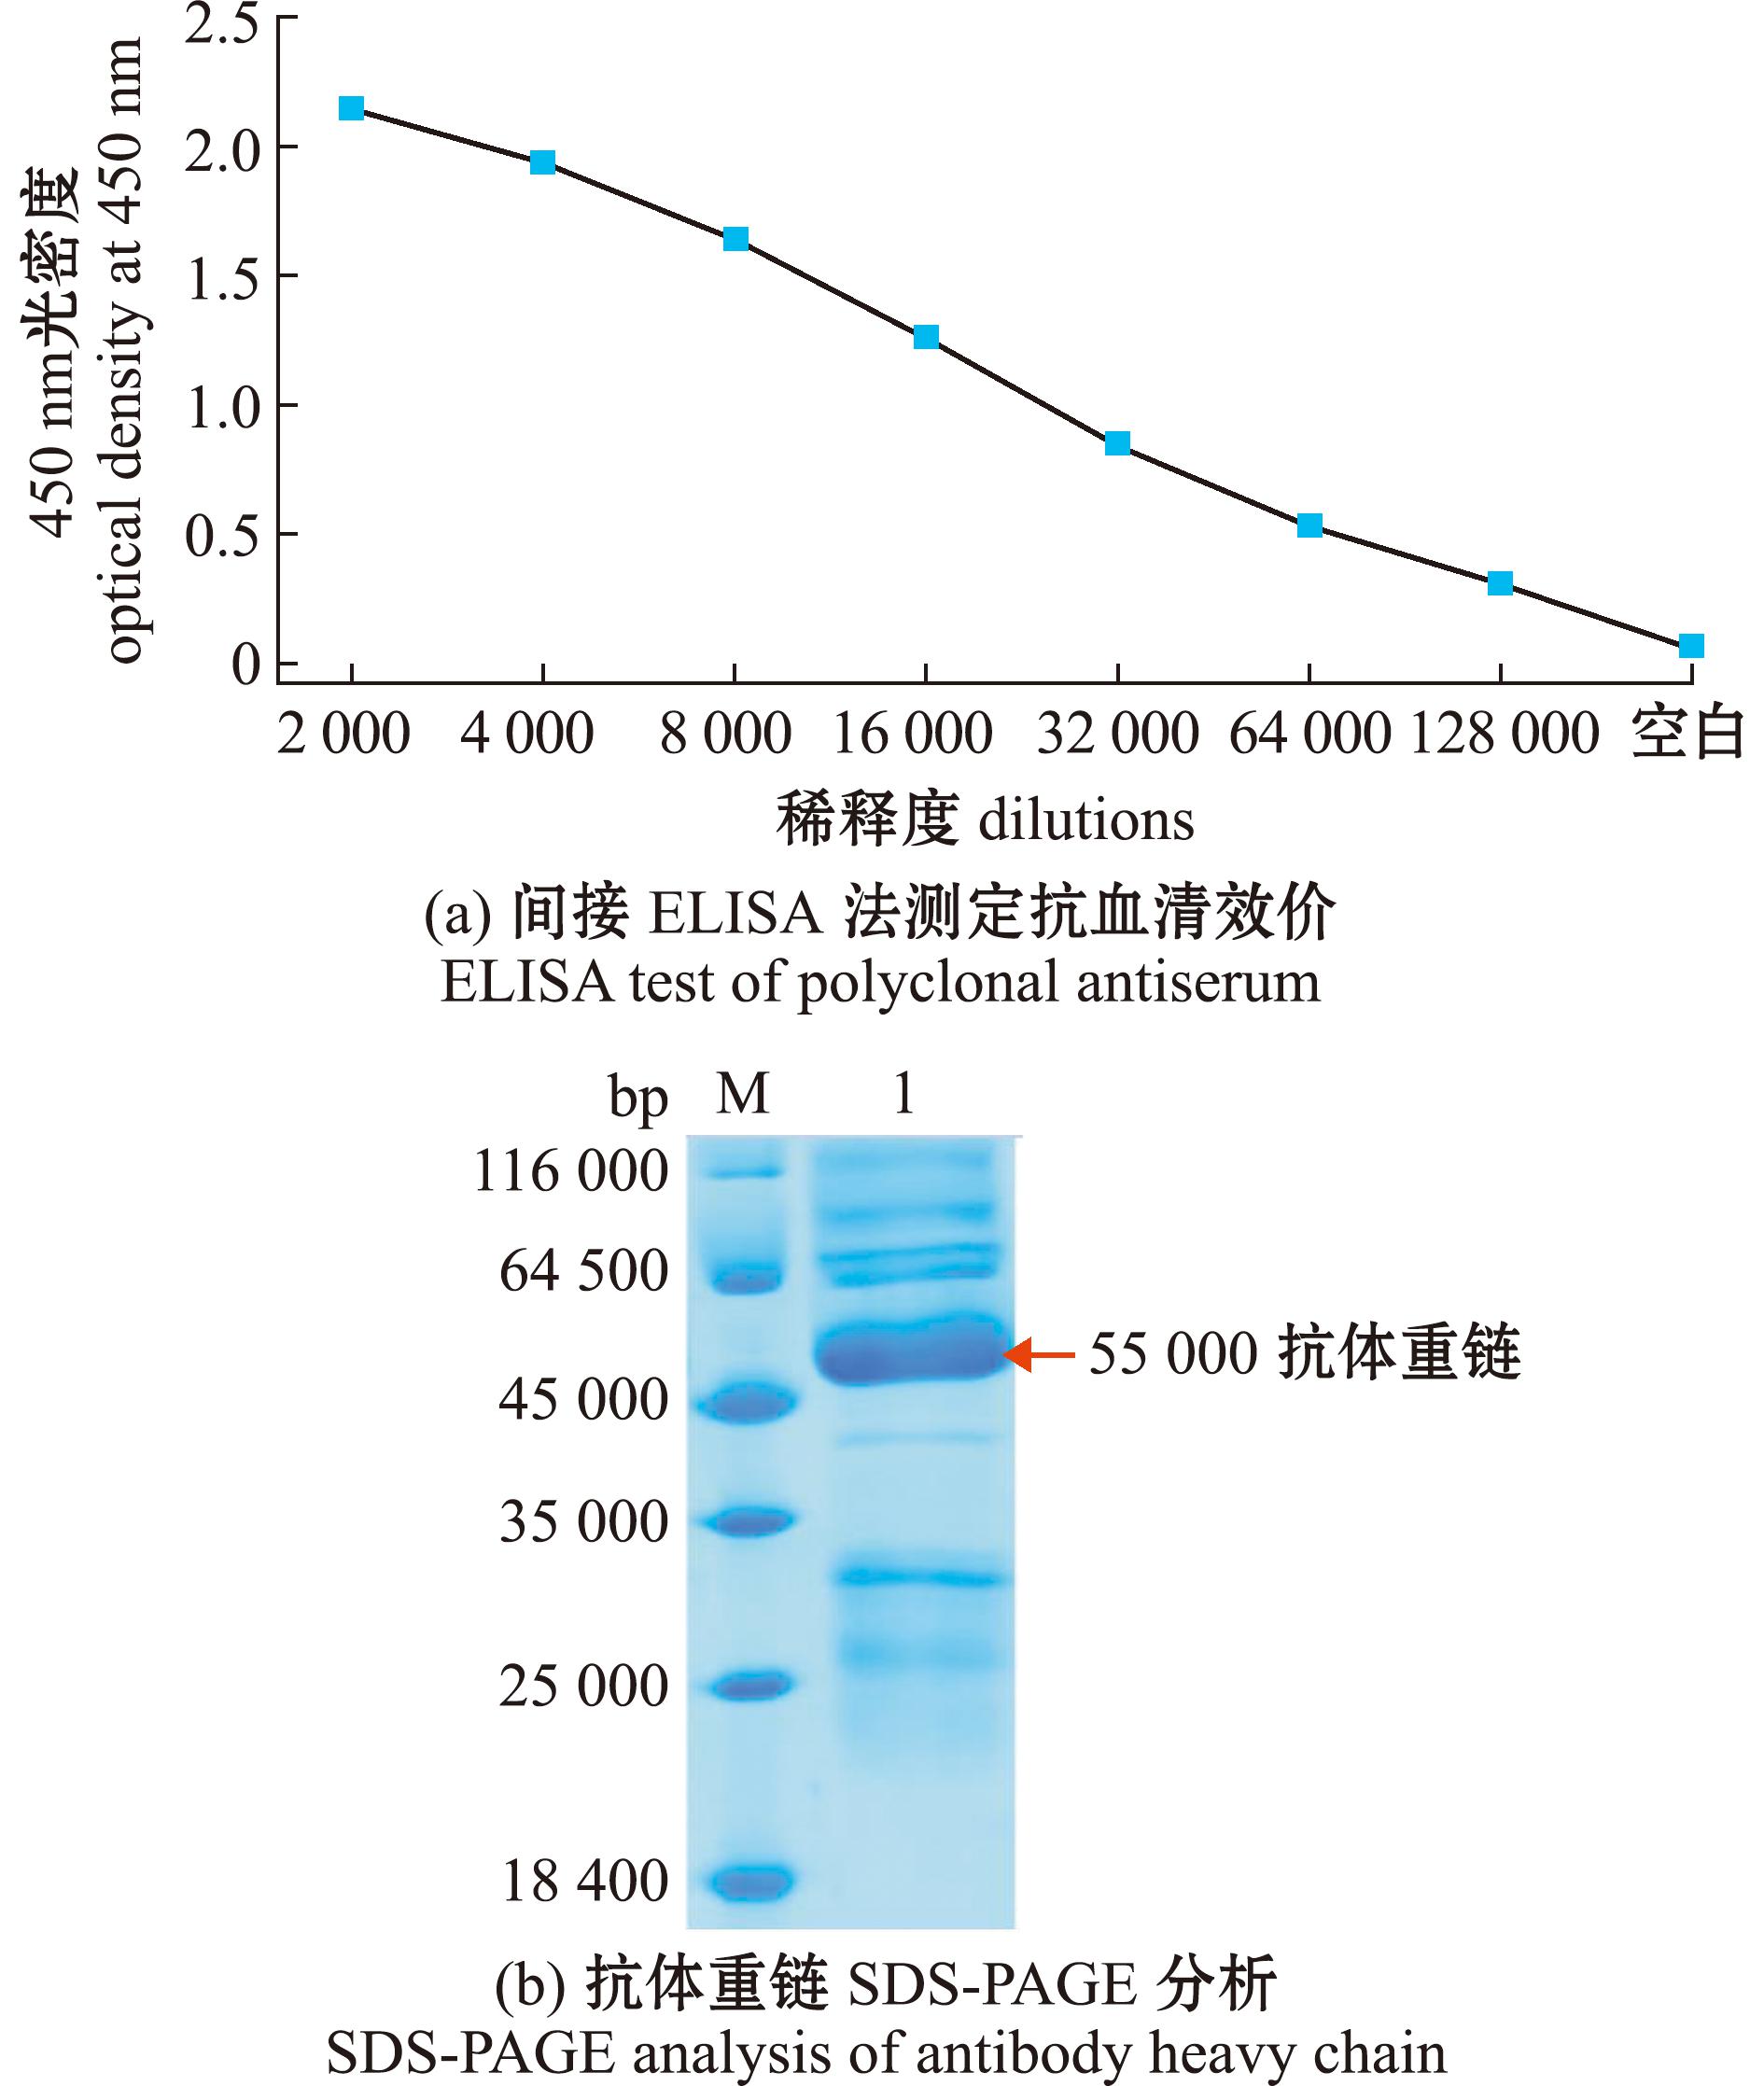
M—标准分子量;1—目的条带,下同。
M—marker;1—target band,et sequentia.
图7 脊尾白虾AMPKα蛋白多克隆抗体鉴定
Fig.7 Identification of polyclonal antibody of recombinant protein in Exopalaemon carinicauda
2.4 AMPKα抗体特异性检测
为了验证AMPKα抗体与脊尾白虾AMPKα蛋白结合的特异性,提取脊尾白虾鳃组织总蛋白进行Western blot分析,结果表明(图8),在60 000分子量大小的位置显示出单一条带,说明本试验所制备的脊尾白虾AMPKα多克隆抗体能够准确识别并结合脊尾白虾体内的AMPKα蛋白,证明特异性良好,抗体制备成功。商业抗体检测脊尾白虾AMPKα结果如图9所示,在目的条带位置未发现相应条带,表明该抗体对脊尾白虾AMPKα无特异性,无法正常检测出目的蛋白。同时与本研究中制备的抗体结果差异性较大,本研究制备的抗体能成功检测出脊尾白虾中的AMPKα蛋白,特异性较好。
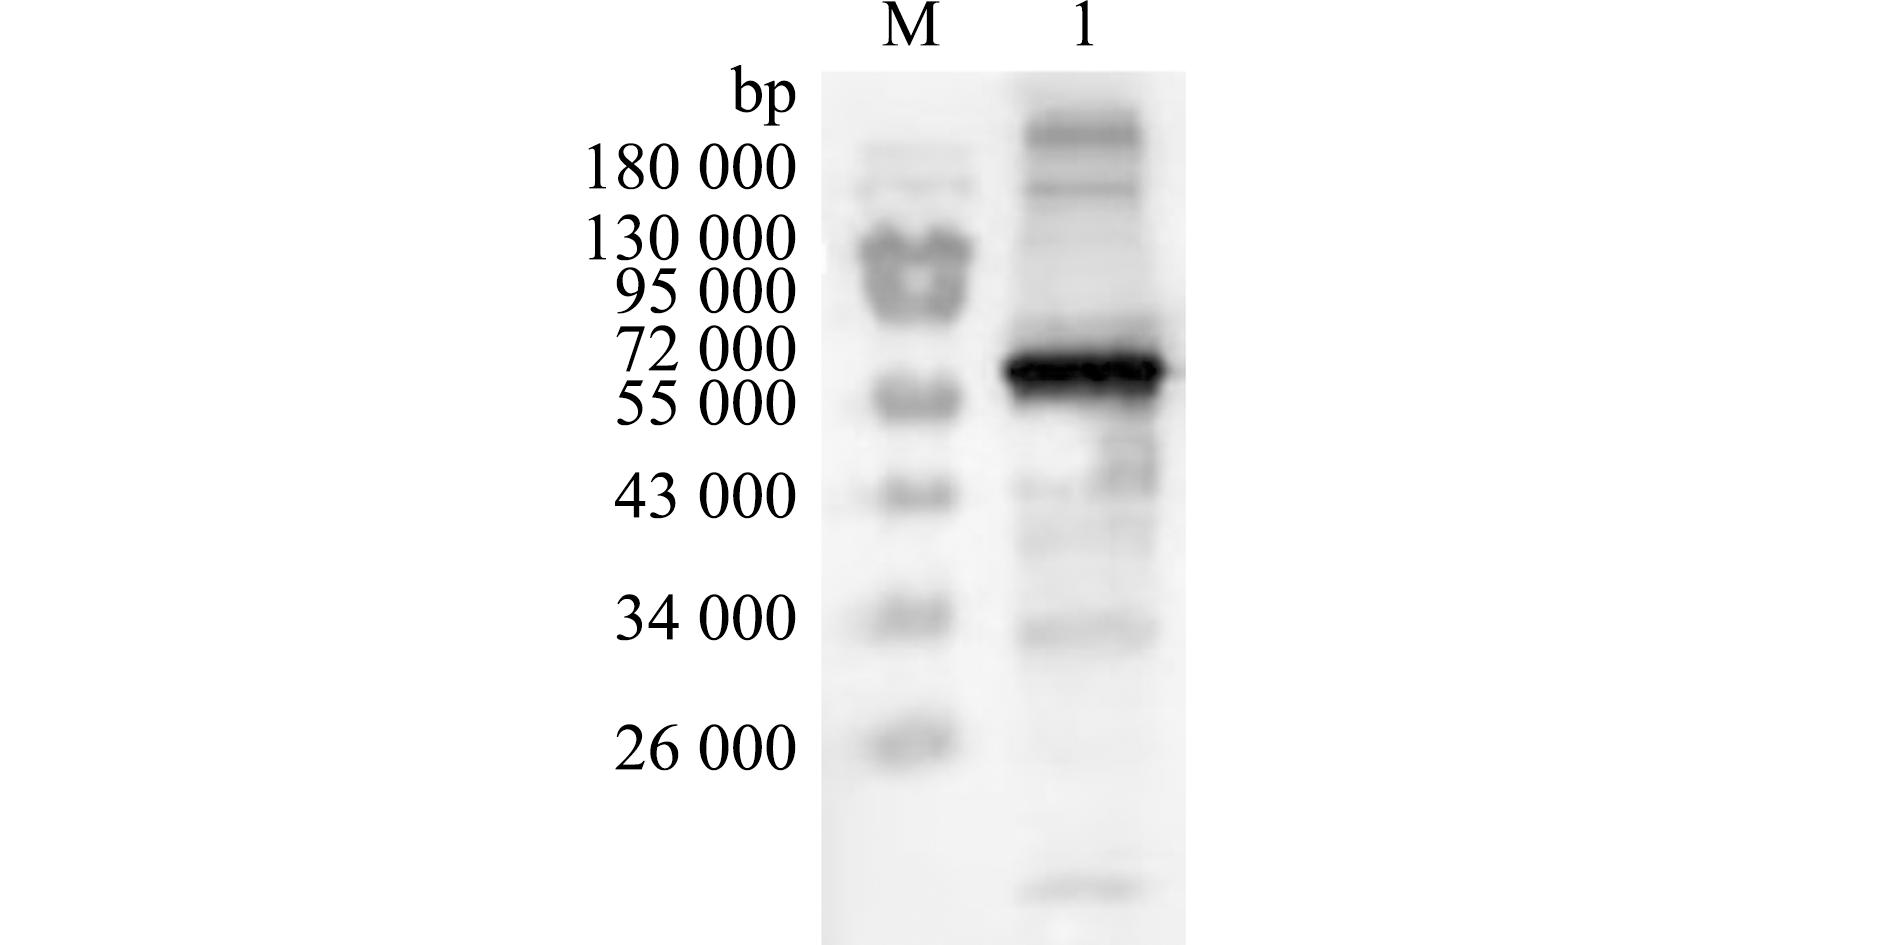
图8 脊尾白虾AMPKα多克隆抗体Western blot检测结果
Fig.8 Western blot results of AMPKα polyclonal antibody in Exopalaemon carinicauda
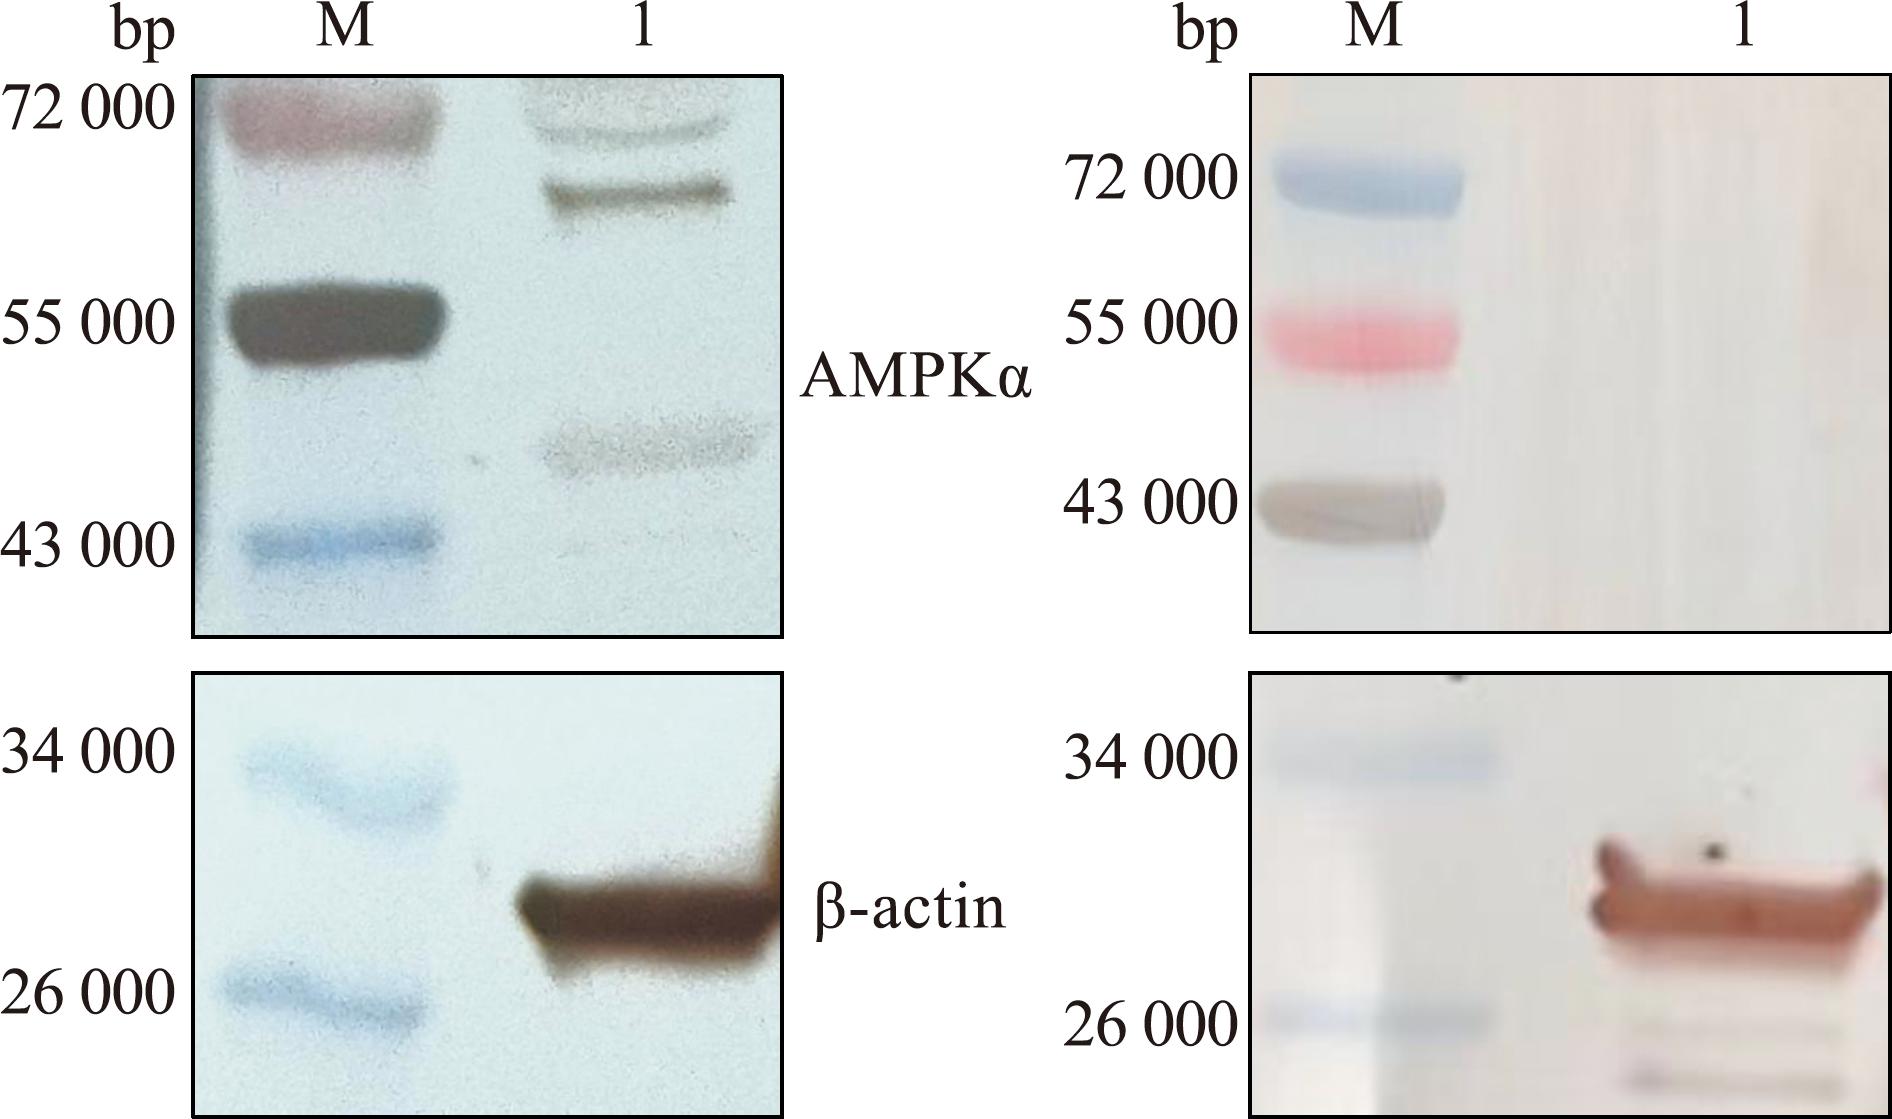
图9 脊尾白虾AMPKα抗体与商业抗体检测结果对比
Fig.9 Comparison of AMPKα antibody and commercial antibody test results of Exopalaemon carinicauda
3 讨论
3.1 脊尾白虾AMPKα基因鉴定与表达特征分析
AMPK作为细胞和机体能量代谢的关键调节器,在维持机体新陈代谢和稳态方面发挥着重要作用[24]。AMPK由一个催化亚基α和两个调节亚基β、γ组成。其中,AMPKα催化亚基是AMPK的核心亚基,其Thr172磷酸化是调控AMPK活性的关键[25],同时β亚基的碳水化合物结合模块能够感应细胞内葡萄糖水平,γ 亚基感知并结合 ADP 来感应细胞能量状态共同协助AMPK活性调节[26]。每个亚基具有多个磷酸化位点,通过直接磷酸化蛋白质、调节脂质合成、氧化和脂肪分解等多种途径中的基因转录[27],在合成代谢或分解代谢的调节中发挥关键作用。AMPK能够在多种条件下被激活[28],如温度、盐度等环境改变及病原入侵造成的能量紊乱状态。AMPKα亚基能够被肝激酶B1(LKB1)、钙调蛋白依赖性激酶β(CaMKKβ)和TGF β激活激酶-1(TAK1)等至少3种上游激酶磷酸化[29]。LKB1能够通过细胞内AMP/ATP、ADP/ATP比例改变引起AMPK的变构效应[30],直接磷酸化AMPKα亚基上暴露的Thr172位点激活AMPK。与LKB1不同的是,CaMKKβ需要依靠细胞内Ca2+浓度升高[31],Ca2+作为细胞中的一种“第二信使”,当Ca2+浓度升高时能够和CaMKKβ的C端CaM结构域结合引发变构效应[32],暴露CaMKKβ激酶的活性中心从而催化AMPK磷酸化。AMPK激活后通过重编程细胞内能量代谢过程,加速能量合成途径,抑制能量消耗途径来使细胞能量恢复平衡,主要集中于糖类、脂类和蛋白质这三大能源物质的合成转化与分解吸收,进而调节细胞能量稳态[33]。在合成代谢方面,通过抑制脂肪酸和糖原物质合成相关的调控因子减少大分子物质合成所消耗的能量[34],在分解代谢方面通过促进脂肪酸β氧化、增强糖酵解限速酶及三羧酸循环相关酶活性,以及启动自噬来清除受损组织和细胞[35],显著提升ATP生成效率,ATP水平是水生生物生理状态的间接衡量标准[36]。
为研究脊尾白虾AMPKα的功能及其抗体制备,本研究中获得了AMPKα基因的完整CDS序列,其序列长度为1 587 bp,共编码528个氨基酸。通过多序列比对结果分析可知,脊尾白虾AMPKα氨基酸序列与日本沼虾具有较高的一致性,AMPKα的S_TKc结构域是高度保守的,这表明S_TKc结构域对于AMPK蛋白发挥生物学功能非常重要。系统进化分析结果显示,脊尾白虾与日本沼虾和夏威夷火山虾聚为一大枝,与日本沼虾聚为一小枝,表明脊尾白虾AMPKα与日本沼虾序列一致性最高,说明AMPKa在不同虾种之间的保守性较高,这为AMPKα在其他虾类或其他物种中的研究提供一定参考,同时,以上结果表明获得的AMPKα序列完整,能够进行后续试验。
组织表达分析结果显示,AMPKα在脊尾白虾肝胰腺、肠道、胃、肌肉和鳃各组织中均有表达,但表达量存在一定差异。在心脏中表达量显著高于其他组织,其次是肌肉、胃、鳃、肠、肝胰腺和血淋巴,并且肝胰腺和血淋巴AMPKα表达量显著低于其他组织。本研究结果与Xu等[37]在南美白对虾中各组织特异性表达的研究结果较为一致。心脏通过持续不断节律性收缩以保持开放式循环系统正常运转,需要更高效的能量调控策略[38],肌肉是脊尾白虾体内占体质量比例最高的组织,鳃为直接与外界环境接触的重要器官,二者均涉及高频能量代谢与物质交换过程,对维持脊尾白虾机体稳态及正常生命活动至关重要[23]。据此推测,脊尾白虾心脏、肌肉和鳃组织中的AMPKα可能在能量调节过程中发挥重要功能。
3.2 脊尾白虾AMPKα多克隆抗体制备与检测分析
原核表达系统能够高效获得大量抗原蛋白,可用于蛋白性质、功能、蛋白间相互作用及多种生化功能的研究[39]。本研究首次在原核表达系统中实现了脊尾白虾AMPKα基因的表达,并通过后续试验成功制备了脊尾白虾AMPKα蛋白的多克隆抗体。本研究中选用pET22b(+)质粒和含有T7启动子的BL21(DE3)宿主菌构成原核表达系统,通过IPTG诱导可高效表达出重组AMPKα蛋白。所获得的重组蛋白以不溶性包涵体形式存在[40],在细胞破碎后的离心沉淀物中含量最高。重组蛋白经过纯化后浓度可到达1 mg/mL,能够为后续抗体制备提供稳定的抗原来源。通过对新西兰兔进行3次基础免疫和1次加强免疫后,采集血清检测效价,结果显示,抗血清效价能够达到128 000,对血清进行亲和纯化和浓缩后获得AMPKα抗体,可特异性识别AMPKα蛋白,说明抗体制备成功。
多克隆抗体是由抗原刺激机体后,B淋巴细胞克隆产生的免疫球蛋白,抗原蛋白可能包含多个不同的抗原决定簇,机体受到多种不同抗原决定簇刺激后可产生多种与不同抗原表位结合的抗体[41],通过分离试验动物血清可获得抗体混合物。多克隆抗体因具有生产费用低、生产效率高、耗时短等特点被广泛应用[42]。本研究中获得的AMPKα基因共编码528个氨基酸,在制备抗体时使用AMPKα完整CDS区重组蛋白作为抗原,蛋白可能存在多个不同的结构域,可能会导致抗体与其他蛋白产生交叉反应,并导致非特异性结合。Western blot结果显示,AMPKα在鳃组织中存在表达,且抗体特异性良好,同时脊尾白虾AMPKα蛋白预测相对分子质量大小约为60 000,与检测结果显示的条带位置吻合,说明抗体制备成功,但是所制备抗体在其他位置也出现微弱条带,这可能是多克隆抗体的非特异性结合。
通过与商用AMPKα抗体在脊尾白虾中进行对比,结果显示,本研究中所制备的抗体效果较好,可以特异性检测出脊尾白虾鳃组织AMPKα蛋白的表达情况。该抗体能够弥补脊尾白虾研究中 AMPKα 抗体的不足,为从蛋白层面深入探究AMPKα的作用机制提供了有效工具。
4 结论
1)本研究中成功获得脊尾白虾AMPKα基因的CDS序列,明确了AMPKα的理化性质和分子特征,证实脊尾白虾AMPKα蛋白在不同物种间具有高度保守性。
2)探究了AMPKα在脊尾白虾不同组织中的特异性表达模式,证实该基因在所检测组织中均有表达,且在心脏和肌肉等高耗能组织中具有较高的表达水平。
3)本研究中完成了脊尾白虾AMPKα的原核表达及多克隆抗体制备,有效解决了AMPKα在脊尾白虾中商业化抗体匮乏的问题,为深入研究AMPKα在虾类中的功能及分子机制提供了有益参考。
[1] 张芝兰,黄晓萌,尚文雅,等.AMPK信号通路在脊髓损伤调控及治疗中的作用研究进展[J].解放军医学杂志,2025,50(4):495-503.ZHANG Z L,HUANG X M,SHANG W Y,et al.Research progress on AMPK signaling pathway in the regulation and treatment of spinal cord injury[J].Medical Journal of Chinese PLA,2025,50(4):495-503. (in Chinese)
[2] 张宁,安月鹏,张琼,等.AMPK主导信号通路在皮肤相关疾病中的作用及中医药干预机理[J/OL].中药药理与临床,2025:1-14.[2025-08-26].https://link.cnki.net/doi/10.13412/j.cnki.zyyl.20250511.002.html.ZHANG N,AN Y P,ZHANG Q,et al.Role of AMPK dominant signaling pathway in skin-related diseases and mechanism of traditional Chinese medicine intervention[J/OL].Pharmacology and Clinics of Chine-se Materia Medica,2025:1-14.[2025-08-26].https://link.cnki.net/doi/10.13412/j.cnki.zyyl.20250511.002.html.(in Chinese)
[3] L PEZ M.Hypothalamic AMPK as a possible target for energy balance-related diseases[J].Trends in Pharmacological Sciences,2022,43(7):546-556.
[4] ZHI S Y,WANG J L,WANG Y R,et al.Molecular characterization of AMP-activated protein kinase (AMPK) α1/α2 from Cyprinus carpio and its roles in glucolipid metabolism and immune response[J].International Journal of Biological Macromolecules,2025,303:140736.
[5] SANZ P,RUBIO T,GARCIA-GIMENO M A.AMPKβ subunits:more than just a scaffold in the formation of AMPK complex[J].The FEBS Journal,2013,280(16):3723-3733.
[6] KATWAN O J,ALGHAMDI F,ALMABROUK T A,et al.AMP-activated protein kinase complexes containing the β2 regulatory subunit are up-regulated during and contribute to adipogenesis[J].The Biochemical Journal,2019,476(12):1725-1740.
[7] VARA-CIRUELOS D,RUSSELL F M,HARDIE D G.The strange case of AMPK and cancer:Dr Jekyll or Mr Hyde?[J].Open Biology,2019,9(7):190099.
[8] CHEN L,WANG J,ZHANG Y Y,et al.AMP-activated protein kinase undergoes nucleotide-dependent conformational changes[J].Nature Structural &Molecular Biology,2012,19(7):716-718.
[9] GU X,YAN Y,NOVICK S J,et al.Deconvoluting AMP-activated protein kinase (AMPK) adenine nucleotide binding and sensing[J].Journal of Biological Chemistry,2017,292(30):12653-12666.
[10] BHUTTA M S,GALLO E S,BORENSTEIN R.Multifaceted role of AMPK in viral infections[J].Cells,2021,10(5):1118.
[11] SILWAL P,KIM J K,YUK J M,et al.AMP-activated protein kinase and host defense against infection[J].International Journal of Molecular Sciences,2018,19(11):3495.
[12] HARDIE D G,SCHAFFER B E,BRUNET A.AMPK:an energy-sensing pathway with multiple inputs and outputs[J].Trends in Cell Biology,2016,26(3):190-201.
[13] KIM S J,TANG T Y,ABBOTT M,et al.AMPK phosphorylates desnutrin/ATGL and hormone-sensitive lipase to regulate lipolysis and fatty acid oxidation within adipose tissue[J].Molecular and Cellular Biology,2016,36(14):1961-1976.
[14] LIN S C,HARDIE D G.AMPK:sensing glucose as well as cellular energy status[J].Cell Metabolism,2018,27(2):299-313.
[15] 吕珍立,黄晓文,孙凤芝,等.虾夷扇贝AMPK基因家族的鉴定及表达[J].水产学报,2024,48(10):28-39.LÜ Z L,HUANG X W,SUN F Z,et al.Genome-wide identification and expression profiling of the AMPK gene family in Patinopecten yessoensis[J].Journal of Fisheries of China,2024,48(10):28-39. (in Chinese)
[16] KE R,XU Q C,LI C,et al.Mechanisms of AMPK in the maintenance of ATP balance during energy metabolism[J].Cell Biology International,2018,42(4):384-392.
[17] 李浩田,李梦丽,张臣,等.基于AMPK/mTOR信号通路介导的自噬途径研究黄芪多糖对急性放射性肠炎大鼠肠黏膜的保护作用[J].中国病理生理杂志,2022,38(2):311-317.LI H T,LI M L,ZHANG C,et al.Astragalus polysaccharide protects against intestinal mucosal injury in rats with acute radiation enteritis through AMPK/mTOR-mediated autophagy pathway[J].Chinese Journal of Pathophysiology,2022,38(2):311-317. (in Chinese)
[18] CHENG A C,LIN C J,WANG S T,et al.Salinity stress impairs disease resistance in white shrimp,Penaeus vannamei through AMPK pathway,ameliorated by dietary glucose-mediated energy homeostasis[J].Comparative Biochemistry and Physiology Part A,Molecular &Integrative Physiology,2025,302:111799.
[19] JIN M,LUO J X,ZHU T T,et al.Examination of role of the AMP-activated protein kinase (Ampk) signaling pathway during low salinity adaptation in the mud crab,Scylla paramamosain,with reference to glucolipid metabolism[J].Aquaculture,2024,593:741329.
[20] YANG S,WU H,HE K,et al.Response of AMP-activated protein kinase and lactate metabolism of largemouth bass (Micropterus salmoides) under acute hypoxic stress[J].Science of the Total Environment,2019,666:1071-1079.
[21] 刘德雪,范梦昊,程伟涛,等.脊尾白虾Duox基因鉴定及其免疫功能研究[J].大连海洋大学学报,2025,40(1):34-43.LIU D X,FAN M H,CHENG W T,et al.Identification of the Duox gene in Exopalaemon carinicauda and preliminary study on its immune function[J].Journal of Dalian Ocean University,2025,40(1):34-43. (in Chinese)
[22] MO N,SHAO S C,YANG Y N,et al.Identifying low salinity adaptation gene expression in the anterior and posterior gills of the mud crab (Scylla paramamosain) by transcriptomic analysis[J].Comparative Biochemistry and Physiology Part D:Genomics and Proteomics,2024,49:101166.
[23] 苏日娜.文蛤能量代谢调控对弧菌感染的响应特征及其与死亡的关系[D].青岛:中国科学院大学(中国科学院海洋研究所),2021.SU R N.Characterization of energy metabolism regulation in clam Meretrix petechialis in response to Vibrio infection and and its relationship with death[D].Qingdao:University of Chinese Academy of Sciences,2021.(in Chinese)
[24] TREFTS E,SHAW R J.AMPK:restoring metabolic homeostasis over space and time[J].Molecular Cell,2021,81(18):3677-3690.
[25] HARDIE D G,ROSS F A,HAWLEY S A.AMPK:a nutrient and energy sensor that maintains energy homeostasis[J].Nature Reviews Molecular Cell Biology,2012,13(4):251-262.
[26] 蒋东利.高温胁迫下虾夷扇贝PyLKB1-PyAMPKα信号通路的激活及其调节糖原代谢的研究[D].大连:大连海洋大学,2023.JIANG D L.Activation of PyLKB1-PyAMPKα signal pathway and its regulation of glycogen metabolism in Patinopecten yessoensis under high temperature stress[D].Dalian:Dalian Ocean University,2023.(in Chinese)
[27] WANG Q,LIU S D,ZHAI A H,et al.AMPK-mediated regulation of lipid metabolism by phosphorylation[J].Biological &Pharmaceutical Bulletin,2018,41(7):985-993.
[28] GOWANS G J,HAWLEY S A,ROSS F A,et al.AMP is a true physiological regulator of AMP-activated protein kinase by both allosteric activation and enhancing net phosphorylation[J].Cell Metabolism,2013,18(4):556-566.
[29] TOWNSEND L K,STEINBERG G R.AMPK and the endocrine control of metabolism[J].Endocrine Reviews,2023,44(5):910-933.
[30] JIANG D L,YANG C Y,WANG X B,et al.The involvement of AMP-activated protein kinase α in regulating glycolysis in Yesso scallop Patinopecten yessoensis under high temperature stress[J].Fish &Shellfish Immunology,2023,140:108998.
[31] WOODS A,JOHNSTONE S R,DICKERSON K,et al.LKB1 is the upstream kinase in the AMP-activated protein kinase cascade[J].Current Biology,2003,13(22):2004-2008.
[32] WOODS A,DICKERSON K,HEATH R,et al.Ca2+/calmodulin-dependent protein kinase kinase-β acts upstream of AMP-activated protein kinase in mammalian cells[J].Cell Metabolism,2005,2(1):21-33.
[33] XIAO B,HEATH R,SAIU P,et al.Structural basis for AMP binding to mammalian AMP-activated protein kinase[J].Nature,2007,449(7161):496-500.
[34] KHAN I,LU Y N,LI N,et al.Effect of ammonia stress on AMPK regulating-carbohydrate and lipid metabolism in Chinese striped-neck turtle (Mauremys sinensis)[J].Comparative Biochemistry and Physiology Part C:Toxicology &Pharmacology,2023,263:109491.
[35] GONZ LEZ A,HALL M N,LIN S C,et al.AMPK and TOR:the Yin and Yang of cellular nutrient sensing and growth control[J].Cell Metabolism,2020,31(3):472-492.
[36] HARDIE D G.Keeping the home fires burning:AMP-activated protein kinase[J].Journal of the Royal Society,Interface,2018,15(138):20170774.
[37] XU C,LI E C,XU Z X,et al.Molecular characterization and expression of AMP-activated protein kinase in response to low-salinity stress in the Pacific white shrimp Litopenaeus vannamei[J].Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology,2016,198:79-90.
[38] BARCENA M L,ASLAM M,NORMAN K,et al.Role of AMPK and sirtuins in aging heart:basic and translational aspects[J].Aging and Disease,2024,16(6):3335-3360.
[39] 吴鹰,刘治滩,赵浩东,等.西方蜜蜂m6A甲基转移酶的基因克隆、多克隆抗体制备及表达模式[J].昆虫学报,2023,66(7):885-895.WU Y,LIU Z T,ZHAO H D,et al.Gene cloning,polyclonal antibody preparation,and expression pattern of m6A methyltransferase in Apis mellifera(Hymenoptera:Apidae)[J].Acta Entomologica Sinica,2023,66(7):885-895. (in Chinese)
[40] 赵小然,郭羿,党慧凤,等.哈维氏弧菌溶血素的包涵体纯化、多抗制备及活性验证[J].大连海洋大学学报,2020,35(4):496-501.ZHAO X R,GUO Y,DANG H F,et al.Inclusion body purification,polyclonal antibody preparation and activity verification of Vibrio harveyi hemolysin[J].Journal of Dalian Ocean University,2020,35(4):496-501. (in Chinese)
[41] 刘筱筱,余秋蓉,李霞,等.牛冠状病毒家兔源多克隆抗体的制备与应用[J].中国兽医科学,2025,55(10):1334-1340.LIU X X,YU Q R,LI X,et al.Preparation and application of rabbit polyclonal antibodies against bovine coronavirus[J].Chinese Veterinary Science,2025,55(10):1334-1340. (in Chinese)
[42] 王金辉.动物源性多克隆抗体制备方法及其应用[J].现代畜牧兽医,2023(3):85-88.WANG J H.Preparation and application of animal derived polyclonal antibodies[J].Modern Journal of Animal Husbandry and Veterinary Medicine,2023(3):85-88. (in Chinese)