赤潮作为一种海洋生态现象,是指某些浮游生物在短时间内发生爆发性增殖或聚集,进而导致水体出现肉眼可见的颜色变化[1],该现象本质上是源于浮游生物生物量的异常升高,但并非所有赤潮均具毒性,因此为了更科学地描述这一生态异常现象,目前国际上更多称其为有害藻华(Harmful Algal Blooms,HABs)[2]。
夜光藻(Noctiluca scintillans)作为有害藻华的代表性物种,在全球海洋生态系统中呈现广布性[3],根据颜色和营养模式的不同可将其分为红色异养型和绿色混合营养型两类,夜光藻作为世界上最常见的赤潮物种之一[4],因红色型夜光藻在受到潮汐或海浪的扰动时,可使水体在夜间发出蓝色的荧光,形成“蓝眼泪”现象而广为人知。
1 国内外夜光藻赤潮研究历史
1.1 早期探索阶段(1810—1970年)
夜光藻赤潮早期研究主要集中在夜光藻的形态学描述、分类鉴定的初步观察。这一时期的研究相对简单,缺乏现代科学的试验方法和技术,研究成果主要停留在描述性阶段。
夜光藻的科学认知始于19世纪。1810年,Macartney[5]首次对其形态特征及其显著的生物发光现象进行了科学描述。他观察到机械刺激(如搅动海水)能够触发其发光,并基于其形态将其错误地归入水母属,命名为Medusa scintillans。随后,Ehrenberg[6]借助更为先进的显微技术,精细绘制并记录了夜光藻的细胞结构,包括其标志性的触手与细胞质网络,为后续的细胞学研究奠定了基础。Ehrenberg将其归入甲藻门(Dinophyceae),并定名为Noctiluca miliaris。其分类地位的最终确立经历了漫长的修正过程,直到1920年,Kofoid等[7]基于夜光藻独特的形态特征(如缺乏甲板、鞭毛退化及异养摄食方式),将其从传统甲藻目中分离出来,创立了独立的夜光藻目(Noctilucales)。最终,在1921年,其学名被正式确定为Noctiluca scintillans (Macartney) Kofoid &Swezy,这一分类框架至今仍被学界广泛接受。
1.2 机制探索与研究阶段(1970—2000年)
20世纪70年代后,随着全球近海富营养化问题日益突出,夜光藻赤潮在许多海域(如欧洲北海、印度洋阿拉伯海、中国东海与南海等)的发生频率和规模显著增加(图1),从而获得了学界的高度关注。如北欧作为夜光藻研究开展最早、体系最为完善的典型区域,研究发现该地区夜光藻赤潮通常以3~4年为周期暴发,且主要受风、潮汐及锋面过程等关键环境因子驱动;在阿拉伯海-阿曼湾-红海一带,则同时存在红色与绿色两种类型的夜光藻,并呈现显著的季节性交替现象,是目前全球唯一表现出红绿型夜光藻明显季节更替的区域;在中国内地及其香港地区更多受到降雨径流、近岸环流与人类活动(富营养化)影响[8],相应地,研究重点也从现象描述转向探究赤潮暴发的驱动机制和生态影响,如温度、盐度、营养盐和水动力条件(如水体稳定和聚集效应)等。
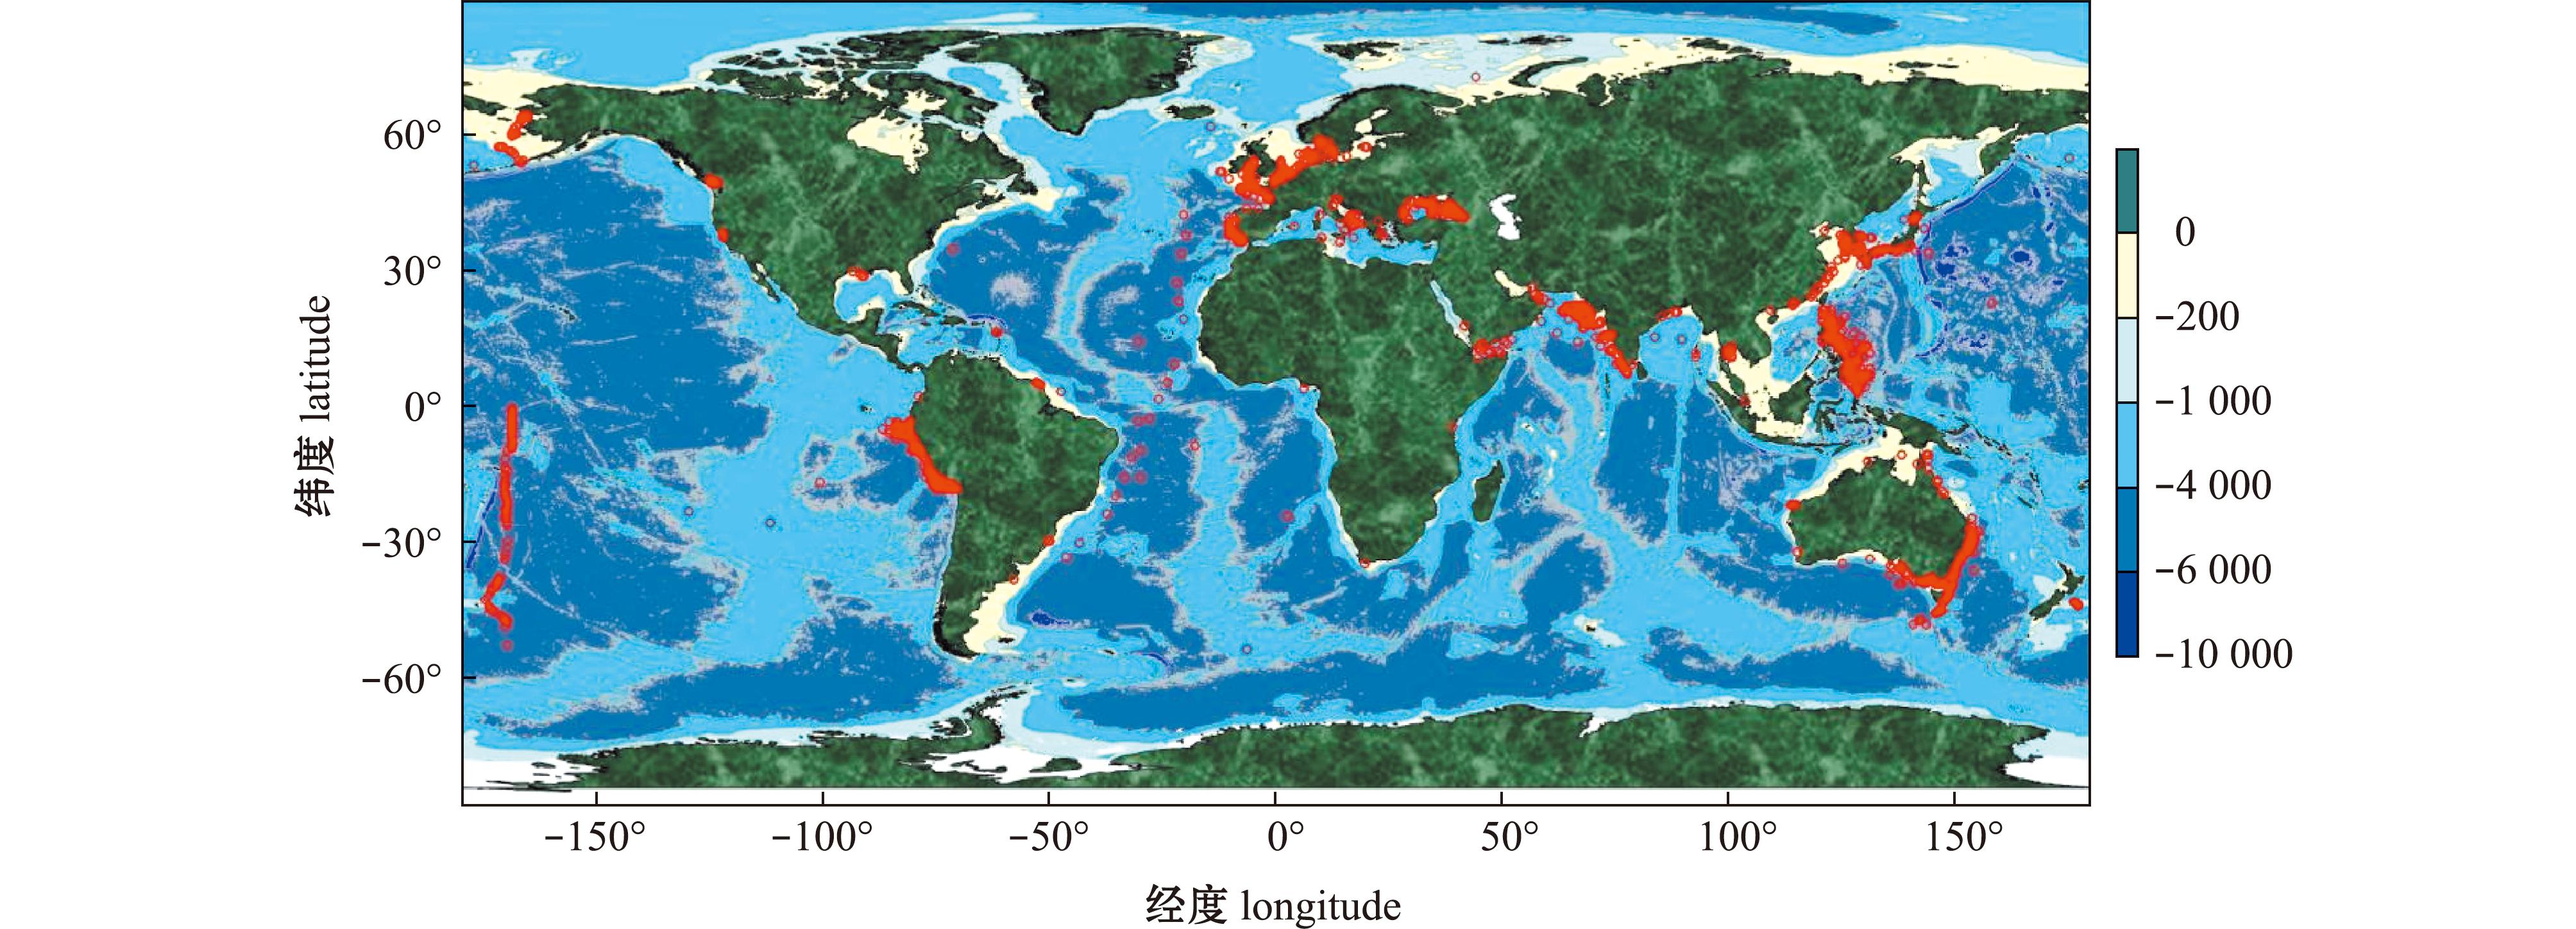
图1 夜光藻赤潮在全球的暴发分布[4]
Fig.1 Global distribution map of Noctiluca scintillans red tide outbreaks[4]
1.2.1 形成机制的系统研究 富营养化主导理论、大量现场调查和实验室研究证实,陆源输入的氮、磷等营养盐是驱动近海夜光藻赤潮频发和规模扩大的核心因素,该观点在此阶段成为学界的主流共识[9-10];水文动力学作用开始被重视,在明确了水温、盐度是控制夜光藻生长和分布的决定性环境因子的同时,水体稳定层化、锋面和上升流等物理过程被证实对夜光藻的聚集、维持和消散至关重要。
1.2.2 夜光藻生物学特性研究 通过显微镜观察和培养试验,研究者明确了夜光藻的异养性质(吞噬其他浮游生物),详细研究了其摄食机制(利用触手进行吞噬)和食物谱,证实其主要捕食硅藻、其他甲藻、原生动物、鱼卵和有机碎屑,从而确立了其在海洋食物网中作为“捕食者”的关键生态位。在实验室受控条件下,温度、盐度及食物浓度等环境因子对夜光藻生长速率、繁殖效率和世代时间的影响得到了定量评估,这些研究为后续构建赤潮预测的数值模型提供了关键的生物学参数[11-13]。中国近海、欧洲北海、印度近海等区域性研究大量涌现,积累了特定海域的暴发规律和环境背景数据[13]。在此期间学界普遍认识到,富营养化是夜光藻赤潮频发的重要背景条件[10,14],Kirchner等[15]通过对德国湾的长期观察,发现夜光藻的丰度峰值通常出现在春季硅藻水华之后,并讨论了夜光藻作为硅藻捕食者的潜在影响,这一发现进一步表明,夜光藻作为异养生物,其种群的暴发常与前序的初级生产力高峰(尤其是硅藻水华)存在紧密的耦合关系。
1.2.3 监测技术发展 已有研究发现,一方面,规范化的现场调查方法得以建立[16],涵盖了细胞计数与环境因子的同步测量。另一方面,学界开始尝试利用卫星遥感与高光谱数据来间接监测赤潮的宏观分布与动态[17]。然而,由于红色夜光藻不含叶绿素,该方法的准确性受到限制,主要用于指示适合水华发生的富营养化背景环境。
1.3 多学科综合与深化研究阶段 (2000—今)
进入21世纪,夜光藻研究进入由技术创新驱动的多学科交叉与深化阶段。通过与卫星遥感、人工智能与机器学习、分子生态学与基因组学结合,此阶段的研究范式由探究单一影响机制,转向评估多重环境压力下生态系统的综合响应,并将全球气候变化视为一个关键的宏观背景因素。
1.3.1 全球变化背景下的响应与扩张 2014年Do ros rio gomes等[18]研究证实,全球气温升高及沿岸海域缺氧区的扩张,为夜光藻(尤其是对低氧环境耐受性更强的绿色夜光藻)创造了显著的竞争优势。如在阿拉伯海等海域,绿色夜光藻已取代传统的硅藻,演替为冬季季风期水华的优势种群,深刻改变了当地区域生态系统和渔业。Gomes等[19]通过对绿型夜光藻(阿拉伯海株系)的光强-食物耦合试验发现:不同光强与猎物组合共同决定其生长与光合-摄食权衡,即便猎物充足,低光仍显著抑制增长;最佳光强+偏好猎物组合可达更高增长率,证明了光能与摄食的双重限制。而在韩国Jangmok湾长达20年的实地监测中,夜光藻暴发同样受多重环境压力的协同驱动,通过季节性交互放大赤潮风险:PCA分析揭示,春夏季SST与风速的正协同(r>0.6)促进上层水体混合,加速营养盐上涌并抑制竞争硅藻;冬季则为盐度降低与DO耗竭的负交互(r<-0.5)诱导低氧耐受策略,导致夜光藻种群从夏季峰值(8月)向春季(5月)迁移[20]。
1.3.2 高分辨率遥感与专属算法 传统方法多依赖叶绿素浓度来评估赤潮强度,但鉴于夜光藻本身不含叶绿素,此类算法往往陷入困境,而现在高分辨率遥感技术的进步催生了针对夜光藻赤潮的专属探测算法。王义衎等[21]开发的此类算法利用了红夜光藻(red noctiluca)在红光与近红外波段的高反射率特征,并结合高浓度藻华水体在绿光波段的光学特性。通过应用MODIS及HY-1C/D等卫星数据,研究人员能够更精确地识别并追踪夜光藻赤潮的分布范围、动态强度及其移动路径,有效弥补了传统上基于叶绿素浓度遥感算法的局限性。
1.3.3 预测模型 数值模拟与预测模型的开发也取得了显著进展,早期对夜光藻赤潮的预测是基于历年的统计结果,建立预测的经验或半经验公式,预测能力较弱;而现在基于大数据与机器学习技术,并结合动力学模型,支持向量机(SVM)、决策树及深度学习等算法被广泛应用于构建预测模型[4]。这些模型能够整合影响赤潮发生的关键环境因子,对赤潮的未来发展趋势进行模拟与预警,其预测精度随着算法的持续优化而不断提升。
1.3.4 基因组学研究 20世纪的夜光藻研究鲜见组学层面的剖析,而目前转录组学作为一种高效的分子生物学工具,已成为解析赤潮机制的有效手段。林湘园[22]通过对近海509份单分子进行实时测序(SMRT)的野外样本研究,发现中国近海水域中红色夜光藻种群在全年均有分布,且作为潜在的种子库,在环境条件适宜时能够迅速暴发成潮,为夜光藻赤潮形成的种源追溯提供了有力支持。2024年,于国欣[23]在实验室条件下模拟了未来海洋酸化的情景,以探究其对夜光藻生理过程的潜在影响。通过转录组分析对比酸化和盐度胁迫下分子响应机制的研究,结果表明,对细胞生长而言pH降低(即酸化)虽然对夜光藻的生长具有促进作用,但也会导致其细胞直径缩小。与此同时,盐度作为另一关键限制因子,过低或过高的盐度均会抑制其生长,其最适生长盐度约为26,盐度的变化亦有显著影响,主要为低盐度条件下细胞直径增大,高盐度条件下则细胞直径减小。
2 夜光藻赤潮形成理论与机制
2.1 富营养化驱动假说
该学派认为,水体富营养化[8]是夜光藻赤潮暴发的根本原因和必要条件。尽管红色夜光藻自身是异养生物,不能直接利用无机营养盐,但富营养化通过促进其饵料生物的增殖,可能改变浮游植物群落结构,从而间接驱动夜光藻的大规模暴发。长期监测数据显示[24],夜光藻赤潮高发区往往与人类活动强度高、营养盐(尤其是N、P)输入量大的区域吻合(如大型河口、近海养殖区),如湛江硇洲海域发生的夜光藻赤潮,其暴发时间与当地对虾养殖池的清塘周期高度吻合,大量未经处理的养殖废水在此期间被直接排放至该海域,被认为是促成此次夜光藻赤潮形成的关键诱因[25]。许多研究发现,在夜光藻暴发前或暴发期间,均能检测到高浓度的无机营养盐和高生物量的浮游植物。
但是,在传统认知看来,一般认为夜光藻赤潮多发生在富营养化海域,而实际上在多个地区的贫营养海域或者富营养海域的贫营养年也出现了大规模夜光藻赤潮[9,26-27],如牟平的近海水域是寡营养区域,叶绿素a(Chl-a)浓度低于3.00 μg/L。营养物质和浮游植物生物量(Chl-a)难以支持大量异养的夜光藻增殖[28]。此结果与传统认知相违背,说明富营养化可能是形成夜光藻赤潮的一个重要原因,但不是决定性因素,未来研究需进一步探讨夜光藻赤潮的多重驱动机制,不应仅局限于营养水平的变化,还应综合考虑气候变异、海洋水动力过程及其他环境因子的作用,通过融合遥感监测、气象资料和海洋物理参数,提升夜光藻赤潮的发生预测与预警精度。
2.2 物理聚集与输运机制
本学派强调水动力条件(水体层化、环流与水团输运、风场与风生流等)在夜光藻赤潮形成、维持和消散中的关键作用。其认为即使在有充足营养和饵料的条件下,如果没有适宜的水文物理过程,夜光藻也难以形成大规模的赤潮。
稳定的水体层化(如温跃层、盐跃层)可以形成一个相对稳定的环境,使夜光藻细胞在适宜的深度聚集形成高密度斑块,避免被稀释和扩散。Tada等[29]发现,春末夏初水层的稳定性促进了夜光藻丰度的增加,最高可达4 000 cells/L;特定的海洋环流、潮流、上升流或下降流过程,可将夜光藻细胞或其饵料生物汇集并输运到特定区域,形成高密度聚集区。特别是在河口锋面、湾内滞留区、上升流边缘等物理汇聚区常观察到夜光藻赤潮的暴发。Qi等[30]综合长期观测和模型模拟方法,利用卫星遥感和数值模拟展示了水团的输运路径与赤潮分布的一致性,通过深入分析东海夜光藻赤潮的形成机制,证实了大尺度环流和水团输运在赤潮发生和演变中的作用。徐兆礼[31]发现,在长江口海域,夜光藻赤潮主要分布在长江口的河口锋水域。Dai等[32]研究发现,海洋温度和环流的变化会改变海洋分层状态与营养物质的运输,进而影响浮游植物的生长和赤潮的形成。适宜的风向和风速可以推动表层水体,在海岸带形成辐聚区,将夜光藻细胞“吹”向岸边或某个特定区域,导致其高度聚集。许多近岸夜光藻赤潮的暴发与特定风向和风速条件下形成的表层辐聚带有关,陈晓[33]通过研究证明了风向和风速是大亚湾海域赤潮暴发的关键影响因素,并且明确了单一风生流对大亚湾海域赤潮藻分布的影响,从水流涡量捕获角度解释了大亚湾不同区域赤潮暴发的现象。
综上所述,水动力条件对于夜光藻赤潮的暴发具有重要影响,未来可以利用各种动力模型如FVCOM、ROMS等模型,对夜光藻赤潮的形成环境进行模拟,分析赤潮暴发期间海域内部的水体物理环境变化,揭示海水流速减缓和水体稳定性增强对夜光藻赤潮形成起到的作用。
2.3 种群动态与生态交互机制
该学派从夜光藻自身的生物学特性出发,认为其特殊的生理生态学特征(如摄食策略、繁殖方式、对环境变化的响应能力等)是其形成赤潮的内在决定因素。
夜光藻具有独特的摄食策略与高摄食率。夜光藻是一种大型异养鞭毛虫,作为纯异养型藻类,其摄食范围广泛,通过胞吞作用能够摄食多种的浮游植物、小型浮游动物、浮游动物和鱼类的卵、浮游细菌和有机碎屑[34],这种广泛的摄食范围使得夜光藻能够在不同的环境条件下找到适合的食物,从而为其生长和繁殖提供充足的营养来源;其次,夜光藻摄食效率高,夜光藻作为一种高效的“拦截型摄食者”,在水体上浮过程中,利用其覆盖有黏液的触手来收集和捕获食物颗粒,而其摄食率随着被胞吞生物大小的增加而增加:摄食5 μm 颗粒的清除率为0.25 μL/h,而摄食83 μm颗粒的清除率为17.2 μL/h[35]。其中,夜光藻对硅藻具有特别的偏食性,与其他饵料藻相比,夜光藻对其的摄食速度要快10~25倍。夜光藻的广泛摄食范围和高摄食率为其赤潮暴发提供了充足的营养基础。
夜光藻具有快速的繁殖率与生长率。夜光藻繁殖方式分无性和有性繁殖两种,其中以细胞进行二分裂的无性繁殖为主要繁殖方式[36],在实验室理想条件下,其比生长率 (μ)为0.5~0.7 d-1,种群倍增时间为1.0~1.4 d;经过11次核分裂,一个配子母细胞在不到24 h内形成多达2 000个游动子细胞[37]。在适宜条件下可实现指数级增长,其世代时间相对较短,能够迅速积累生物量形成赤潮。
夜光藻对环境的适应能力较强,作为广温广盐性生物,夜光藻对环境变化具有较强的耐受性,使其能够在全球不同纬度、不同盐度区域广泛分布。目前在自然界中发现,夜光藻能在0 ℃~30 ℃的温度下生长,在锡尔特岛附近的北海,即使温度在0 ℃或以下,整个冬天也能发现夜光藻的存在[38],在8—9月的长江入海口近岸地区,水温为28 ℃~30 ℃ 时也出现了夜光藻赤潮[39]。夜光藻对盐度有很强的适应性,盐度在5.6~42 范围内夜光藻均可存活繁殖。2016年珠江口广海湾和镇海湾暴发夜光藻赤潮时的盐度为5.6~16.9,明显低于大部分海区;曹新宇等[40]通过在实验室培养研究发现,大连黑石礁海域的夜光藻在盐度18~42范围内均能存活和繁殖。
综上,夜光藻的广泛摄食范围和高摄食率为其赤潮暴发提供了充足的营养基础,通过高效获取多种食物来源,可支撑其快速生长和种群扩张;夜光藻的快速繁殖和生长能力使其在适宜条件下能迅速积累生物量,直接驱动赤潮的形成和暴发;夜光藻对温度和盐度的强适应能力使其能在全球多种环境条件下存活和繁殖,扩大了赤潮暴发的潜在范围和频率。这些生物学特性相互强化,摄食效率支撑快速生长,生长速率结合环境适应性则使夜光藻在富营养化或气候变化等条件下更易暴发赤潮,形成一种正反馈循环。
2.4 多因素耦合驱动机制
夜光藻赤潮的形成与暴发是多因素耦合的结果,在结合王寿松等[41]、胡翠林等[36]研究的基础上,将其归纳为“生物增殖”与“物理聚集”两大核心机制的协同作用。在物理聚集方面,封闭地形与较弱潮流有利于藻体在水体中滞留与积累;垂直混合流和上升流将底层营养盐与微量元素携带至真光层,为藻类生长提供物质基础;风速与风向则进一步调节水体混合与水平输运,促进藻类在特定区域辐聚。在生物增殖方面,水温、盐度与饵食藻种的增加共同促进夜光藻繁殖速度的提升,营养盐与微量元素的增加亦直接刺激其种群扩张。与此同时,摄食压力的降低有助于藻体数量的积累,而浮游动物的增多、消亡速度与死亡率的上升则对种群增长构成抑制效应。综合来看,夜光藻赤潮的暴发是生物与物理过程相互作用的结果。物理过程决定了夜光藻的空间分布,而生物过程则控制了其种群数量的持续增长,两者协同作用,最终导致了赤潮事件的暴发与维持(图2)。
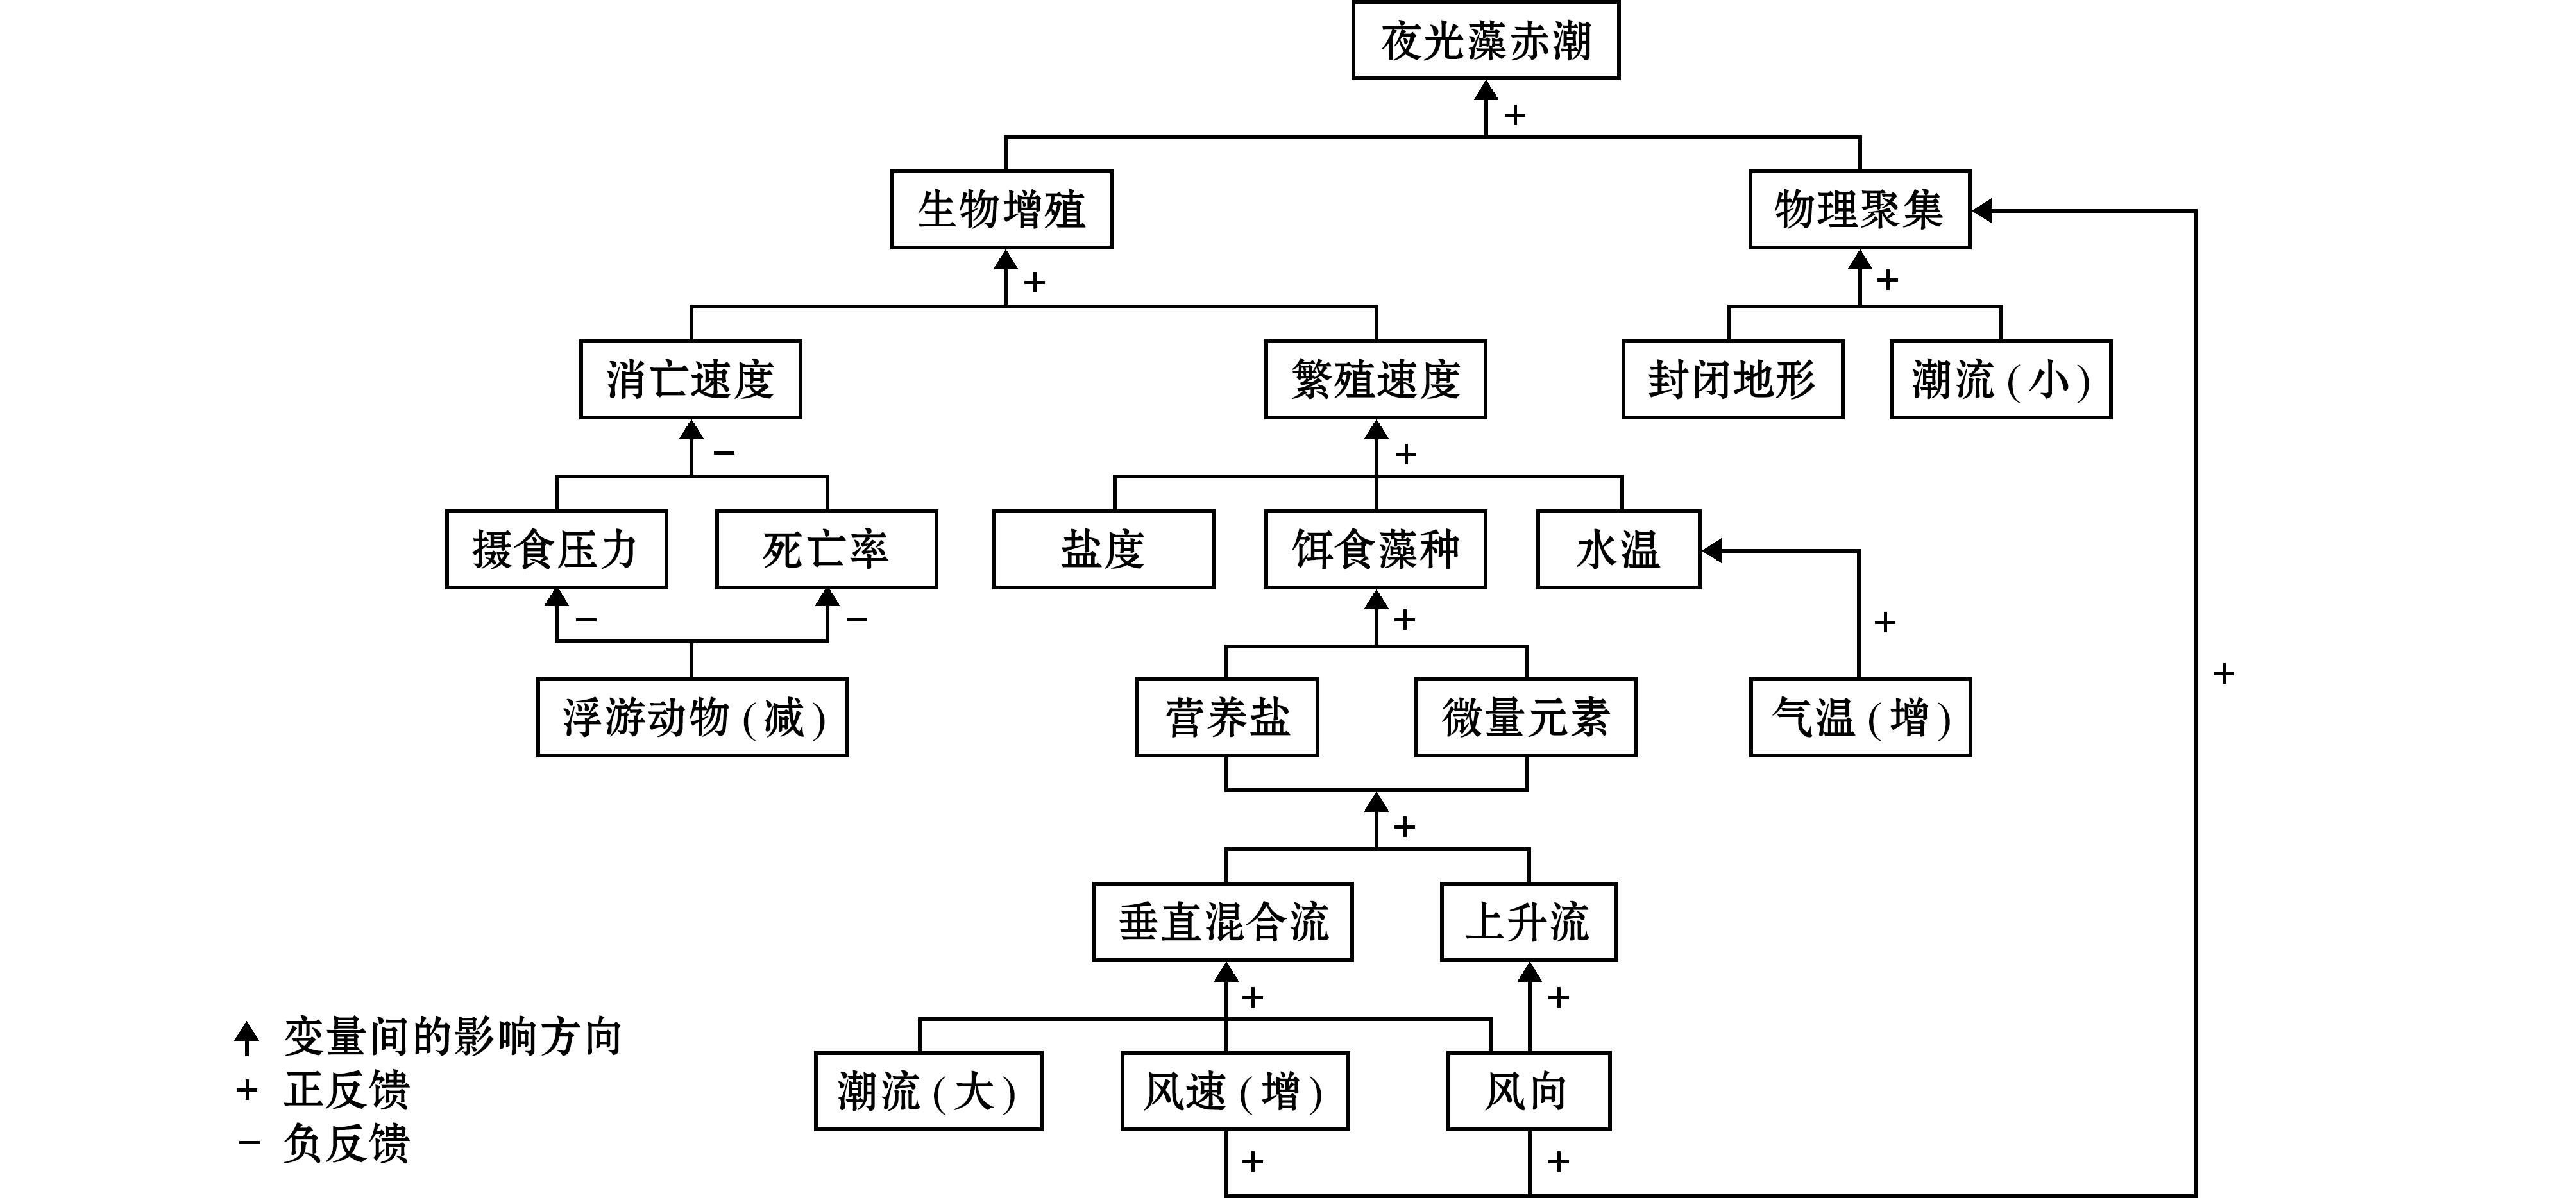
图2 夜光藻赤潮发生的要素及过程
Fig.2 Schematic diagram of the elements and process of Noctiluca scintillans red tide
3 夜光藻赤潮预测模型
预测模型在夜光藻赤潮研究中经历了从相关性统计模型到机制解析动力模型再到由大数据驱动的人工智能模型的演进过程,但跨尺度整合与多模型耦合仍是核心挑战。
3.1 统计模型
传统的赤潮预测模型以数理统计为核心工具。经典方法包括多元线性回归[42-43]、时间序列分析[44]、主成分分析等,研究者利用长期监测站点的气象、水温、营养盐(氮、磷和硅)等数据,建立环境因子与夜光藻细胞密度的统计关系模型,依赖于数学和统计方法构建预警指标体系,建立基于气象、水文和水质等各种环境因素的预测模型[45],能够识别出影响赤潮发生的几个关键驱动因子,并建立预测的经验或半经验公式,具备了初步的短期预测能力。这些模型在特定的、数据积累充分的海域(如某个海湾或养殖区)能够取得不错的效果。但其缺点也十分明显,一是泛化能力差,为一个海域建立的模型很难直接应用于其他海域;二是机理不清,模型揭示的是“相关性”,而非“因果性”,无法解释赤潮发生的复杂生物和物理过程。目前,鉴于赤潮发生机制尚未完全阐明,利用统计模型对其发生次数进行年际与季节预测,是一条经济有效的途径,此方法也是对赤潮灾害年度趋势预测和业务化预警技术的新尝试与重要补充。
3.2 机理模型
该模型研究重点转向模拟赤潮发生的完整物理和生物过程,以物理-生物耦合模型成为主流。这类模型将描述海流、温度场和湍流混合的水动力学模型(如ROMS、FVCOM)与描述夜光藻生长、死亡和摄食等行为的生态动力学模型相结合。
王寿松等[46]基于大鹏湾夜光藻赤潮关键要素的相互作用机制,融合种群生态学与营养动力学原理,构建了一个包含夜光藻、硅藻与营养盐的三组分动力学模型。利用该模型,成功地对单次赤潮的完整过程及连续3次赤潮暴发的复杂情景进行了数值模拟。模拟结果验证了模型的有效性,可为赤潮的预测预警研究提供重要的科学参考。夏综万等[47]通过海洋动力学和生物动力学相结合的方法,建立了一个赤潮发生的仿真模型。该模型包括水动力、扩散和生物动力学三部分,通过模拟潮流、营养物质等环境要素的时空变化对赤潮过程的影响,再现了赤潮发生时的部分情况。林忠豪[48]通过构建平潭海域的FVCOM水动力模型,并结合拉格朗日粒子追踪模块,详细分析了夜光藻赤潮暴发期间平潭海域内部的水体物理环境变化。
相关研究深入到机理过程层面,模型可以模拟出赤潮从形成、发展到输运扩散的整个时空动态过程,其预测能力实现了从“点”到“面”的时空动态预测,能够预测赤潮可能影响的范围、移动路径和强度变化,为防灾减灾提供了更直观的决策支持。但是这些模型还未真正应用于赤潮预报,只是在决策中起参考作用,这主要是由于其参数复杂,模型需要率定大量生物学参数,获取难度大;此外,模型运行中计算昂贵,需要高性能计算资源,难以做到业务化快速运行。
3.3 大数据与人工智能融合
卫星遥感、大数据和人工智能技术的发展,彻底改变了赤潮预测的数据基础和技术范式。
在人工智能驱动的赤潮预测研究中,主要形成了两条技术路径。第一条路径聚焦于空间识别,即利用机器学习算法对高分辨率遥感影像进行分析,通过构建先进的图像识别模型实现对赤潮时空分布的精准识别与早期预警。Cui等[49]设计并实现了一个名为NSBRNet的夜光藻赤潮(NSB)自动识别网络。该网络通过一个包含Inception卷积模块(ICB)和Swin注意力模块(SAB)的混合架构,分别提取局部细节特征和全局空间特征,在对HY-1C/D卫星海岸带成像仪(CZI)数据的应用测试中,与其他常见语义分割模型相比,NSBRNet表现出更好的性能,精度为92.22%,召回率为88.20%,NSBRNet被证实能够有效且自动地识别出目标赤潮。Liu等[50]开发了一种名为HAB-Net的精细深度学习算法,HAB-Net从GF-1 WFV图像中有效识别HAB,平均精度为90.1%,F1得分为0.86,该算法证明了其在识别不同海洋环境(如黄海、东海和越南北部)中HAB方面的有效性,本研究中展示了基于深度学习的HABs细粒度识别的潜力,该识别还可以扩展到其他细尺度和条带分布物体的识别中。然而,由于传感器配置的变化,GFRCAN模型不能直接应用于提高其他卫星图像的分辨率,此外,由于缺乏其他HAB样本,仅使用NSB样本进行HAB-Net模型训练,因此,所提算法不能直接应用于其他优势物种的HAB。
第二条路径是以机器学习为代表的人工智能算法成为核心。如支持向量机(SVM)、随机森林(RF)、卷积神经网络(CNN)、长短期记忆网络(LSTM)等被广泛应用,侧重于多源数据的融合预测,此路径整合了现场监测数据、数值模拟结果及历史数据,通过机器学习构建高维特征空间,挖掘赤潮暴发的复杂驱动模式。
刘亚林等[51]利用长短期记忆(LSTM)神经网络模型开展了对东海原甲藻赤潮发生期间叶绿素a的动态预测,小时级别预测的重要时间拐点的时间差达到3~7 h,日最大值预测的拐点日期则相同,可以较好地预测叶绿素a的变化趋势,然而,由于训练样本偏少,通过对预测值、实际值及评估指标(MSE与RMSE)的分析,评估结果表明,模型预测的峰值与实际观测峰值之间存在显著性差异(图3)。
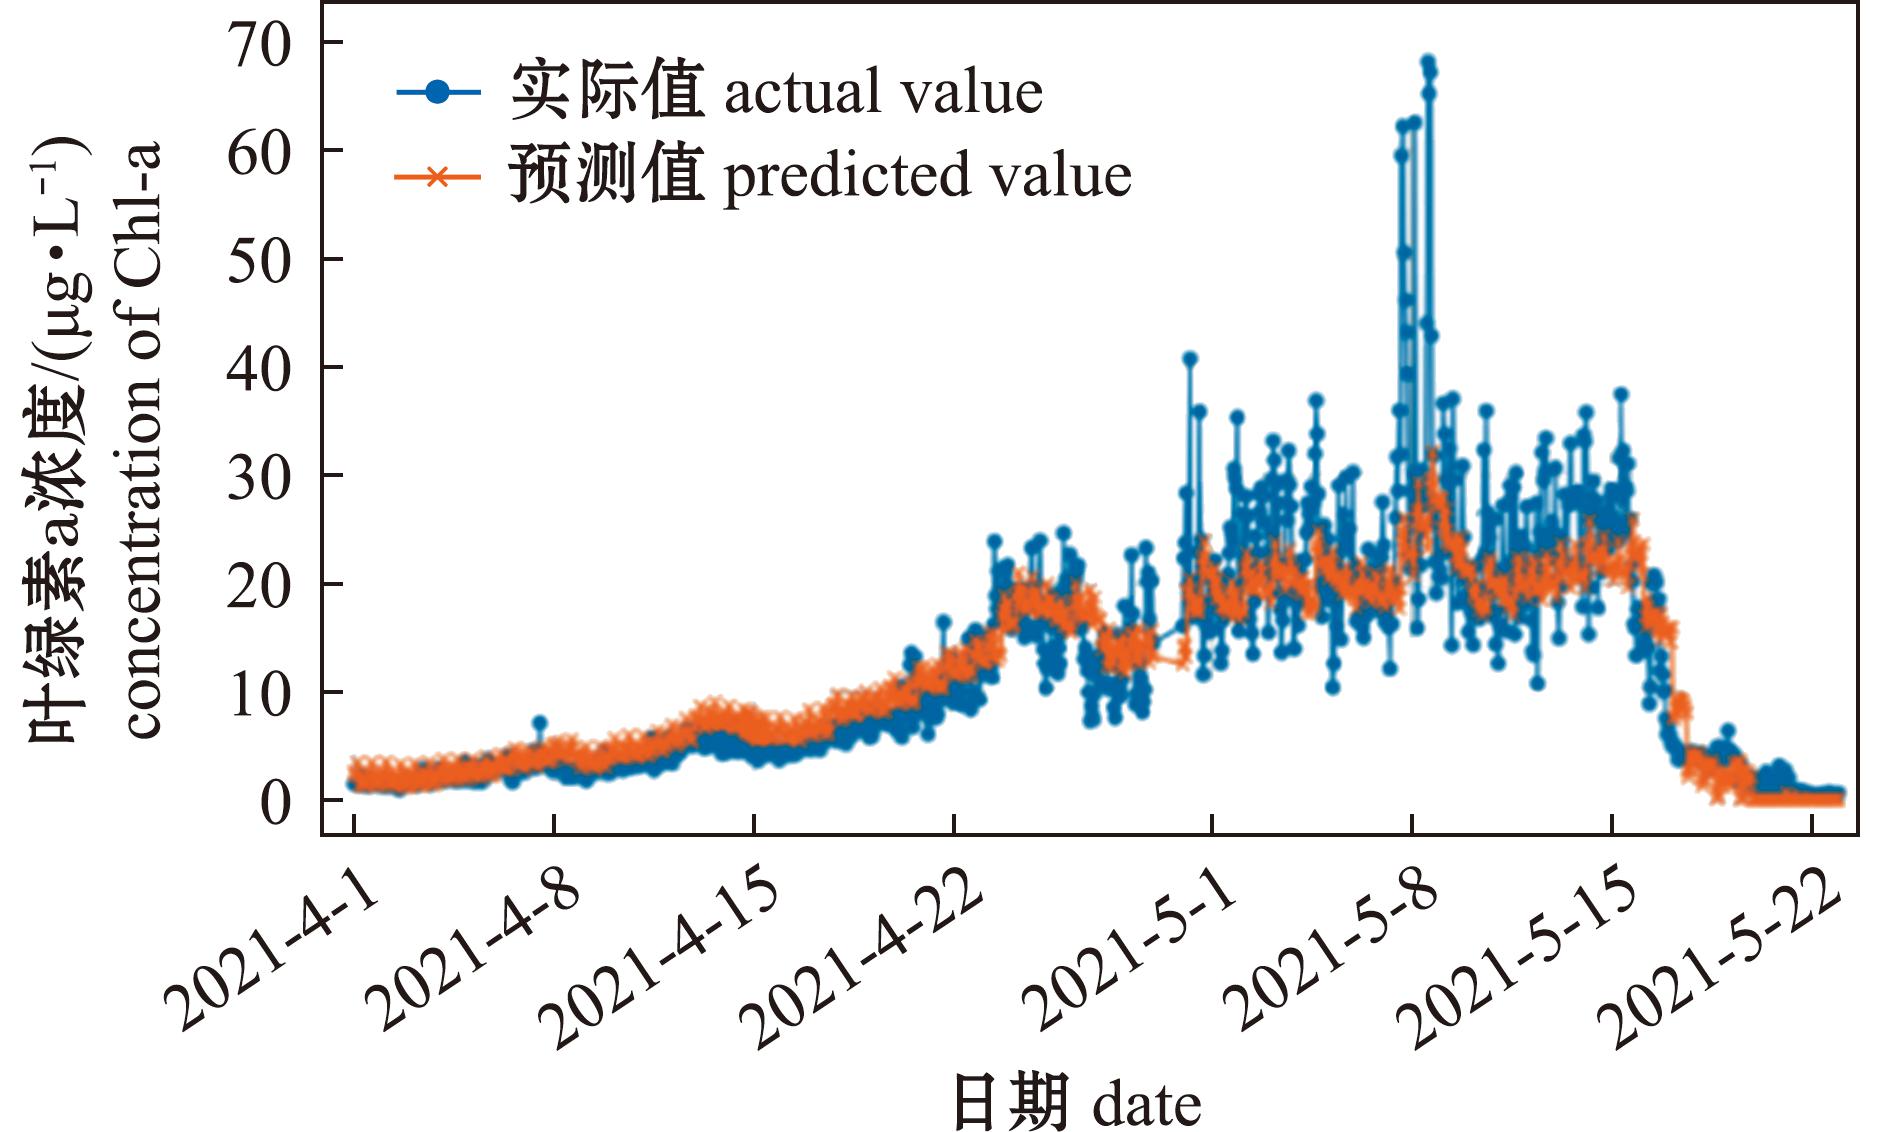
图3 小时级别预测叶绿素a与实际值对比[51]
Fig.3 Hourly predicted chlorophyll-a compared with actual vaule[51]
刘致宏[52]研究提出了一种基于天牛群算法(BSO)优化的支持向量机(BSO-SVM)赤潮预测模型,仿真结果表明,经过优化的BSO-SVM模型在夜光藻密度预测方面,其准确性和稳定性均显著优于作为对比的BSO-BP神经网络模型,从而证实了其在小样本赤潮预测场景下的优越性和适用性(图4)。赖祥源等[53]提出一种基于随机森林(RF)特征选择方法的极端梯度提升树(XGBoost)赤潮等级预测模型,通过RF算法特征重要性评估结合双侧显著皮尔逊相关性对特征进行筛选,利用极端梯度提升(XGBoost)算法构建赤潮等级分类预测模型,相比DTM、GA、SBS特征选择算法准确率更高,能够达到87.3%,AUC值为0.836,均高于另外3种算法。但是该方法在准确率方面还有待进一步提高,未来需用更高效的方法找到更优的特征子集,进而提高模型预测的准确率。
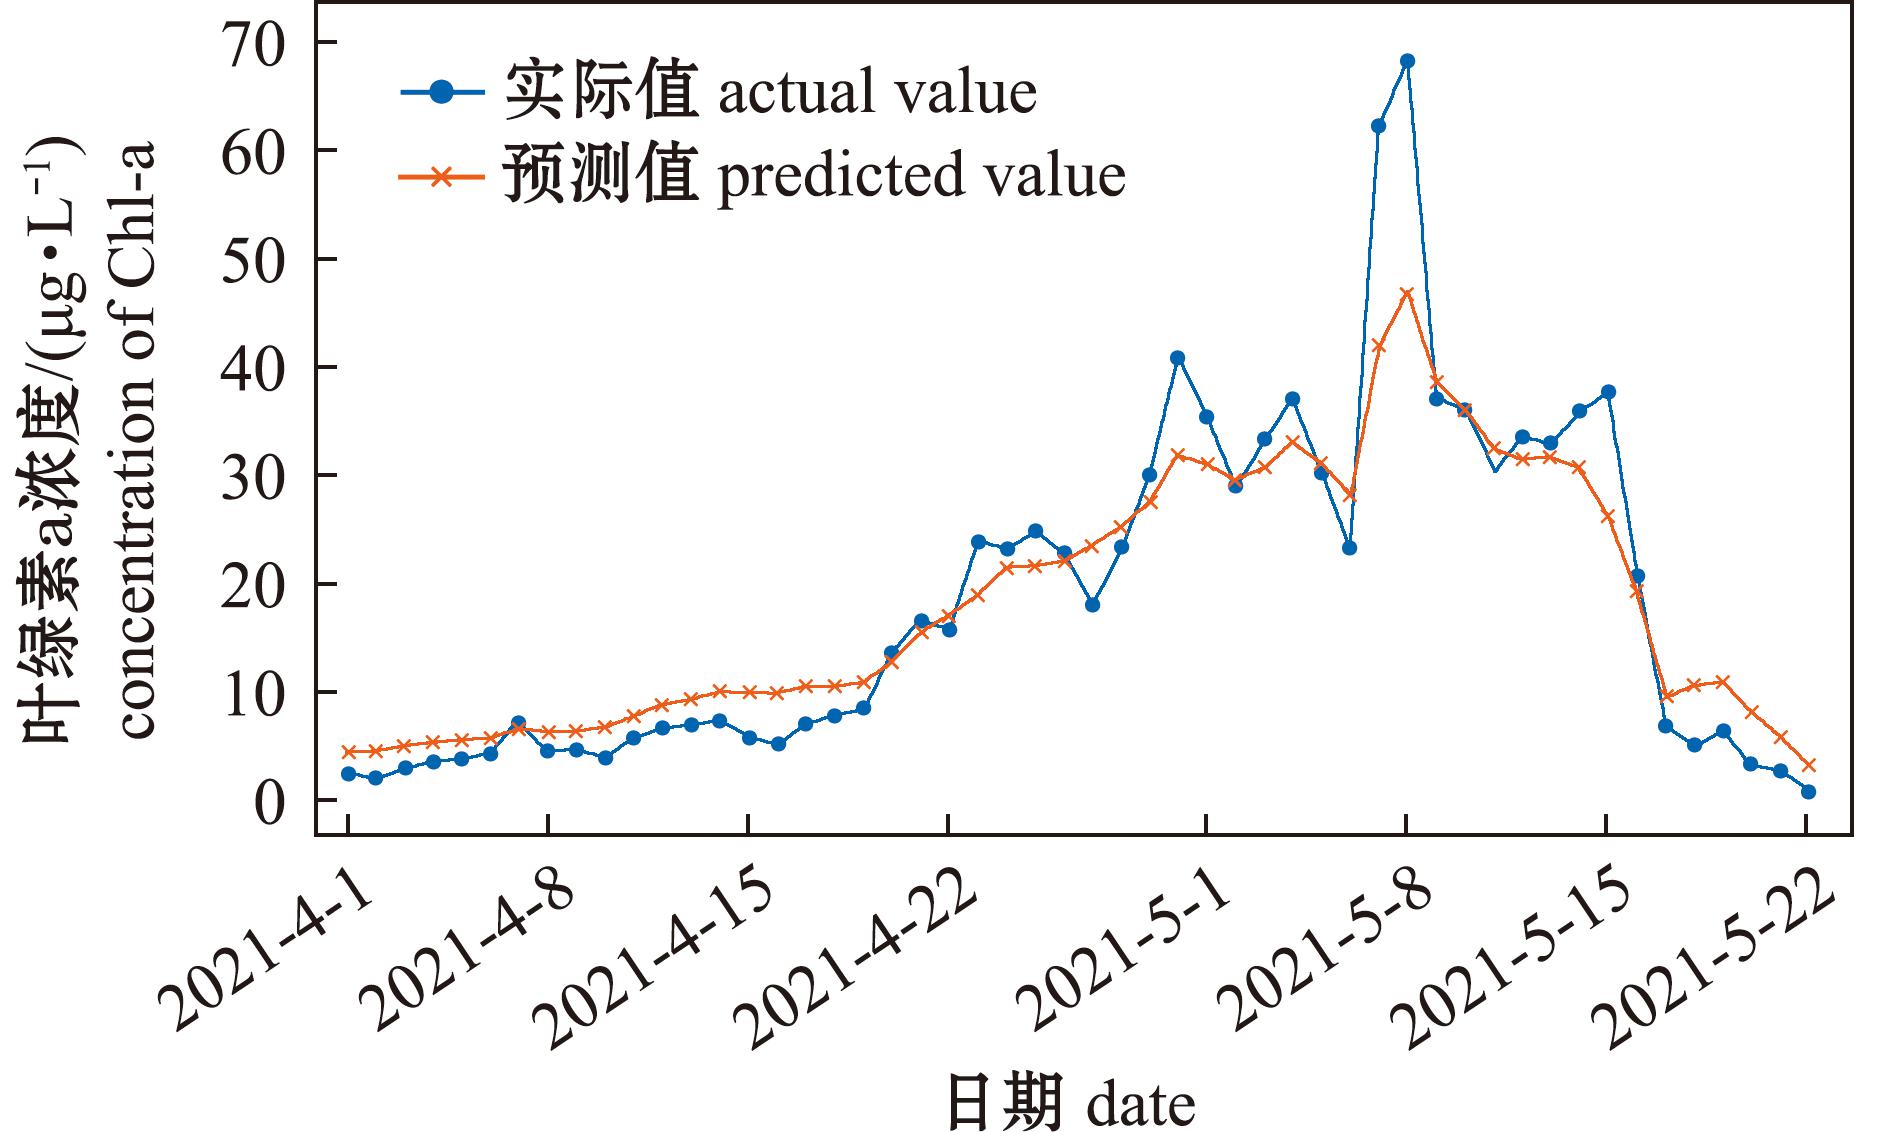
图4 以日最大值预测叶绿素a与实际值对比[52]
Fig.4 Comparison of predicted daily maximum chlorophyll a values with actual vaule[52]
目前较为前沿的第二条路径则是集时空分析于一体的混合模型。以经典的卷积神经网络-长短期记忆网络(CNN-LSTM)架构为例,该模型能够协同处理时空数据:利用CNN提取遥感影像中的空间特征,识别潜在的赤潮斑块;同时利用LSTM捕捉环境因子的时间序列演变规律。这种集成方法极大地提升了预测能力,可以进行更精准的提前预测。Cao等[54]的研究中基于2000—2019年MODIS影像和气象数据,构建了一个CNN-LSTM混合模型以预测太湖蓝藻水华(CyanoHABs)。该模型利用卷积神经网络(CNN)提取蓝藻水华的空间特征,并将这些特征与关键气象因子序列共同输入长短期记忆网络(LSTM),结果以高R2(0.91)和低平均相对误差(17.42%)验证了FAI指数提取太湖CyanoHABs区域的有效性,以实现对未来蓝藻水华的动态预测(图5)。
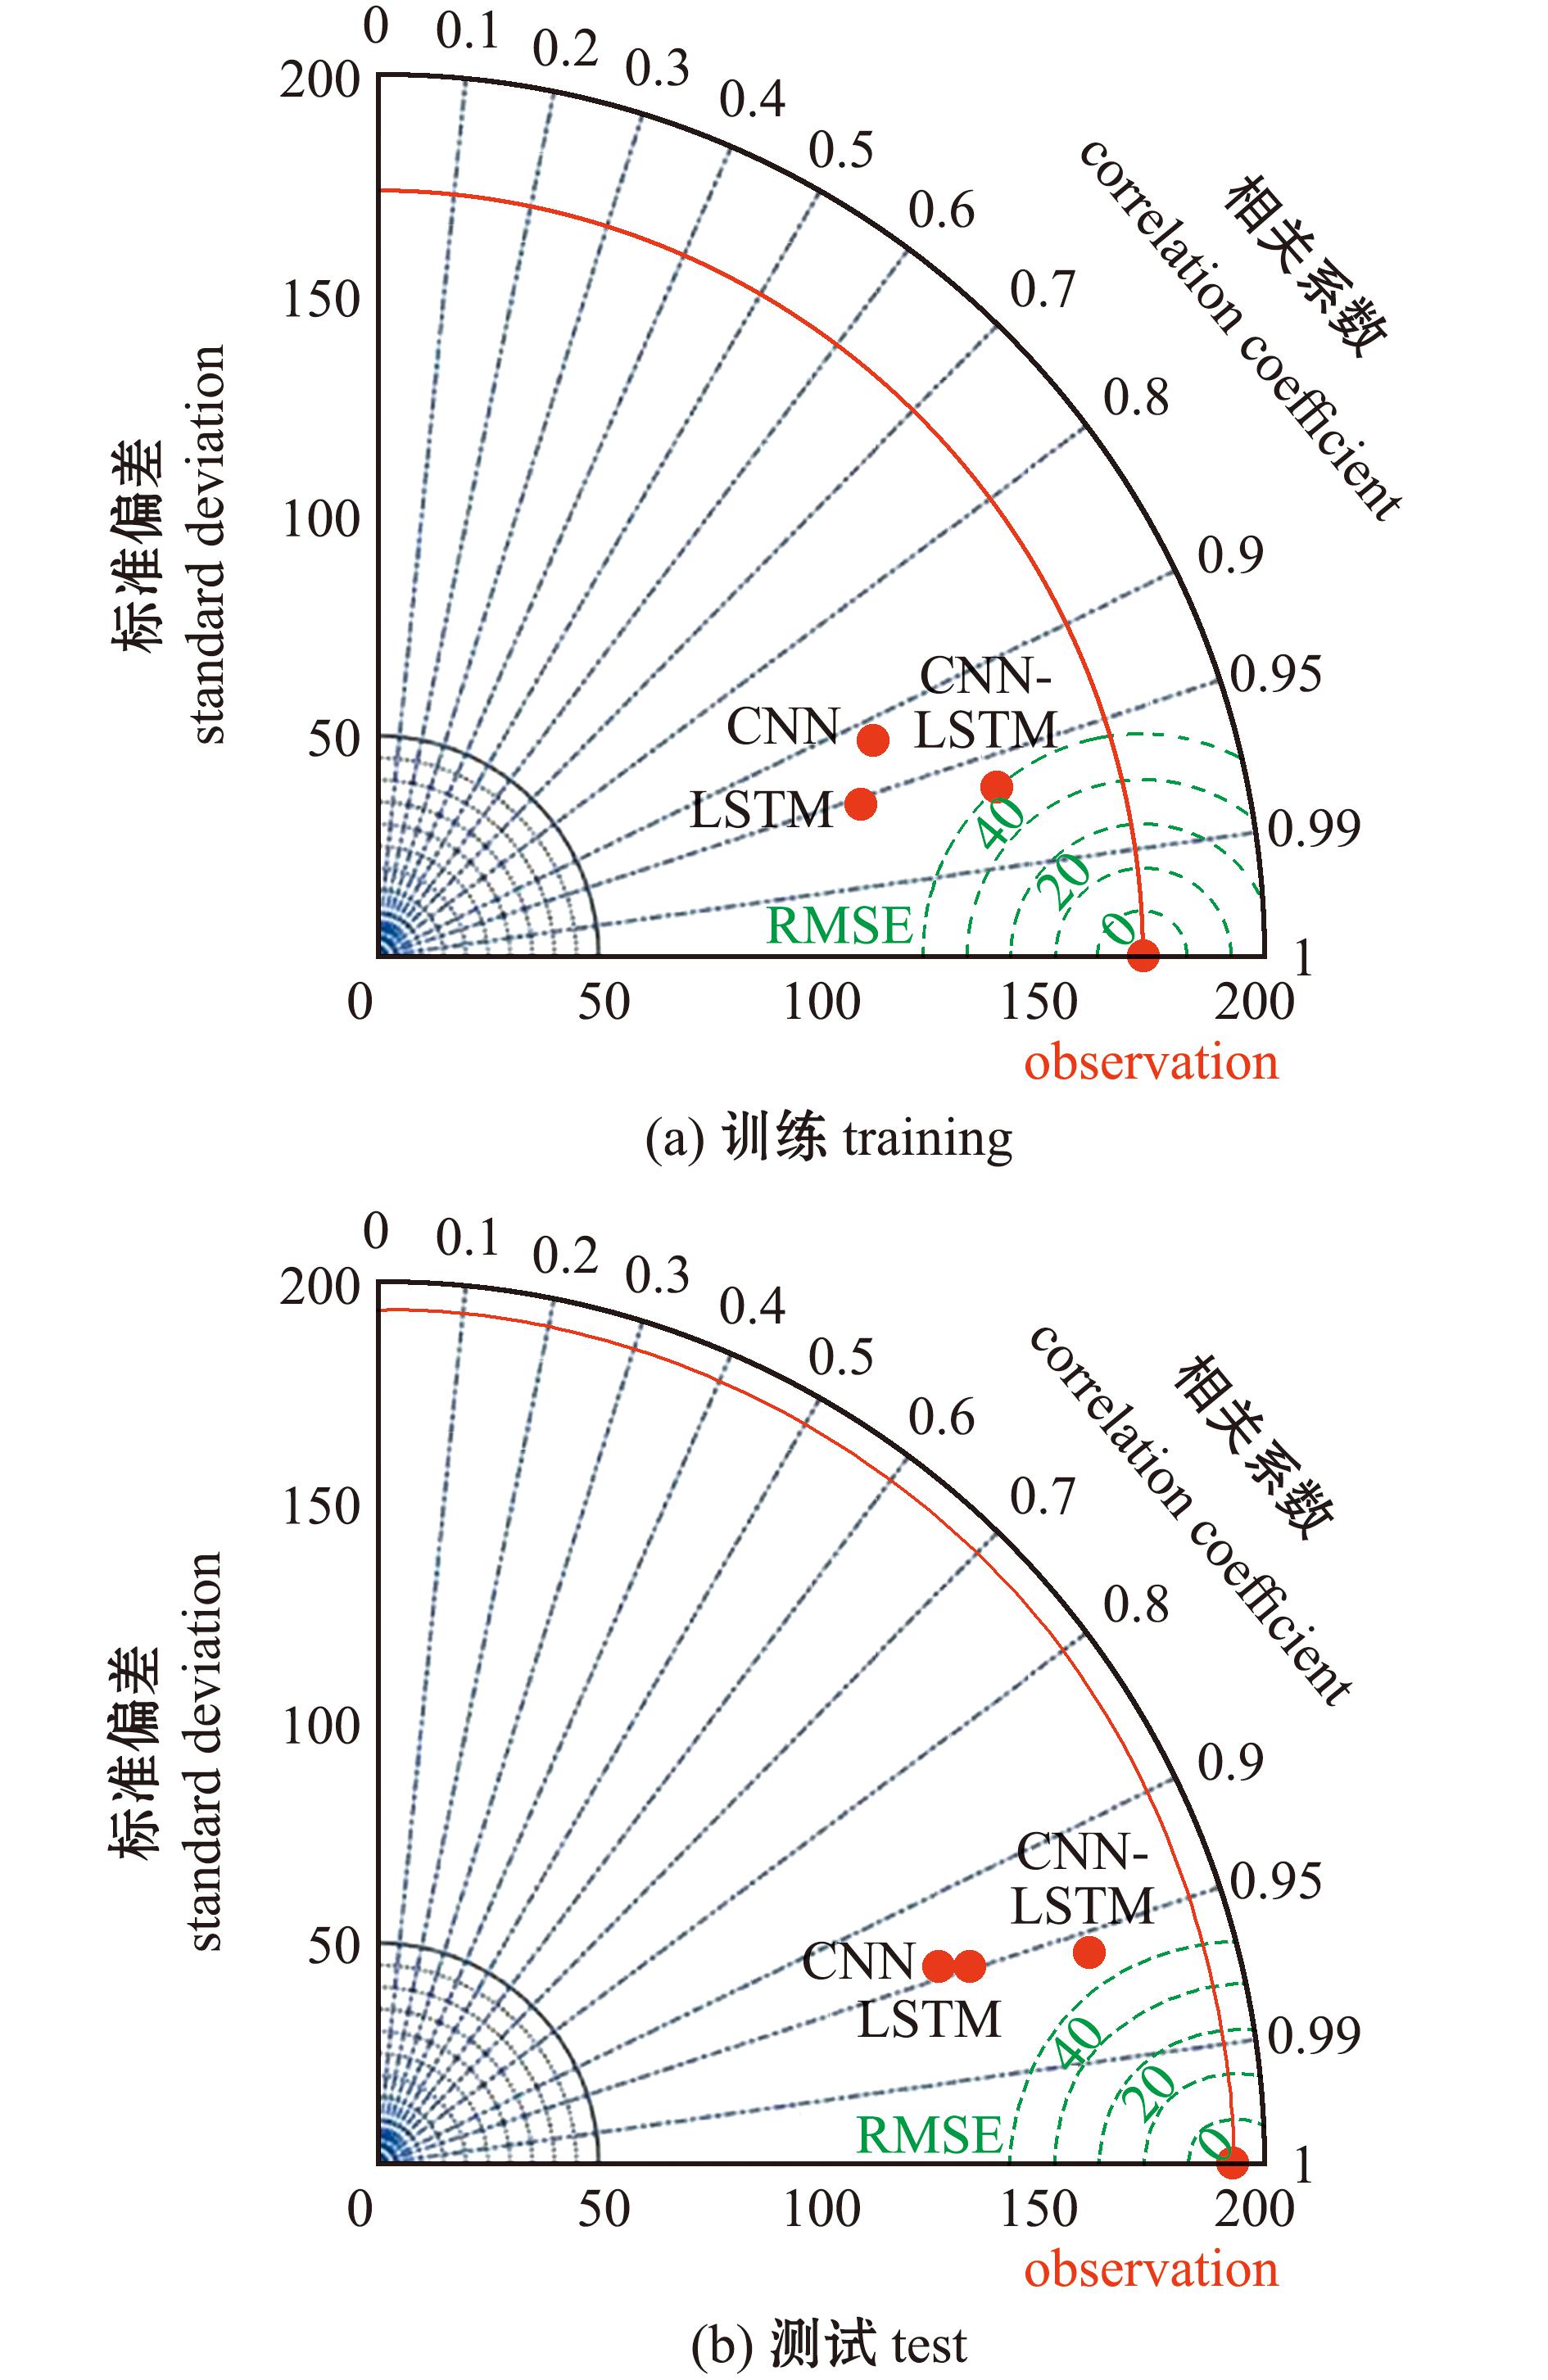
图5 基于CNN、LSTM和CNN-LSTM模型的训练和测试集的泰勒图[54]
Fig.5 Taylor plots of the training and test sets based on three models:CNN,LSTM,and CNN-LSTM[54]
尽管国内外关于赤光藻类预测模型的研究已广泛开展并取得一定进展,但现有研究多聚焦于确定性因素对藻类生长的直接效应,而未能充分反映赤潮从形成到暴发的复杂动态过程。因此,整合更多环境与生态学数据,进一步构建和完善种群动态随机模型,将有助于建立更为科学的夜光藻赤潮预测体系与风险评估方法。
4 总结与展望
本文首先回顾了夜光藻赤潮研究的三个历史阶段,然后对夜光藻赤潮的形成机制理论和夜光藻赤潮灾害预测方法作出了总结与归纳。夜光藻赤潮的发生是一个由多种环境因子协同驱动的动态过程,这些因子间的交互效应通常是非线性的,影响夜光藻生长的关键环境因子因海区及环境条件而异,主要涵盖理化因子(如温度、盐度、pH、溶解氧及营养盐浓度)、水文动力因子(水体层化、环流与水团输运、风场与风生流等)与生物因子(如浮游植物群落)。目前,尽管对于夜光藻赤潮的研究已取得一系列进展,但仍存在诸多问题有待进一步解决。
4.1 夜光藻的分子生物与遗传学研究
尽管前期研究通过宏观生态学方法奠定了重要基础,然而在分子水平上解析夜光藻的生态适应性与种群动态等关键机制的研究仍亟待深入。未来可以利用转录组等多组学技术,揭示夜光藻在营养限制、温度突变等胁迫条件下的适应性分子策略;还需研究有性生殖与休眠机制的分子调控,阐明有性生殖触发的分子信号等。
4.2 夜光藻赤潮形成机制研究
夜光藻赤潮的形成是一个多要素综合的结果,不仅受理化因子的影响,也受水文动力条件和其自身生物特性的作用。未来应突破单一环境因子的限制性分析,重点揭示理化因子(如温度、盐度、pH、溶解氧及营养盐浓度)、水文动力因子(水体层化、环流与水团输运、风场与风生流等)与生物因子(如浮游植物、浮游动物、桡足类及鱼虫类的卵、细菌及有机碎屑等)等关键驱动因子之间的协同、拮抗与级联效应。应结合控制试验与统计建模,量化多因子耦合作用下赤潮发生的阈值行为与突变条件,阐明其非线性驱动机制。
4.3 夜光藻赤潮灾害预测研究
针对热点区域,未来可以在该海域进行高相关性多参数的长时序监测,为深度学习提供充足的可挖掘数据;利用人工神经网络等先进架构,有机整合卫星遥感、环境DNA、长期生态监测等多源异构数据,重点提升模型对复杂、非线性生态过程的表征能力,以及在高噪声背景下的预警性能,构建实时预警系统。同时,在遥感算法方面,针对夜光藻不含叶绿素的特性,进一步研究针对其特点的专属遥感算法。
[1] 符传辉,陈峻峰,刘志媛,等.海南岛西部海域球形棕囊藻赤潮过程环境因子变化特征及影响因素分析[J].海洋学报,2023,45(5):27-38.FU C H,CHEN J F,LIU Z Y,et al.Analysis on the variation characteristics of environmental factors and influencing factors in the process of Phaeocystis globosa bloom in the western waters of Hainan Island[J].Haiyang Xuebao,2023,45(5):27-38.(in Chinese)
[2] BERDALET E,KUDELA R,URBAN E,et al.GlobalHAB:a new program to promote international research,observations,and modeling of harmful algal blooms in aquatic systems[J].Oceanography,2017,30(1):70-81.
[3] TSAI S F,WU L Y,CHOU W C,et al.The dynamics of a dominant dinoflagellate,Noctiluca scintillans,in the subtropical coastal waters of the Matsu Archipelago[J].Marine Pollution Bulletin,2018,127:553-558.
[4] XU Y W,TANG Y X,WANG C Y,et al.Key environmental predictors of Noctiluca scintillans distribution in the China sea and its climate change response[J].Environmental Pollution,2025,367:125672.
[5] MACARTNEY J.Observations on luminous animals[J].The Medical and Physical Journal,1811,25(147):409-424.
[6] EHRENBERG C G.Das Leuchten des Meeres:neue Beobachtungen nebst Übersicht der Hauptmomente der geschichtlichen Entwicklung dieses merkwürdigen Phänomens[M].Berlin:Königliche Akademie der Wissenschaften,1835.
[7] KOFOID C A,SWEZY O.The free-living unarmored dinoflagellata[M].Berkeley,Calif:University of California Press,1921.
[8] HARRISON P J,FURUYA K,GLIBERT P M,et al.Geographical distribution of red and green Noctiluca scintillans[J].Chinese Journal of Oceanology and Limnology,2011,29(4):807-831.
[9] 黄长江,齐雨藻,黄奕华,等.南海大鹏湾夜光藻种群生态及其赤潮成因分析[J].海洋与湖沼,1997,28(3):245-255.HUANG C J,QI Y Z,HUANG Y H,et al.The population ecology and causative mechanisms of red tide of Noctiluca scintillans in Danpeng bay,the s0uth China sea[J].Oceanologia et Limnologia Sinica,1997,28(3):245-255.(in Chinese)
[10] 谢健,李锦蓉,吕颂辉,等.夜光藻赤潮与环境因子的关系[J].海洋通报,1993,12(2):1-6.XIE J,LI J R,LÜ S H,et al.Features of red tide caused by Notiluca scientillans off Yantian coast within Dapeng bay[J].Marine Science Bulletin,1993,12(2):1-6.(in Chinese)
[11] 陈汉辉,杞桑.夜光藻摄食和营养繁殖的昼夜节律[J].暨南大学学报(自然科学与医学版),1991,12(3):104-107,111.CHEN H H,QI S.The feeding and vegetative reproduction diurnal rhythms of Noctiluca scintillas[J].Journal of Jinan University(Natural Science and Medicine Edition),1991,12(3):104-107,111.(in Chinese)
[12] 黄伟建,齐雨藻.大鹏湾海水理化因子对夜光藻生长影响的因子分析[J].海洋通报,1993,12(2):17-22.HUANG W J,QI Y Z.Environmental influence on growth of Noctiluca scientillans in Dapeng bay,north of South China Sea[J].Marine Science Bulletin,1993,12(2):17-22.(in Chinese)
[13] 徐韧,沈竑,王桂兰,等.夜光藻的实验室培养及对其带触手二分裂现象的观察[J].水产学报,1995(3):268-271.XU R,SHEN H,WANG G L,et al.Laboratory culture and observation of equal binary fission with tentacle in Noctiluca scintillans(macartney)[J].Journal of Fisheries of China,1995(3):268-271.(in Chinese)
[14] 钱宏林,梁松,齐雨藻.广东沿海赤潮的特点及成因研究[J].生态科学,2000,19(3):8-16.QIAN H L,LIANG S,QI Y Z.Study of the characteristics and the causes of formation on the red tides in coastal Guangdong Sea[J].Ecologic Science,2000,19(3):8-16.(in Chinese)
[15] KIRCHNER M,SAHLING G,UHLIG G.Does Noctiluca scintillans have an impact on the diatom populations in the German Bight[J].Journal of Plankton Research,18(5),785-794.
[16] 国家质量监督检验检疫总局,中国国家标准化管理委员会.海洋监测规范 第7部分:近海污染生态调查和生物监测:GB 17378.7—2007[S].北京:中国标准出版社,2008.General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China,Standardization Administration of the People’s Republic of China.The specification for marine monitoring:Part 7:Ecological survey for offshore pollution and biological monitoring:GB 17378.7—2007[S].Beijing:Standards Press of China,2008.(in Chinese)
[17] 宋文鹏,陈江麟,崔文林.赤潮爆发现场多源数据集光谱特征分析[C]//中国空间科学学会空间遥感专业委员会.成像光谱技术与应用研讨会论文集.国家海洋局北海分局,2002:52-56.SONG W P,CHEN J L,CUI W L.Spectral characteristic analysis of multi-source data set at red tide outbreak site[C]//Space Remote Sensing Committee of Chinese Society of Space Science.Proceedings of the Symposium on Imaging Spectroscopy Technology and Application.North Sea Branch,State Oceanic Administration,2002:52-56.(in Chinese)
[18] DO ROS RIO GOMES H,GOES J I,MATONDKAR S G P,et al.Massive outbreaks of Noctiluca scintillans blooms in the Arabian Sea due to spread of hypoxia[J].Nature Communications,2014,5:4862.
[19] GOMES R D H,MCKEE K,MILE A,et al.Influence of light availability and prey type on the growth and photo-physiological rates of the mixotroph Noctiluca scintillans[J].Frontiers in Marine Science,2018,5:374.
[20] CHOI S Y,JANG P G,CHA H G,et al.Dynamics of Noctiluca scintillans blooms:a 20-year study in Jangmok Bay,Korea[J].Science of the Total Environment,2024,947:174592.
[21] 王义衎,刘荣杰,刘建强,等.基于光谱特征的HY-1C/D卫星赤潮探测方法:以红夜光藻为例[J].海洋学报,2023,45(12):166-178.WANG Y K,LIU R J,LIU J Q,et al.Detection method of red tide based on the spectral features from HY-1C/D satellite:take red Noctiluca scintillans blooms as an example[J].Haiyang Xuebao,2023,45(12):166-178.(in Chinese)
[22] 林湘园.气候变化背景下中国沿海红色夜光藻赤潮的长期时空变化特征研究[D].厦门:自然资源部第三海洋研究所,2025.LIN X Y.Long-term temporal and spatial variation characteristics of red Noctiluca scintillans red tide along the coast of China under the background of climate change[D].Xiamen:Third Institute of Oceanography,Ministry of Natural Resources,2025.(in Chinese)
[23] 于国欣.海洋酸化和盐度变化对夜光藻生长的影响及机理探讨[D].大连:大连海洋大学,2024.YU G X.Effects of ocean acidification and salinity changes on the growth of Noctiluca scintillans and its mechanism[D].Dalian:Dalian Ocean University,2024.(in Chinese)
[24] FONDA UMANI S,BERAN A,PARLATO S,et al.Noctiluca scintillans MACARTNEY in the Northern Adriatic Sea:long-term dynamics,relationships with temperature and eutrophication,and role in the food web[J].Journal of Plankton Research,2004,26(5):545-561.
[25] 廖永岩,谢叶,谢伟阳,等.由养殖废水导致的湛江硇洲岛海域夜光藻赤潮[J].热带生物学报,2012,3(3):276-280.LIAO Y Y,XIE Y,XIE W Y,et al.Harmful algal blooms of Noctiluca scintillans resulted from wastewater of aquaculture in the waters around the Naozhou Island,Zhanjiang,China[J].Journal of South China University of Tropical Agriculture,2012,3(3):276-280.(in Chinese)
[26] 杨幸幸,杨颖,许彩燕,等.福建和浙江海域夜光藻赤潮2009—2019年的变化及主要环境因子分析[C]//《海洋开发与管理》杂志社.第三届海洋开发与管理学术年会论文集.国家海洋局东海环境监测中心,2019:76-83.YANG X X,YANG Y,XU C Y,et al.Variations and analysis of main environmental factors of Noctiluca scintillans red tide in Fujian and Zhejiang sea areas from 2009 to 2019[C]//Ocean Development and Management Magazine Agency.Proceedings of the Third Annual Academic Conference on Ocean Development and Management.East China Sea Environmental Monitoring Center,State Oceanic Administration,2019:76-83.(in Chinese)
[27] 黎慧玲,徐轶肖,吴淼,等.北部湾首次记录到的大规模夜光藻赤潮期间浮游植物与细菌群落分析[J].海洋学报(中文版),2023,45(5):39-52.LI H L,XU Y X,WU M,et al.Analysis of phytoplankton and bacterial community during the first recor-ded massive Noctiluca scintillans bloom in the Beibu Gulf,China[J].Haiyang Xuebao,2023,45(5):39-52.(in Chinese)
[28] ZHANG W J,DONG Z J,ZHANG C,et al.Effects of physical-biochemical coupling processes on the Noctiluca scintillans and Mesodinium red tides in October 2019 in the Yantai nearshore,China[J].Marine Pollution Bulletin,2020,160:111609.
[29] TADA K,PITHAKPOL S,MONTANI S.Seasonal variation in the abundance of Noctiluca scintillans in the Seto Inland Sea[J].Plankton Biol.Ecol.,51:7-14.
[30] QI L,HU C M,LIU J Q,et al.Noctiluca blooms in the East China Sea bounded by ocean fronts[J].Harmful Algae,2022,112:102172.
[31] 徐兆礼.长江口夜光藻(Noctiluca scintillans)年间变化和水域富营养化趋势[J].海洋与湖沼,2009,40(6):793-798.XU Z L.The inter-annual variations in Noctiluca scintillans abundance and eutrophication in Changjiang estuary[J].Oceanologia et Limnologia Sinica,2009,40(6):793-798.(in Chinese)
[32] DAI Y H,YANG S B,ZHAO D,et al.Coastal phytoplankton blooms expand and intensify in the 21st century[J].Nature,2023,615(7951):280-284.
[33] 陈晓.复杂流动中典型赤潮藻聚集的水动力机制研究[D].北京:中国水利水电科学研究院,2019.CHEN X.Hydrodynamic mechanism of accumulation for typical algae in red tide in a complexflow[D].Beijing:China Institute of Water Resources and Hydropower Research,2019.(in Chinese)
[34] 田达玮.胶州湾夜光藻种群动态及其摄食特征研究[D].青岛:中国科学院大学(中国科学院海洋研究所),2017.TIAN D W.Study on population dynamics and feeding characteristics of Noctiluca scintillans in Jiaozhou Bay[D].Qingdao:Institute of Oceanology,Chinese Academy of Sciences,2017.(in Chinese)
[35] KIØRBOE T,TITELMAN J.Feeding,prey selection and prey encounter mechanisms in the heterotrophic dinoflagellate Noctiluca scintillans[J].Journal of Plankton Research,1998,20(8):1615-1636.
[36] 胡翠林,金海卫,李振华,等.赤潮生物夜光藻的研究进展[J].浙江海洋学院学报(自然科学版),2015(4):379-386.HU C L,JIN H W,LI Z H,et al.Research advance of Noctiluca scintillans[J].Journal of Zhejiang Ocean University (Natural Science Edition),2015(4):379-386.(in Chinese)
[37] UHLIG G,SAHLING G.Long-term studies on Noctiluca scintillans in the German Bight population dynamics and red tide phenomena 1968-1988[J].Netherlands Journal of Sea Research,1990,25(1/2):101-112.
[38] LUTZ R A,INCZE L S.Impact of toxic dinoflagellate blooms on the North American shellfish industry[C]//TAYLOR D L,SELIGER H H.Toxic dinoflagellate blooms.Amsterdam:Elsevier/North Holland,1979:476-483.
[39] LIN Q,TSAI S F,CHEN Y,et al.In search of red Noctiluca scintillans blooms in the East China Sea[J].Geophysical Research Letters,2019,46(11):5997-6004.
[40] 曹新宇,李远眉,王伟,等.温度和盐度对夜光藻种群密度增长的影响[J].大连海洋大学学报,2021,36(1):95-102.CAO X Y,LI Y M,WANG W,et al.Effects of temperature and salinity on increase in population density of Alga Noctiluca scintillans[J].Journal of Dalian Ocean University,2021,36(1):95-102.(in Chinese)
[41] 王寿松,冯国灿,夏综万,等.大鹏湾夜光藻赤潮发生要素的结构分析[J].海洋与湖沼,1994,25(2):146-151.WANG S S,FENG G C,XIA Z W,et al.Structural analysis of the essential factors associated with the Noctiluca scintillans red tide in Dapeng bay[J].Oceanologia et Limnologia Sinica,1994,25(2):146-151.(in Chinese)
[42] 林祖享,梁舜华.探讨运用多元回归分析预报赤潮[J].海洋环境科学,2002,21(3):1-4.LIN Z X,LIANG S H.Forecast of red tide with multi-variable regression[J].Marine Environmental Science,2002,21(3):1-4.(in Chinese)
[43] 谢中华,王洪礼,史道济,等.运用混合回归模型预报赤潮[J].海洋技术,2004,23(1):27-30.XIE Z H,WANG H L,SHI D J,et al.Forecast of red tide with mixed regression model[J].Ocean Technology,2004,23(1):27-30.(in Chinese)
[44] 徐丽丽,余骏,高鑫鑫,等.一种基于时间序列分析的赤潮预测新方法研究:以浙江海域为例[J].海洋预报,2020,37(5):95-103.XU L L,YU J,GAO X X,et al.Study on the red tide prediction based on time series analysis:a case study in Zhejiang sea area[J].Marine Forecasts,2020,37(5):95-103.(in Chinese)
[45] YANG G J,TANG X M,WILHELM S W,et al.Intermittent disturbance benefits colony size,biomass and dominance of Microcystis in Lake Taihu under field simulation condition[J].Harmful Algae,2020,99:101909.
[46] 王寿松,冯国灿,段美元,等.大鹏湾夜光藻赤潮的营养动力学模型[J].热带海洋,1997,16(1):1-6.WANG S S,FENG G C,DUAN M Y,et al.A model on nutrient dynamics for Noctiluca scintillans red tide in Dapeng bay[J].Tropic Oceanology,1997,16(1):1-6.(in Chinese)
[47] 夏综万,于斌,史键辉,等.大鹏湾的赤潮生态仿真模型[J].海洋与湖沼,1997,28(5):468-474.XIA Z W,YU B,SHI J H,et al.An ecological simulation model of red tide in Dapeng bay[J].Oceanologia et Limnologia Sinica,1997,28(5):468-474.(in Chinese)
[48] 林忠豪.平潭海域夜光藻暴发的气象、水文机制研究[D].南京:南京信息工程大学,2024.LIN Z H.Study on meteorological and hydrological mechanism of nocturnal algae outbreak in Pingtan sea area[D].Nanjing:Nanjing University of Information Science &Technology,2024.(in Chinese)
[49] CUI H L,CHEN S G,HU L B,et al.HY1C/D-CZI Noctiluca scintillans bloom recognition network based on hybrid convolution and self-attention[J].Remote Sensing,2023,15(7):1757.
[50] LIU R J,CUI B G,DONG W W,et al.A refined deep-learning-based algorithm for harmful-algal-bloom remote-sensing recognition using Noctiluca scintillans algal bloom as an example[J].Journal of Hazardous Materials,2024,467:133721.
[51] 刘亚林,孙国平,马志凯,等.运用LSTM神经网络模型开展浙南海域东海原甲藻赤潮预测的初步实践[J].海洋预报,2025,42(4):118-125.LIU Y L,SUN G P,MA Z K,et al.Exploration and practice of LSTM neural network model for predicting Prorocentrum donghaiense red tide along the coast of southern Zhejiang[J].Marine Forecasts,2025,42(4):118-125.(in Chinese)
[52] 刘致宏.基于神经网络和SVM的赤潮灾害预测算法研究[D].桂林:桂林电子科技大学,2020.LIU Z H.Research on red tide disaster prediction algorithm based on neural network and SVM[D].Guilin:Guilin University of Electronic Technology,2020.(in Chinese)
[53] 赖祥源,朱勤东,陈火荣,等.基于RF特征选择和XGBoost模型的赤潮等级预测[J].渔业研究,2021,43(1):1-12.LAI X Y,ZHU Q D,CHEN H R,et al.Red tide level prediction based on RF feature selection and XGBoost model[J].Journal of Fisheries Research,2021,43(1):1-12.(in Chinese)
[54] CAO H Y,HAN L,LI L Z.A deep learning method for cyanobacterial harmful algae blooms prediction in Taihu Lake,China[J].Harmful Algae,2022,113:102189.