小黄鱼(Larimichthys polyactis)隶属于石首鱼科黄鱼属[1-3],是西北太平洋特有的暖温性近底层集群鱼类[4],主要分布于渤海、黄海、东海的软泥或泥沙底质海区[5-6],是重要的经济鱼类之一。东海带鱼国家级水产种质资源保护区(以下简称“带鱼保护区”)是农业农村部建立的面积最大的水产种质资源保护区[7],是众多鱼类的重要诱饵场、产卵场和洄游走廊[8],小黄鱼是其主要保护对象之一。近十几年来,在过度捕捞、海洋环境污染和气候变化等多重压力叠加作用下[9],小黄鱼资源显著衰退,出现个体小型化、低龄化和性成熟提前等现象[10-11],不仅削弱了带鱼保护区生态系统的稳定性,也降低了渔业资源恢复力及保护区的经济效益和保护价值。目前,针对小黄鱼生活史及其时空分布的研究已经在黄海中南部、江苏近岸海域及东海等区域广泛开展[12-14],但从带鱼保护区这一特定区域出发的系统研究仍相对薄弱。小黄鱼处于较高营养级,在能量传递和群落结构维持中具有重要作用[15]。在带鱼保护区尺度上厘清春、秋两季小黄鱼的时空分布格局及其对温度、盐度、水深等环境因子的响应,对于精准识别“高资源密度区”、避开小黄鱼“生活史关键期”[16]具有重要意义。
鉴于此,本研究中使用广义加性模型(generalized additive model,GAM)[17-18]进行分析,广义加性模型是目前渔业生态学中常用的回归工具,能够灵活刻画生物资源与环境因子之间的非线性关系,广泛用于栖息地分布预测及资源-环境关系分析[19-21]。在实际渔业调查中,单一鱼种的空间分布往往呈现明显的斑块性特征,导致大量调查站位渔获量为零[22-23],而非零渔获多以连续型CPUE或生物量形式记录,所以本研究中采用适用于零膨胀连续数据结构的两阶段模型进行分析。基于带鱼保护区2022—2024年春、秋季渔业资源调查数据,本研究中利用GAM系统评估小黄鱼的时空分布格局及其关键环境驱动因子,重点探究春秋两季小黄鱼时空分布及其环境驱动机制,以期为带鱼保护区小黄鱼幼鱼资源保护及禁渔管理提供科学依据。
1 材料与方法
1.1 材料
本研究中小黄鱼调查数据来源于浙江省海洋水产研究所2022—2024年各年春季(4月)和秋季(11月)在带鱼保护区进行的底拖网渔业资源调查。调查站位共设25个(图1),调查船为“浙普渔43019”,船长为30 m,型宽为6 m,总吨位为96 t,主机功率为184 kW。调查渔具为单船单囊型底拖网,其网口拉直周长为58 m,网身拉直长度为48 m,上纲长为40 m,下纲长为45 m,囊网网目尺寸为25 mm。各站位设定拖曳时间为60 min,平均拖速为3.0 kn。同时借助温盐深仪(CTD)对调查海域的水深(water depth,WD)、底层盐度(sea bottom salinity,SBS)、底层水温(sea bottom temperature,SBT)和叶绿素a浓度(chlorophyll-a concentration,Chl-a)等环境因子进行同步测定。采集样品带回实验室后,依照《海洋渔业资源调查规范》[24]开展生物学测定。根据小黄鱼生活习性,初步选取水深、底层盐度、底层水温和叶绿素a浓度等关键环境因子及经度(longitude,lon)、纬度(latitude,lat)、年份(year)纳入分析体系。
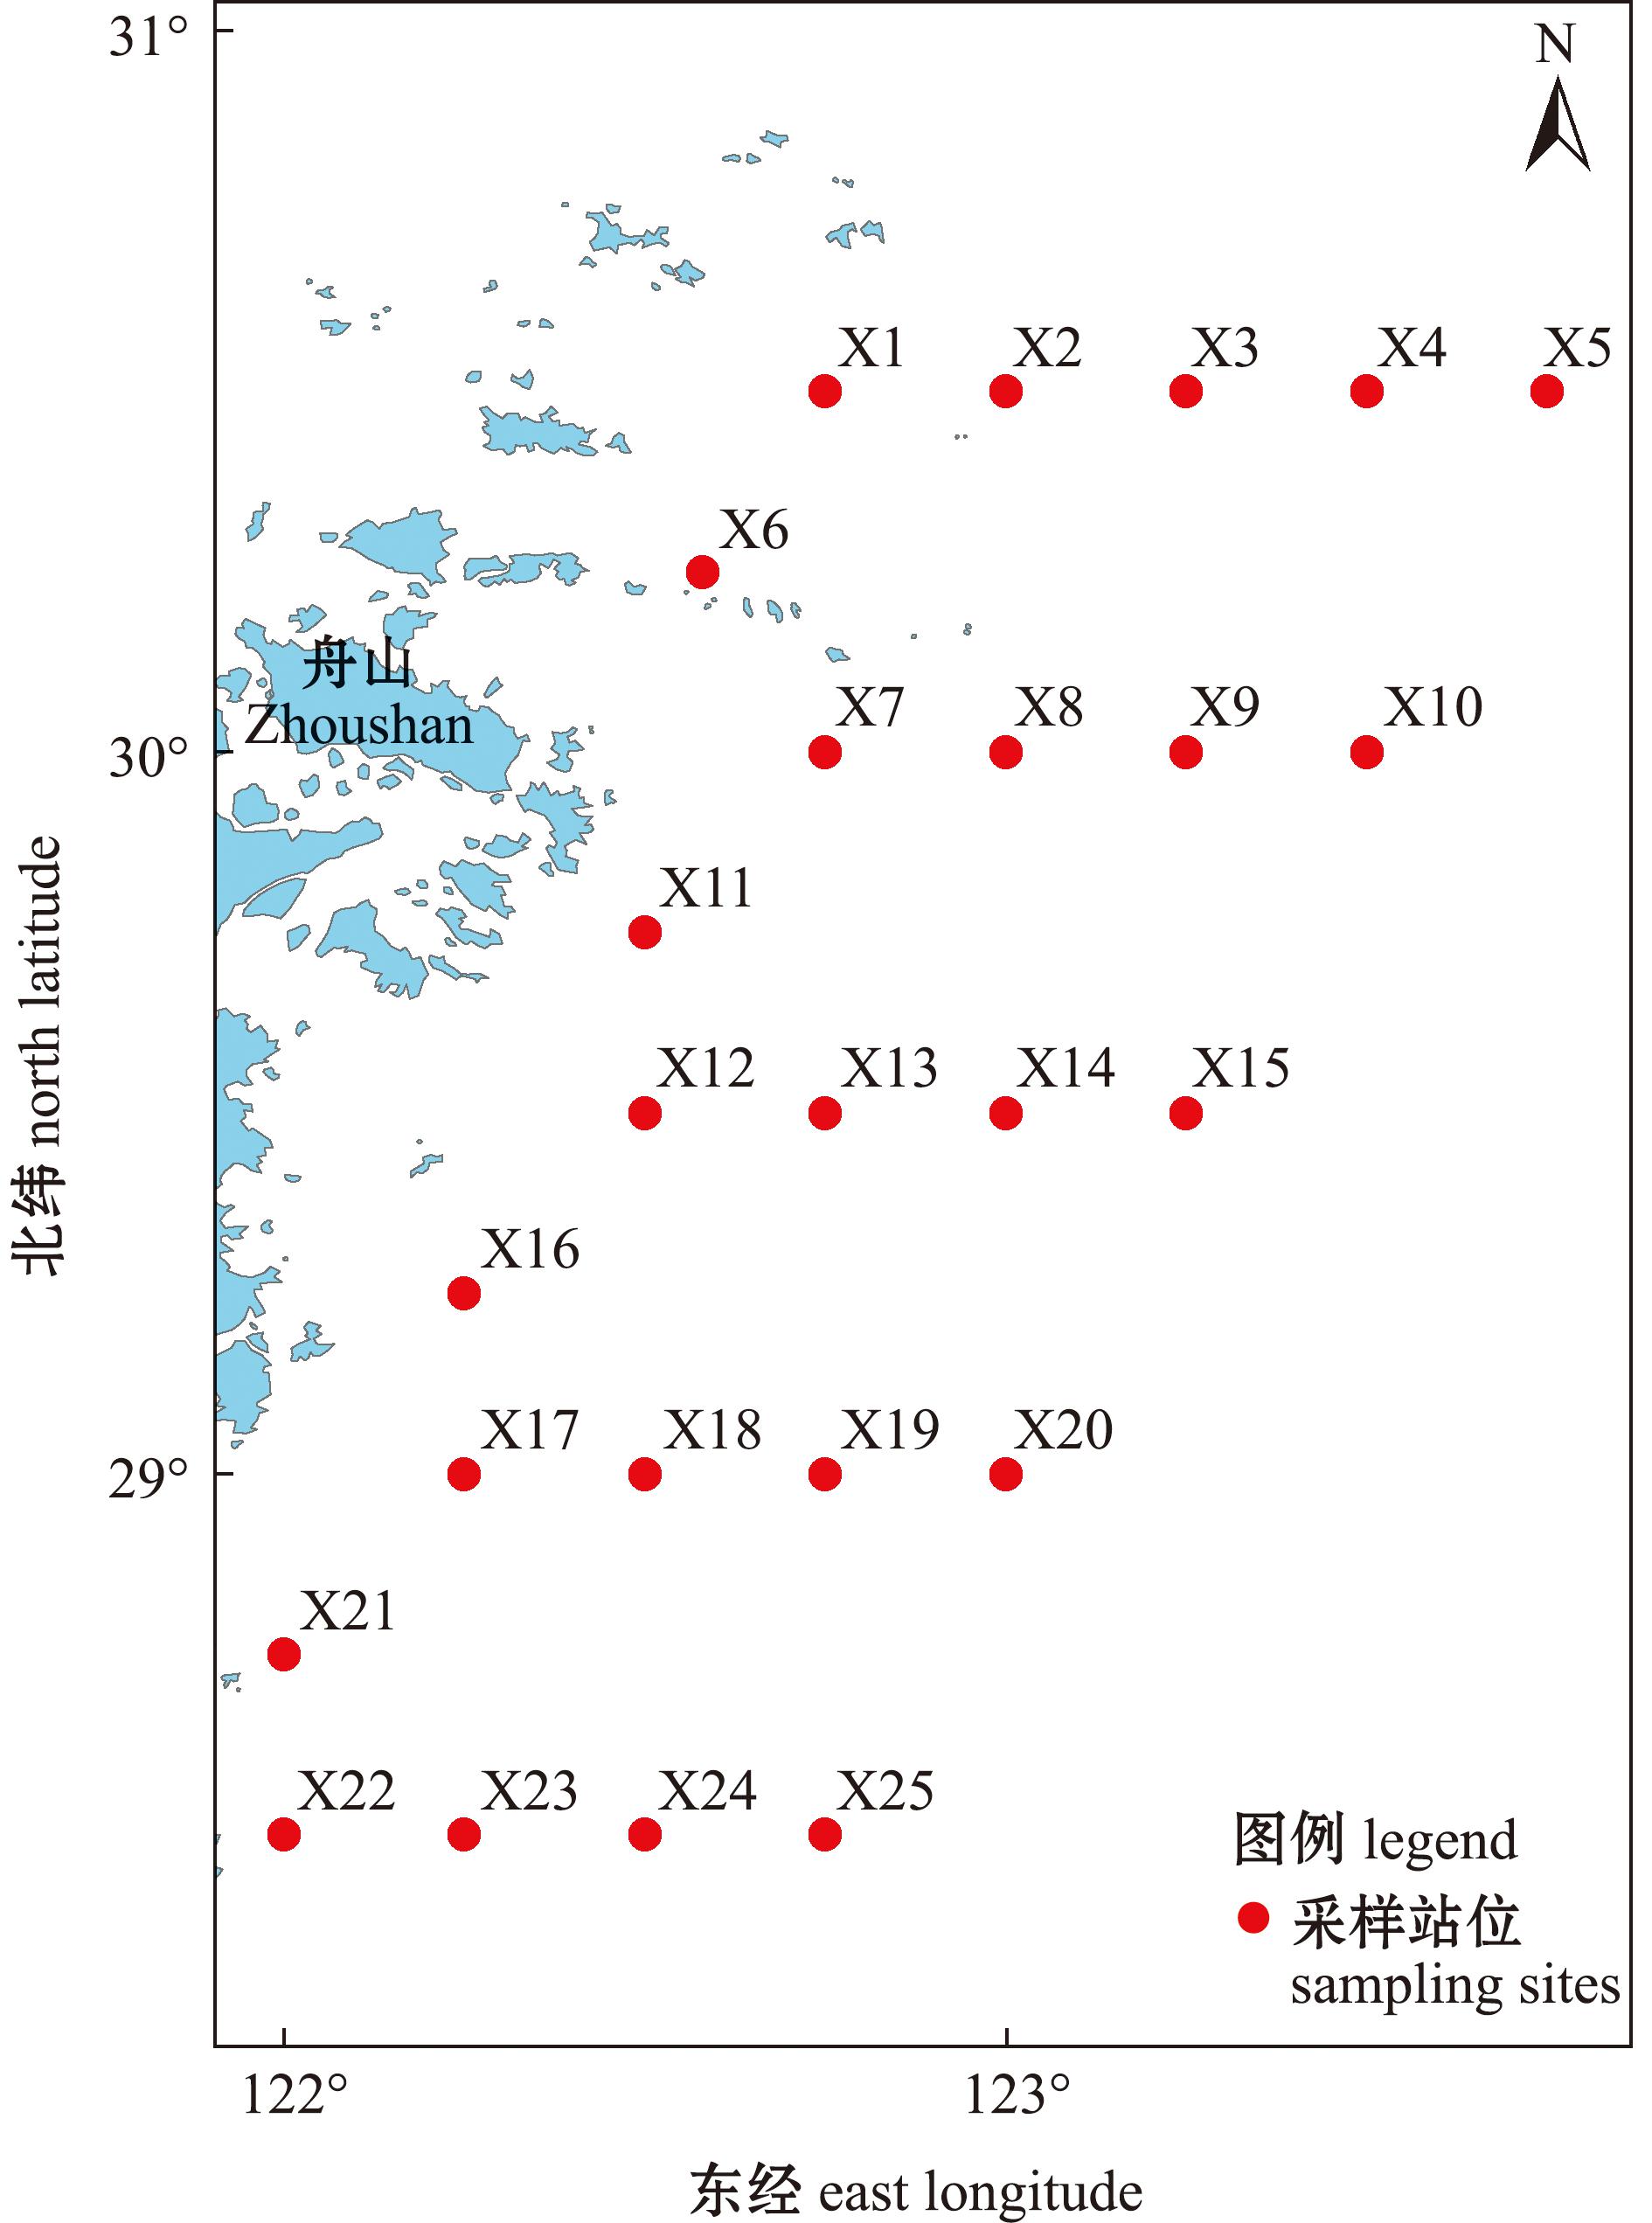
图1 带鱼保护区调查站位
Fig.1 Survey stations in Hairtail Reserves
1.2 方法
鉴于调查资料呈现“零值比例高”且非零生物量为连续右偏分布[25]的统计特征,本研究中采用两阶段广义加性模型(two-stage GAM)。第一阶段以二项分布[26]构建出现概率模型;第二阶段在出现站位的数据上采用Tweedie分布[27]模拟生物量梯度。传统基于泊松[28-29]或负二项分布[30-31]的GAM适用于离散计数数据,但难以同时处理“零值比例高”与“非零值为连续且右偏”的渔获分布特征。Tweedie能同时刻画大量零值与非负连续值[32-33],更契合渔业生物的分布特性。
1.3 数据处理
小黄鱼的生物量公式计算[34]为
D=C/(qA)。
(1)
式中:D为现存生物量(kg/km2);C为每小时取样面积内的渔获量(km2/h);q为网具渔获率,取0.5[35-36];A为网具每小时扫海面积(km2/h)。
建模前基于Pearson相关系数与VIF(|r|≥0.7、VIF>5为阈值)[32,37]对WD、SBS、SBT、Chl-a、lon、lat、year进行共线性检验,结果显示各变量均可保留[34];随后利用共曲率[38-40]诊断排除平滑项间潜在的非线性冗余。模型中将WD、SBT、SBS与Chl-a设为主效应,空间结构通过te(lon,lat)[41]描述,年份以s(year,bs="re")[42]作为随机效应引入。结合小黄鱼生活习性[35,43]和前期研究[14,34],以及小黄鱼对水团结构与饵料场的生态响应,重点考虑两个张量积平滑项[44-45]ti(SBT,WD)与ti(SBT,Chl-a),并依据AICC与诊断指标确定最终模型结构。由于春、秋两季环境因子均未经过筛除,故两阶段模型在不同季节下采用相同的全模型结构。全模型表达式为
全模型GAM1:
logit[P(Presence=1)]=s(WD)+s(SBT)+
s(SBS)+s(Chl-a)+te(lon,lat)+s(year)+
ti(SBT,WD)+ti(SBT,Chl-a)。
(2)
全模型GAM2:
g(Y)=s(WD)+s(SBT)+s(SBS)+s(Chl-a)+
te(lon,lat)+s(year)+ti(SBT,WD)+
ti(SBT,Chl-a)。
(3)
式中:s(WD)为水深效应;s(SBT)为底层温度效应;s(SBS)为底层盐度效应;s(Chl-a)为叶绿素a浓度效应;s(year)为年度效应;ti(SBT,WD)为水温和水深的交互效应;ti(SBT,Chl-a)为水温和叶绿素a的交互效应。将lon因子和lat因子转换为空间平滑项,使用薄板样条(TPS)纳入GAM模型,捕捉地理分布的非线性效应即te(lon,lat)。在模拟过程中,两阶模型都基于select=TRUE(EDF值)和P值进行变量选择,最终确定最优简化模型(以下简称“最优模型”)[46]。GAM模型及响应图使用R语言中的mgcv包和ggplot2包进行构建和绘制。
2 结果与分析
2.1 春、秋两季小黄鱼的时空分布
带鱼保护区小黄鱼春秋两季具有明显的空间分布特征。虽因海况原因一些站位调查数据较少,但2022—2024年春秋两季小黄鱼空间分布区域较广。春季小黄鱼在调查海域分布较分散;秋季高密度区主要分布于调查海域的东部,生物量呈东高西低的特点(图2和图3)。
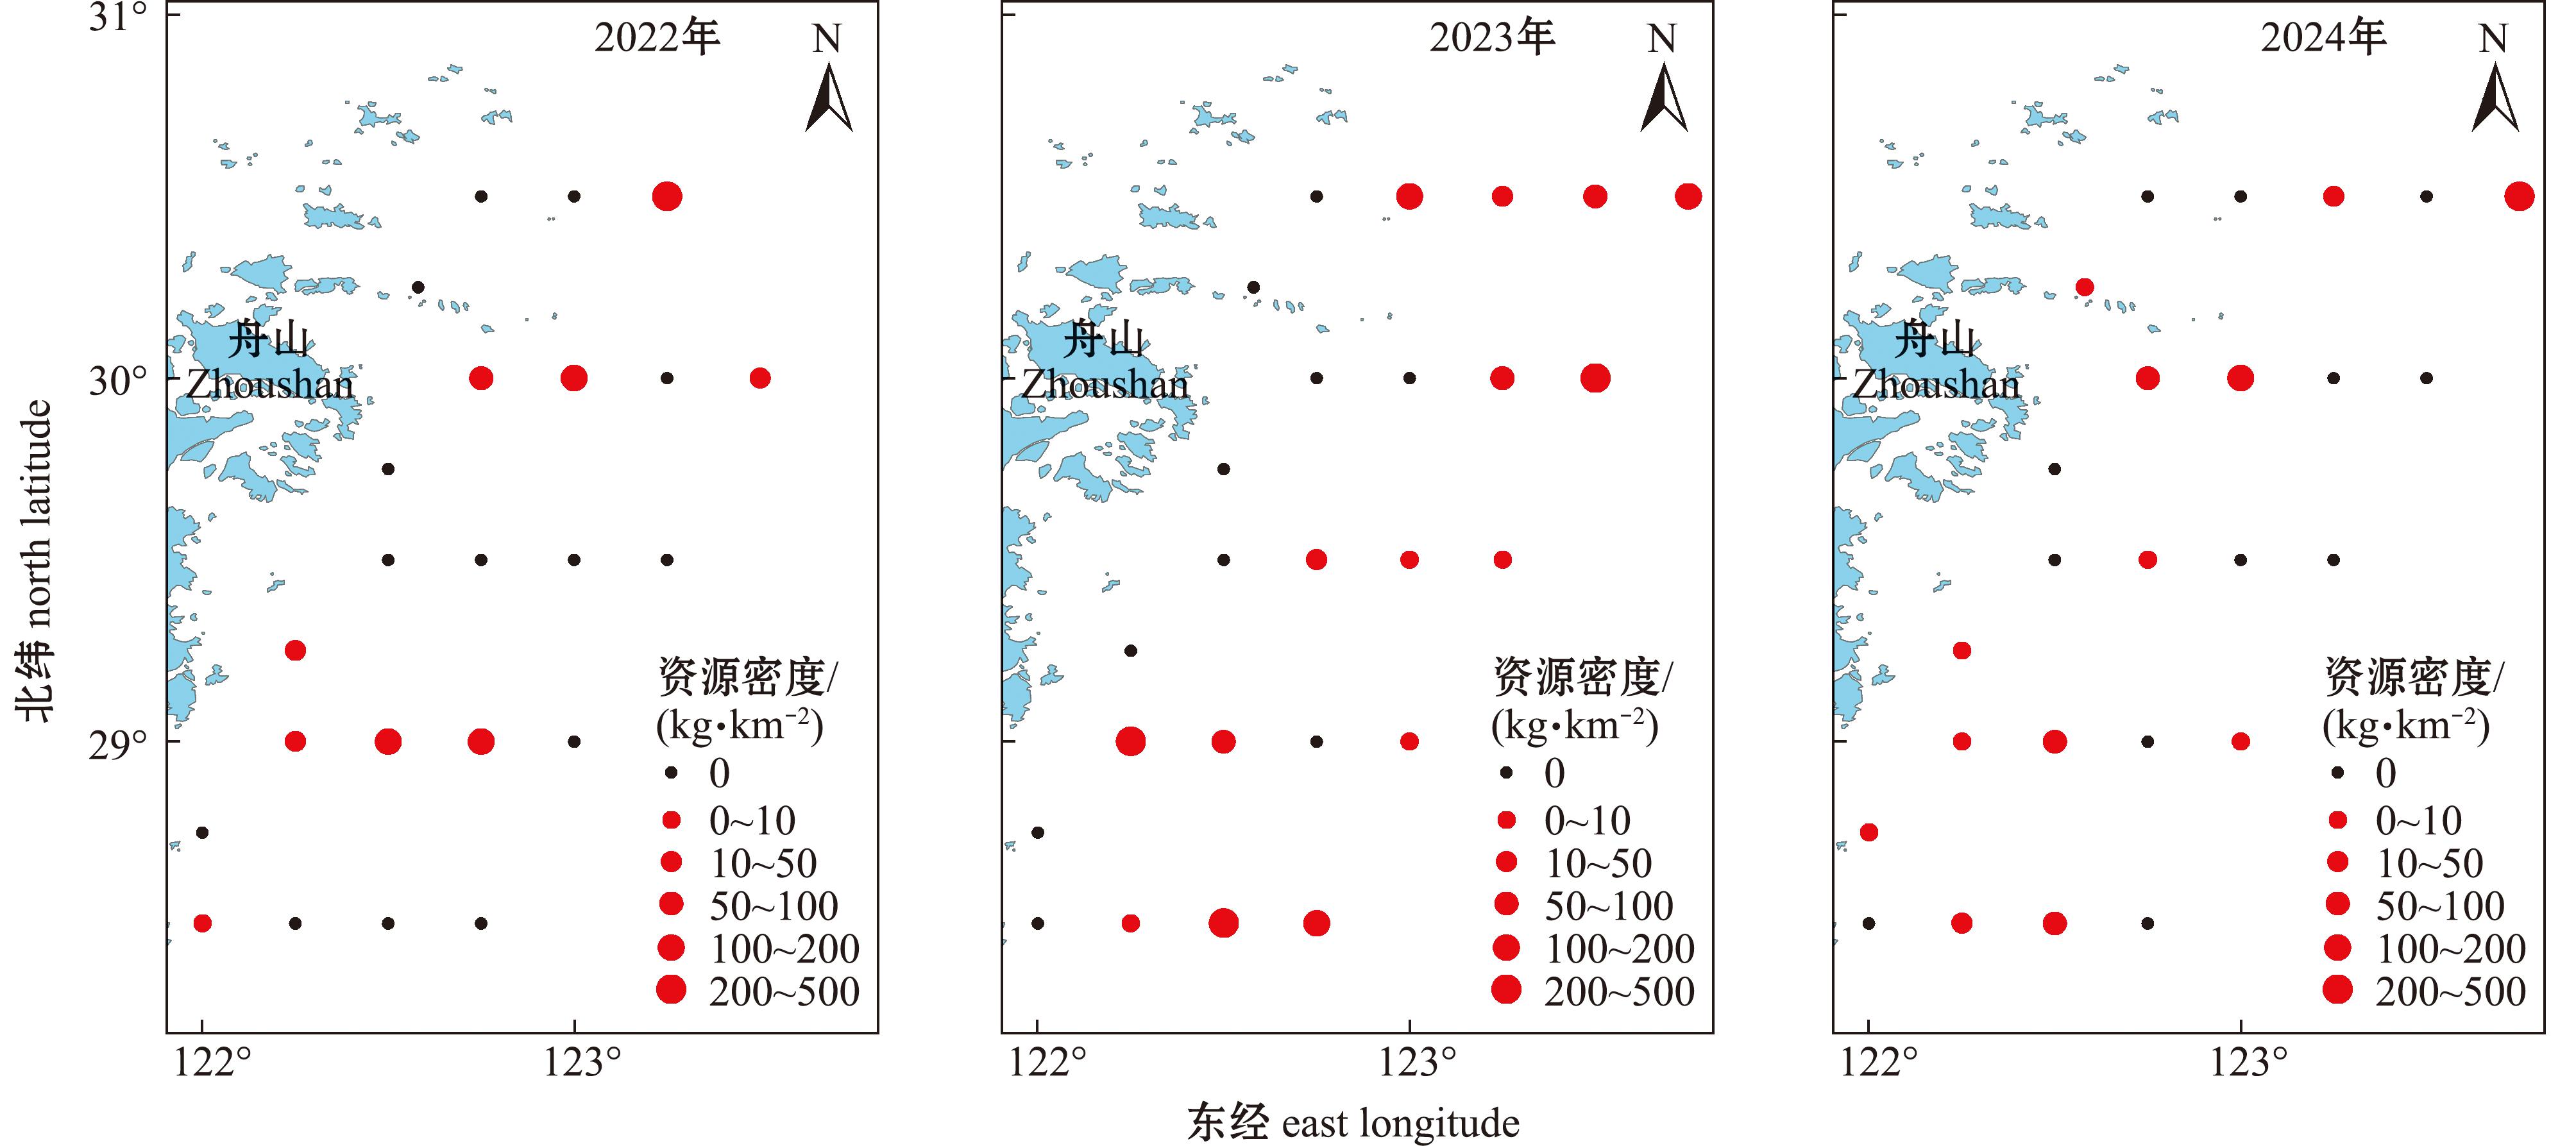
图2 2022—2024年春季带鱼保护区小黄鱼生物量时空分布
Fig.2 Spatial and temporal distribution of Larimichthys polyactis biomass in the spring of 2022—2024
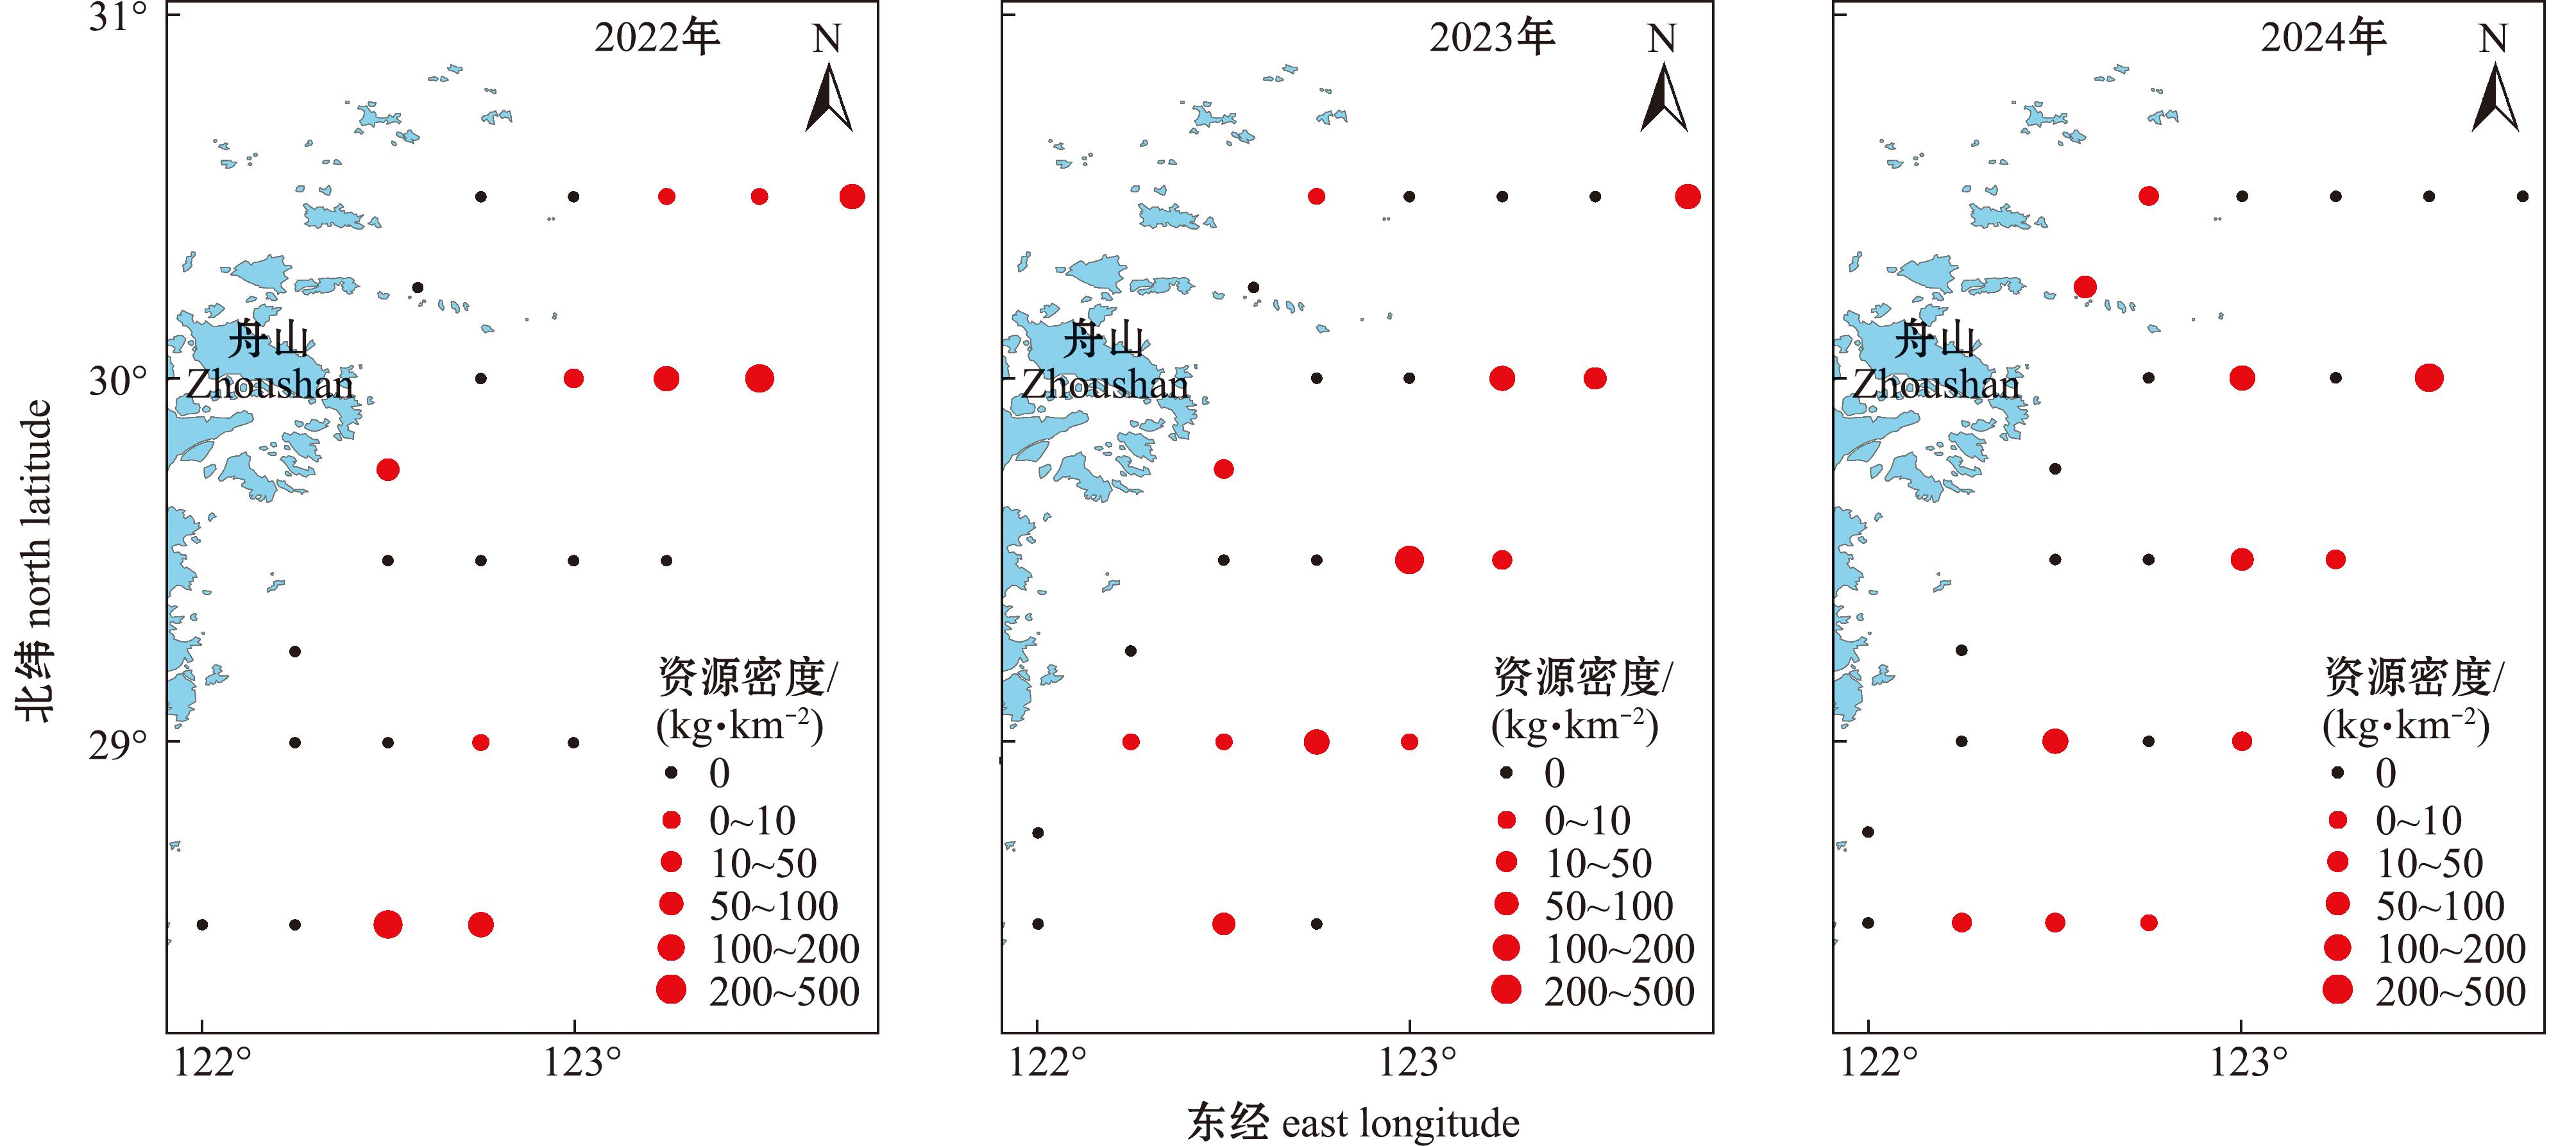
图3 2022—2024年秋季带鱼保护区小黄鱼生物量时空分布
Fig.3 Spatial and temporal distribution of Larimichthys polyactis biomass in the autumn of 2022—2024
2.2 春、秋两季不同因子对小黄鱼时空分布的影响
由模型选择结果可知,春季小黄鱼出现概率的最优模型为全模型,也就是水深、底层水温、底层盐度、叶绿素a、空间位置和年份效应,以及“水温×水深”和“水温×叶绿素a”的交互项构成小黄鱼的出现概率最优模型,在出现概率最优模型的参数分析中显示,“水温×水深”和“水温×叶绿素a”的交互项是其显著影响因子;而空间位置、叶绿素a含量和年份因子构成小黄鱼的生物量最优模型,在密度最优模型的参数分析中得出空间位置是显著影响因子。秋季,小黄鱼出现概率的最优模型由6个因子共同构成,分别是水深、底层水温、底层盐度、叶绿素a、空间位置和年份因子,其中水深是显著影响因子;而其生物量的最优模型则包含空间位置、叶绿素a含量和年份因子这3个因子。对密度最优模型的参数展开分析后发现,空间位置是其中具有显著影响的因子。
春季最优模型GAM1:
logit[P(Presence=1)]=s(WD)+s(SBT)+
s(SBS)+s(Chl-a)+te(lon,lat)+s(year)+
ti(SBT,WD)+ti(SBT,Chl-a)。
(4)
春季最优模型GAM2:
g(Y)=te(lon,lat)+s(Chl-a)+s(year)。
(5)
秋季最优模型GAM1:
logit[P(Presence=1)]=s(WD)+s(SBT)+
s(SBS)+s(Chl-a)+te(lon,lat)+s(year)。
(6)
秋季最优模型GAM2:
g(Y)=te(lon,lat)+s(Chl-a)+s(year)。
(7)
2.3 春季最优模型构成因子对小黄鱼时空分布的影响
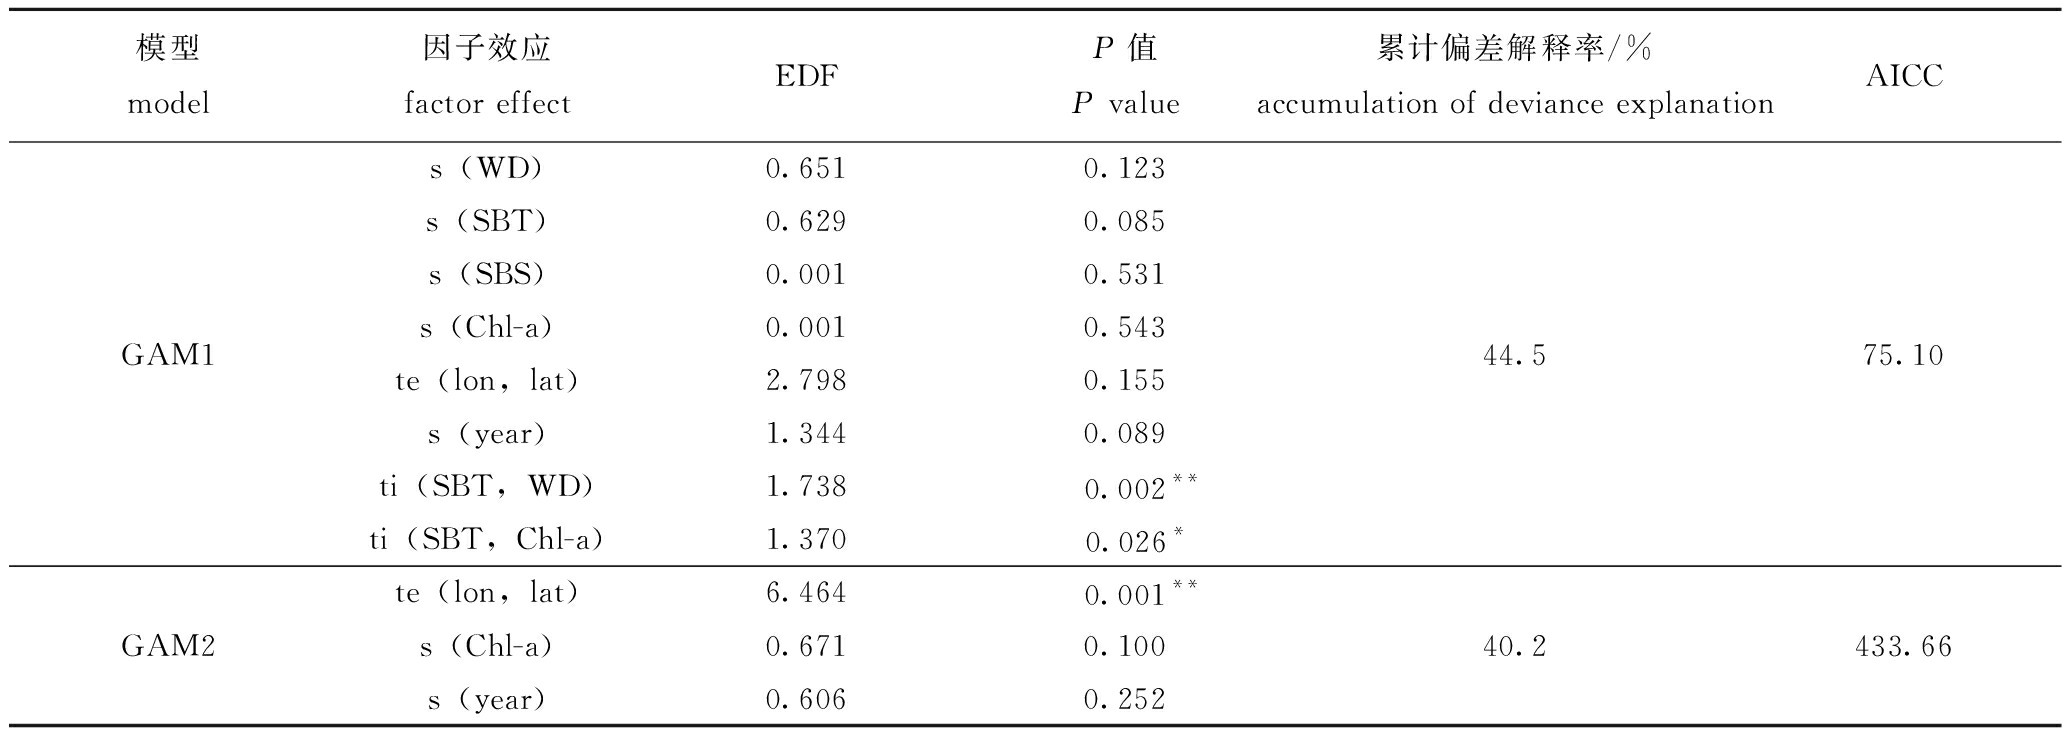
在春季,two-stage GAM 的最优模型表明,小黄鱼的出现概率对单一环境因子变化的响应整体并不显著(表1),而在水温与其他因子的交互中体现出更明显的偏好(表1与图4)。s(SBT)曲线显示,小黄鱼主要分布于13 ℃~18 ℃的底层水温范围内,随水温升高出现概率有上升趋势,但水温、水深和叶绿素a 3种环境因子的单独作用对整体的贡献有限。相反,ti(SBT,WD)和ti(SBT,Chl-a)两个交互项对整体的贡献显著(表1),可以看出小黄鱼更倾向于出现在较低水温13 ℃~15 ℃与水深10~20 m和50~70 m处,以及较高水温17 ℃~18.5 ℃与35~50 m处(图4),其栖息分布主要受水温、水深和叶绿素a的协同调控,而不仅是单一环境因子的线性作用。底层盐度和平面空间平滑项的效应相对较弱,仅在局部尺度上对出现概率产生一定修饰作用。
表1 春季GAM1和GAM2最优模型影响因子分析结果
Tab.1 Analysis of influencing factors for the optimal GAM1 and GAM2 models in spring
模型model因子效应factor effectEDFP值P value累计偏差解释率/%accumulation of deviance explanationAICCs(WD)0.6510.123s(SBT)0.6290.085s(SBS)0.0010.531GAM1s(Chl-a)0.0010.54344.575.10te(lon,lat)2.7980.155s(year)1.3440.089ti(SBT,WD)1.738 0.002**ti(SBT,Chl-a)1.370 0.026*te(lon,lat)6.464 0.001**GAM2s(Chl-a)0.6710.10040.2433.66s(year)0.6060.252
注:*表示P<0.05;**表示P<0.01,下同。Note:* means P<0.05;** means P<0.01,et sequentia.
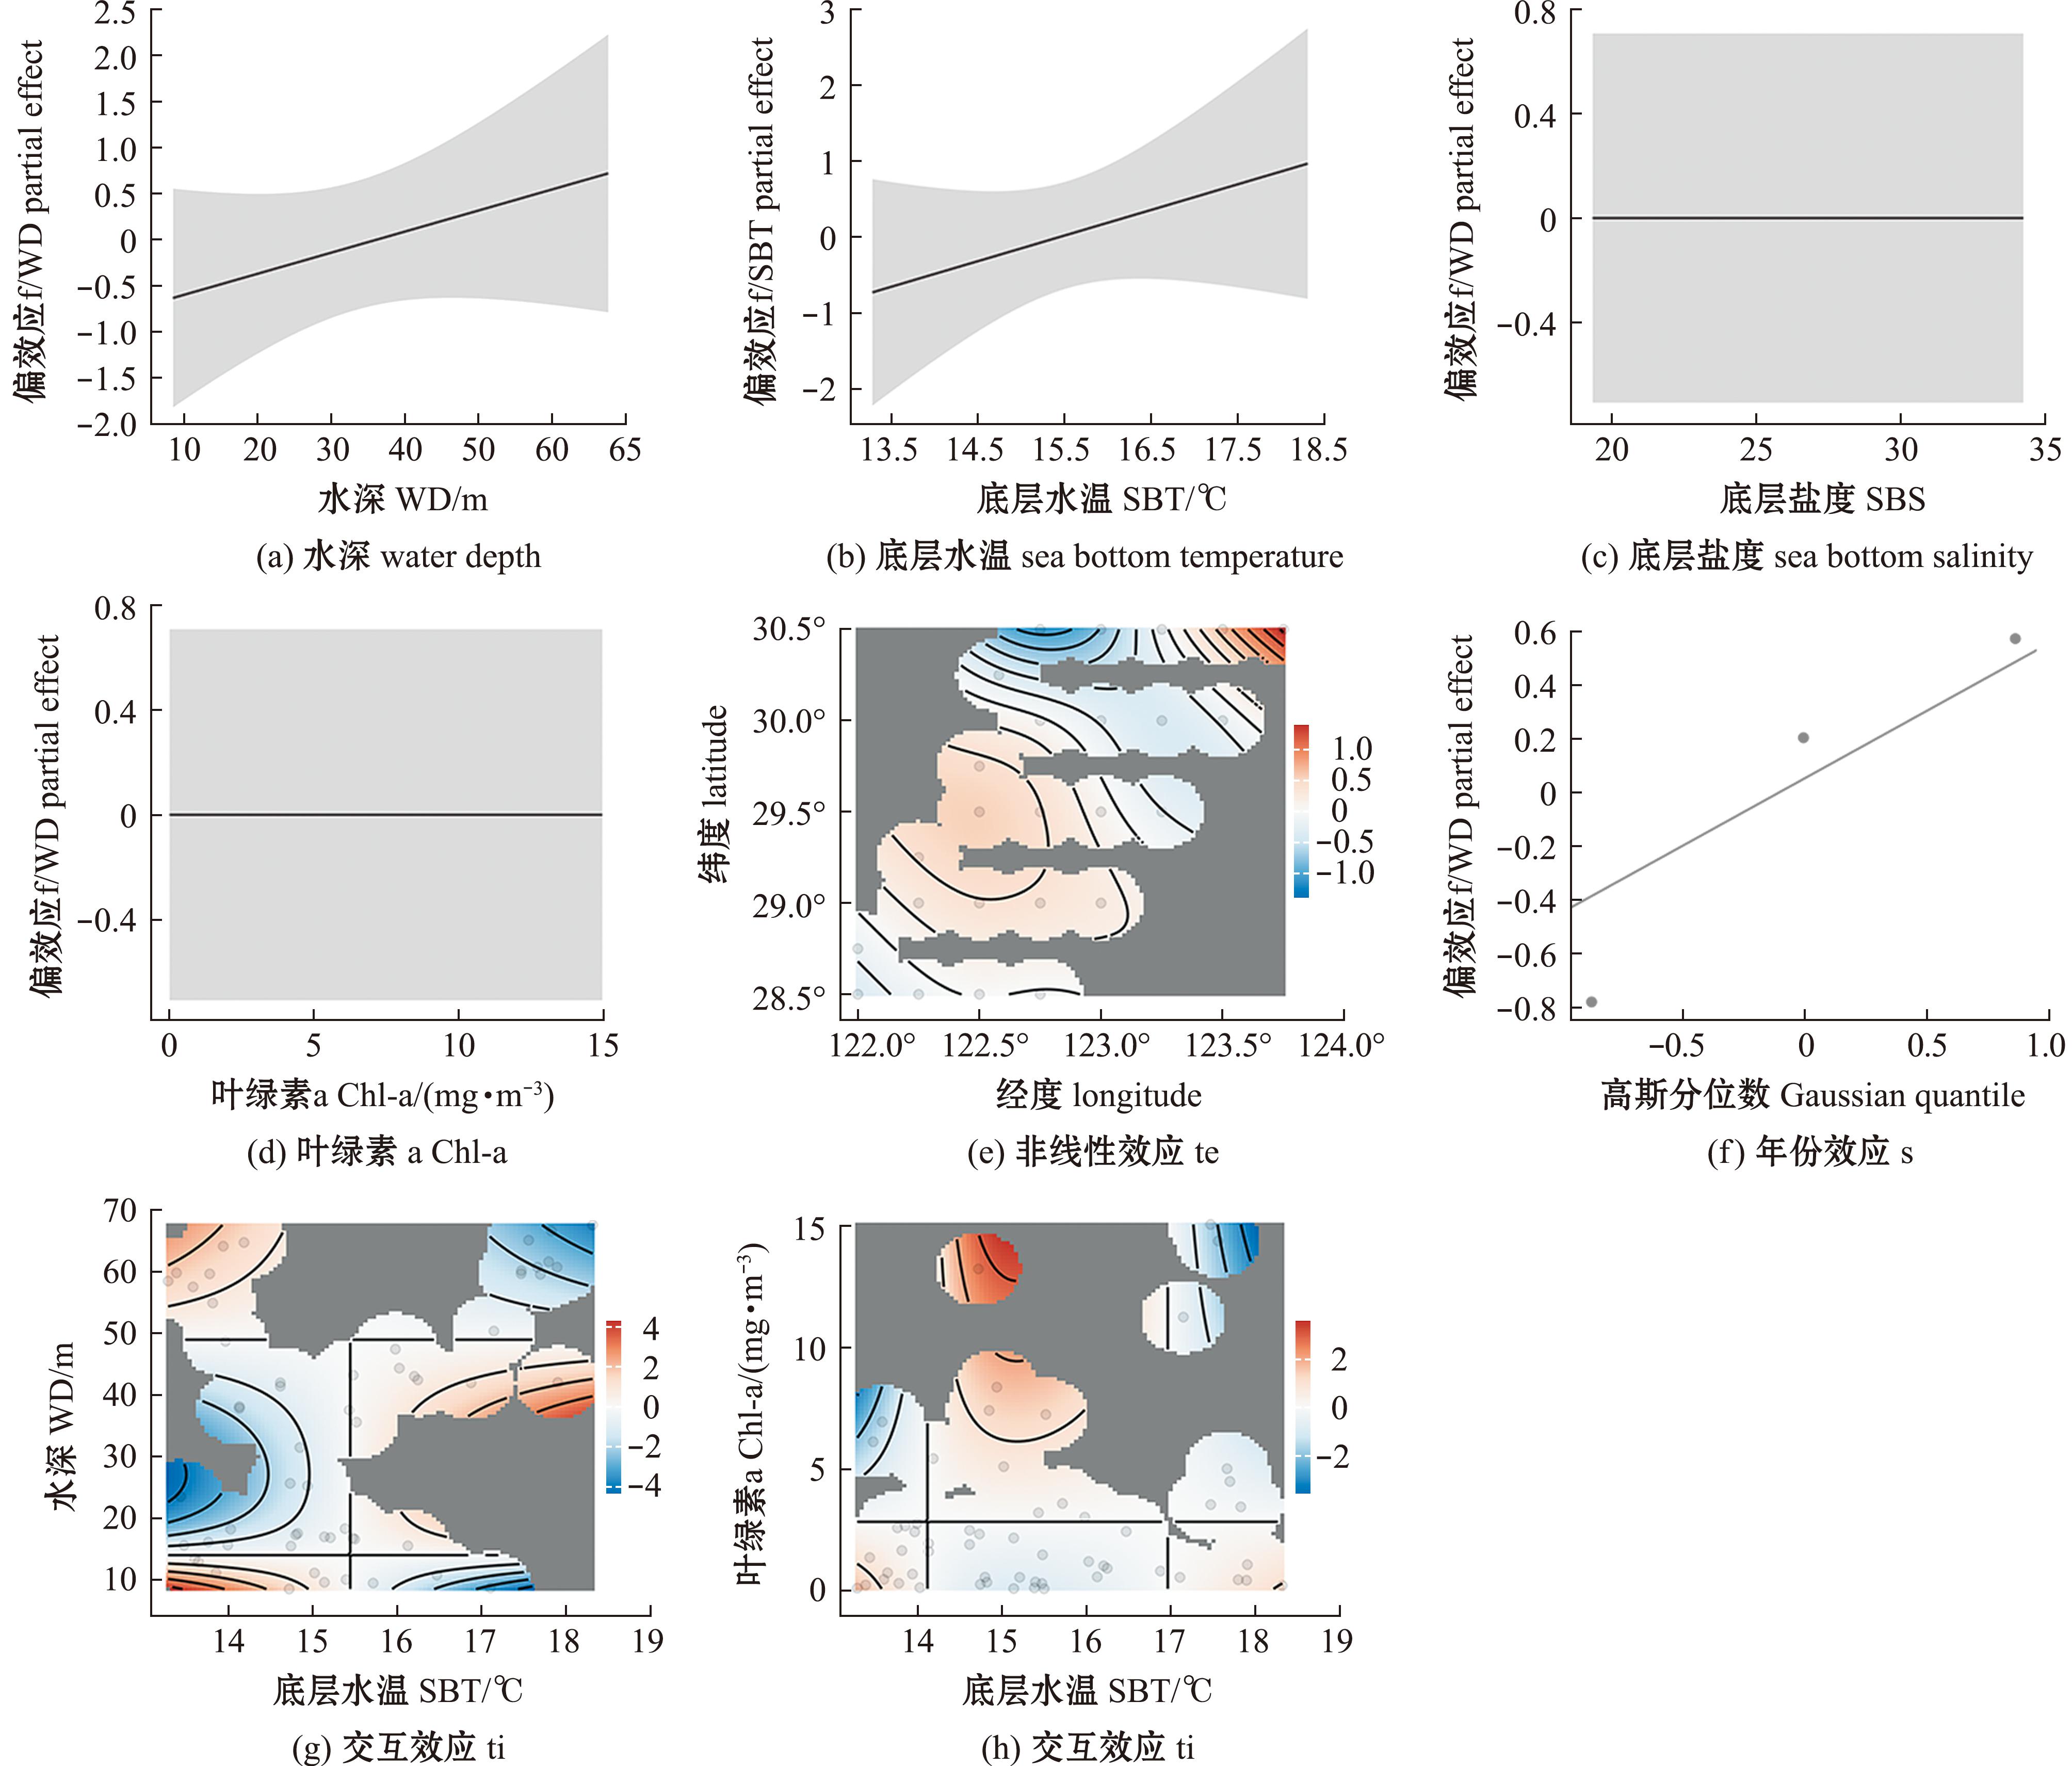
灰色区域代表置信区间;X轴上竖线为解释变量数据集的数据元素,下同。Grey area represents the confidence interval,and the vertical line on the X-axis represents the data elements of the explanatory variable dataset,et sequentia.
图4 GAM1春季最优模型中环境因子对小黄鱼出现概率的影响
Fig.4 Effects of environmental factors on the presence probability of Larimichthys polyactis in GAM1 spring optimal model
密度模型的AICC选择结果显示,在仅保留出现站位的前提下,最优结构只包括经纬度张量平滑te(lon,lat)、叶绿素a和年份因子,其中空间效应极显著,而叶绿素a与年份因子的平滑效应较弱。空间响应图表明(图5),小黄鱼春季生物量在调查海域存在明显的斑块性分布,一般在出现概率较高的东北部及部分西南—中部海域生物量较大,其余区域生物量相对较低,在GAM2模型使用的站位之间,春季小黄鱼密度主要由区域尺度的空间格局与局地栖息地差异驱动,水温和水深等因子对生物量的直接影响在模型运行下并不突出。
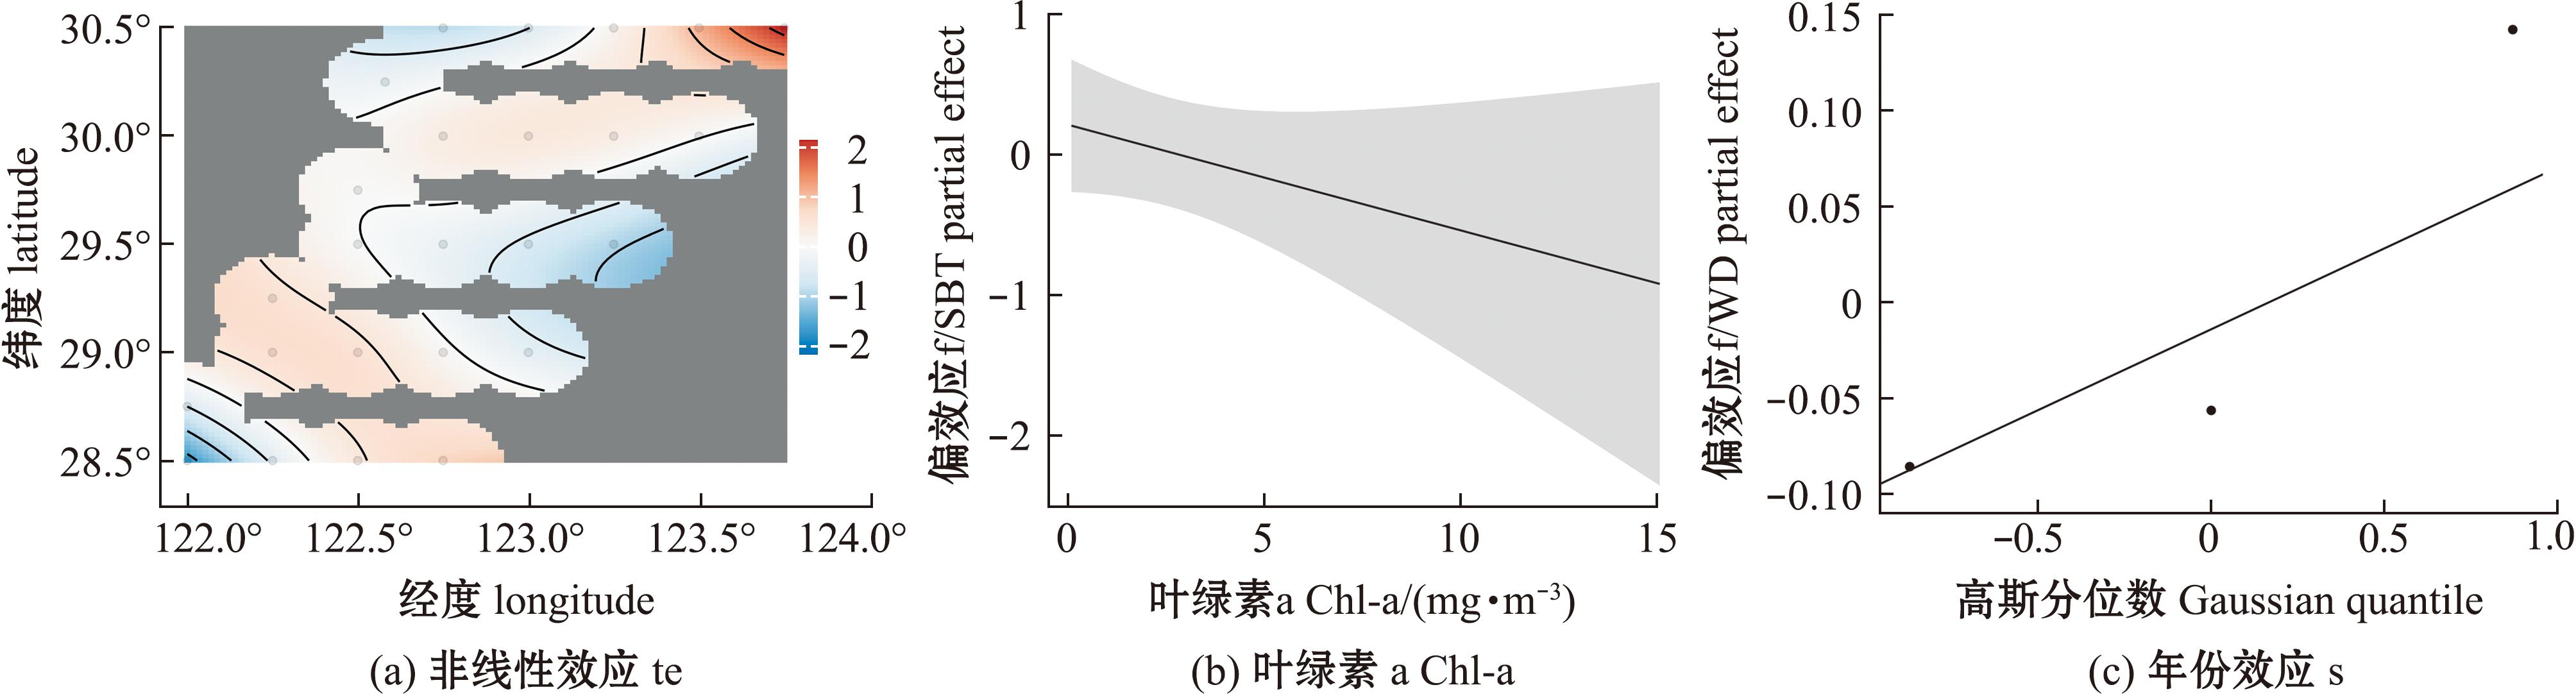
图5 GAM2春季最优模型中环境因子对小黄鱼生物量的影响
Fig.5 Effects of environmental factors on Larimichthys polyactis biomass in GAM2 spring optimal model
2.4 秋季最优模型构成因子对出现概率的影响
秋季,GAM1最优模型显示,水深因子对小黄鱼出现概率有显著影响(表2),小黄鱼更倾向于出现在水深25~60 m处,随水深加深出现概率有上升趋势(图6);GAM2显示,在排除密度为0情况下,叶绿素a和年份因子对小黄鱼密度影响较弱,只有空间位置是显著影响因子(表2),小黄鱼资源高密度区主要出现在调查海域东北部分(123°~123°42′ E,29°30′~30.5°30′ N)(图7)。
表2 秋季GAM1和GAM2最优模型影响因子 分析结果
Tab.2 Analysis of influencing factors for the optimal GAM1 and GAM2 models in autumn
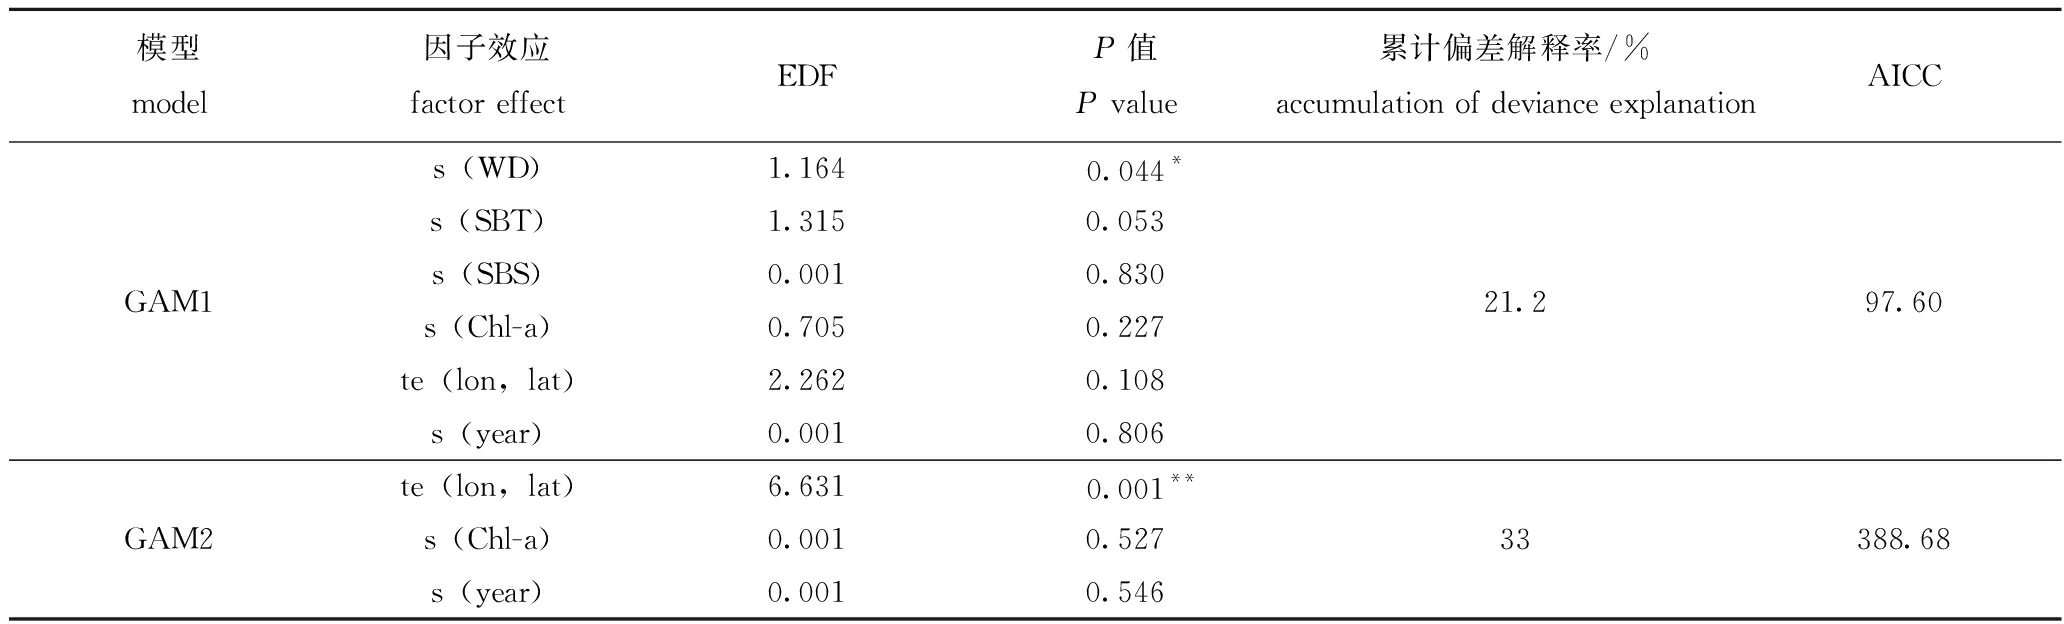
模型model因子效应factor effectEDFP值P value累计偏差解释率/%accumulation of deviance explanationAICCs(WD)1.164 0.044*s(SBT)1.3150.053GAM1s(SBS)0.0010.83021.297.60s(Chl-a)0.7050.227te(lon,lat)2.2620.108s(year)0.0010.806te(lon,lat)6.631 0.001**GAM2s(Chl-a)0.0010.52733388.68s(year)0.0010.546
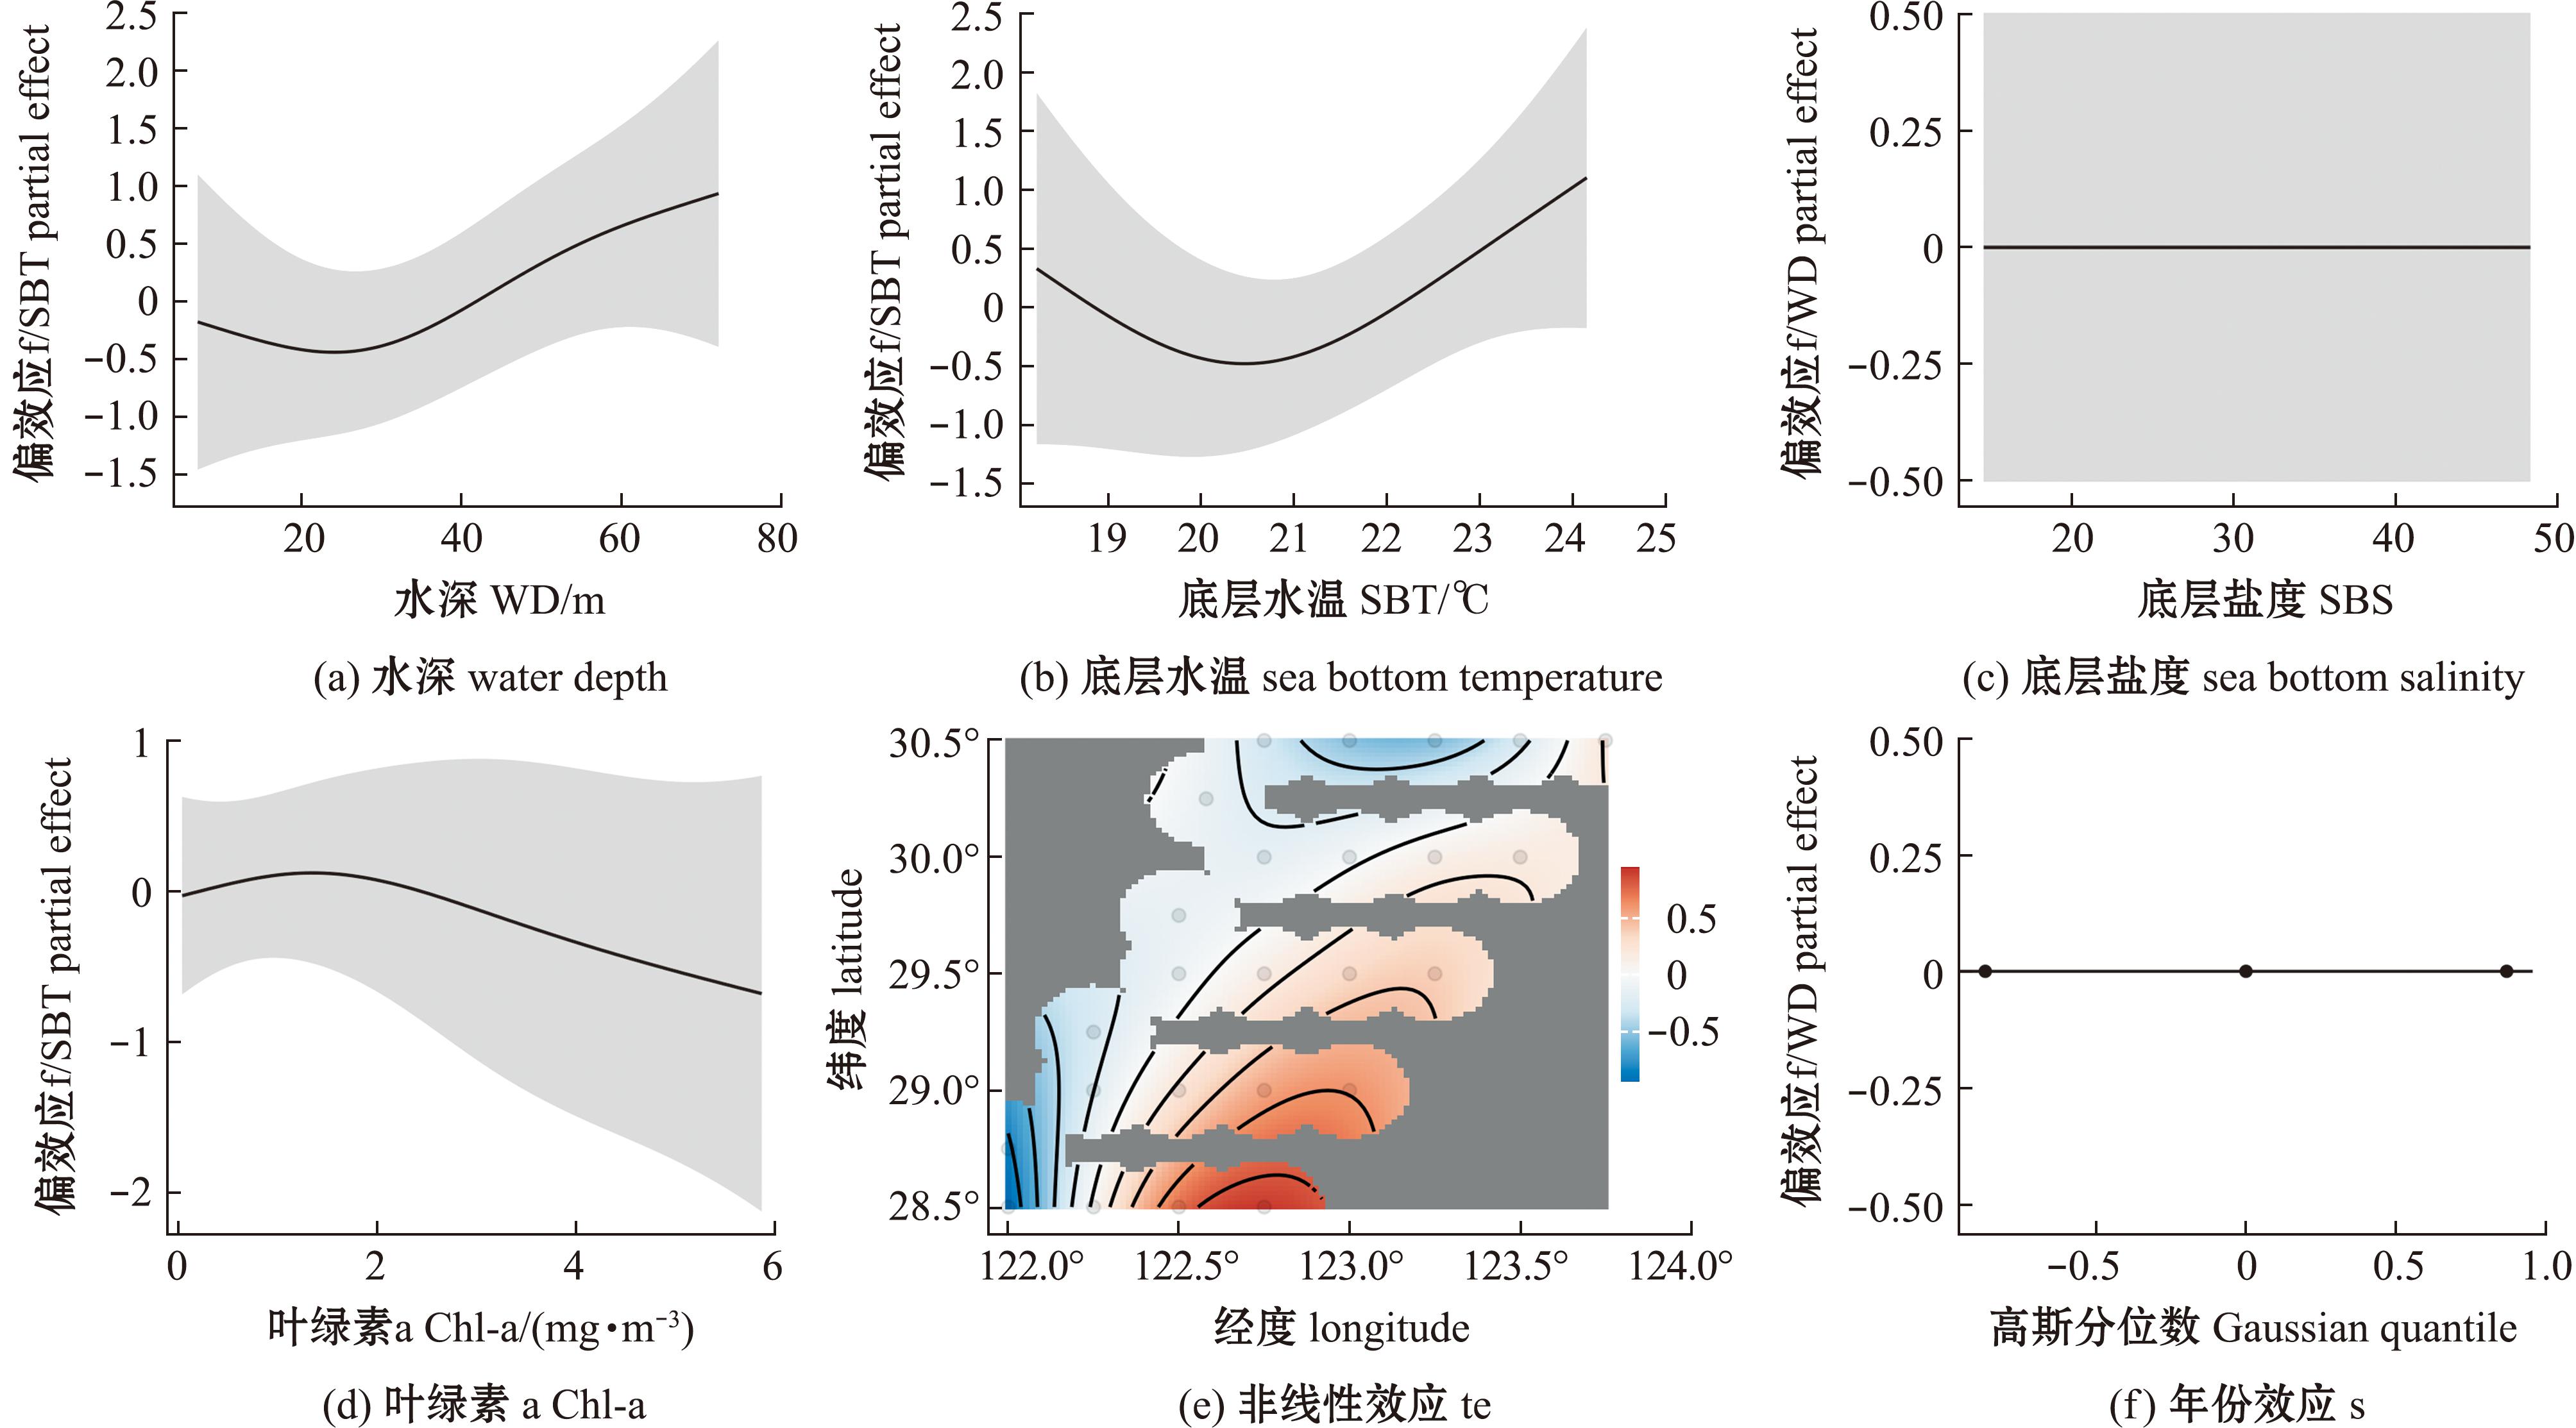
图6 GAM1秋季最优模型中环境因子对小黄鱼出现概率的影响
Fig.6 Effects of environmental factors on the occurrence probability of Larimichthys polyactis in GAM2 autumn optimal model
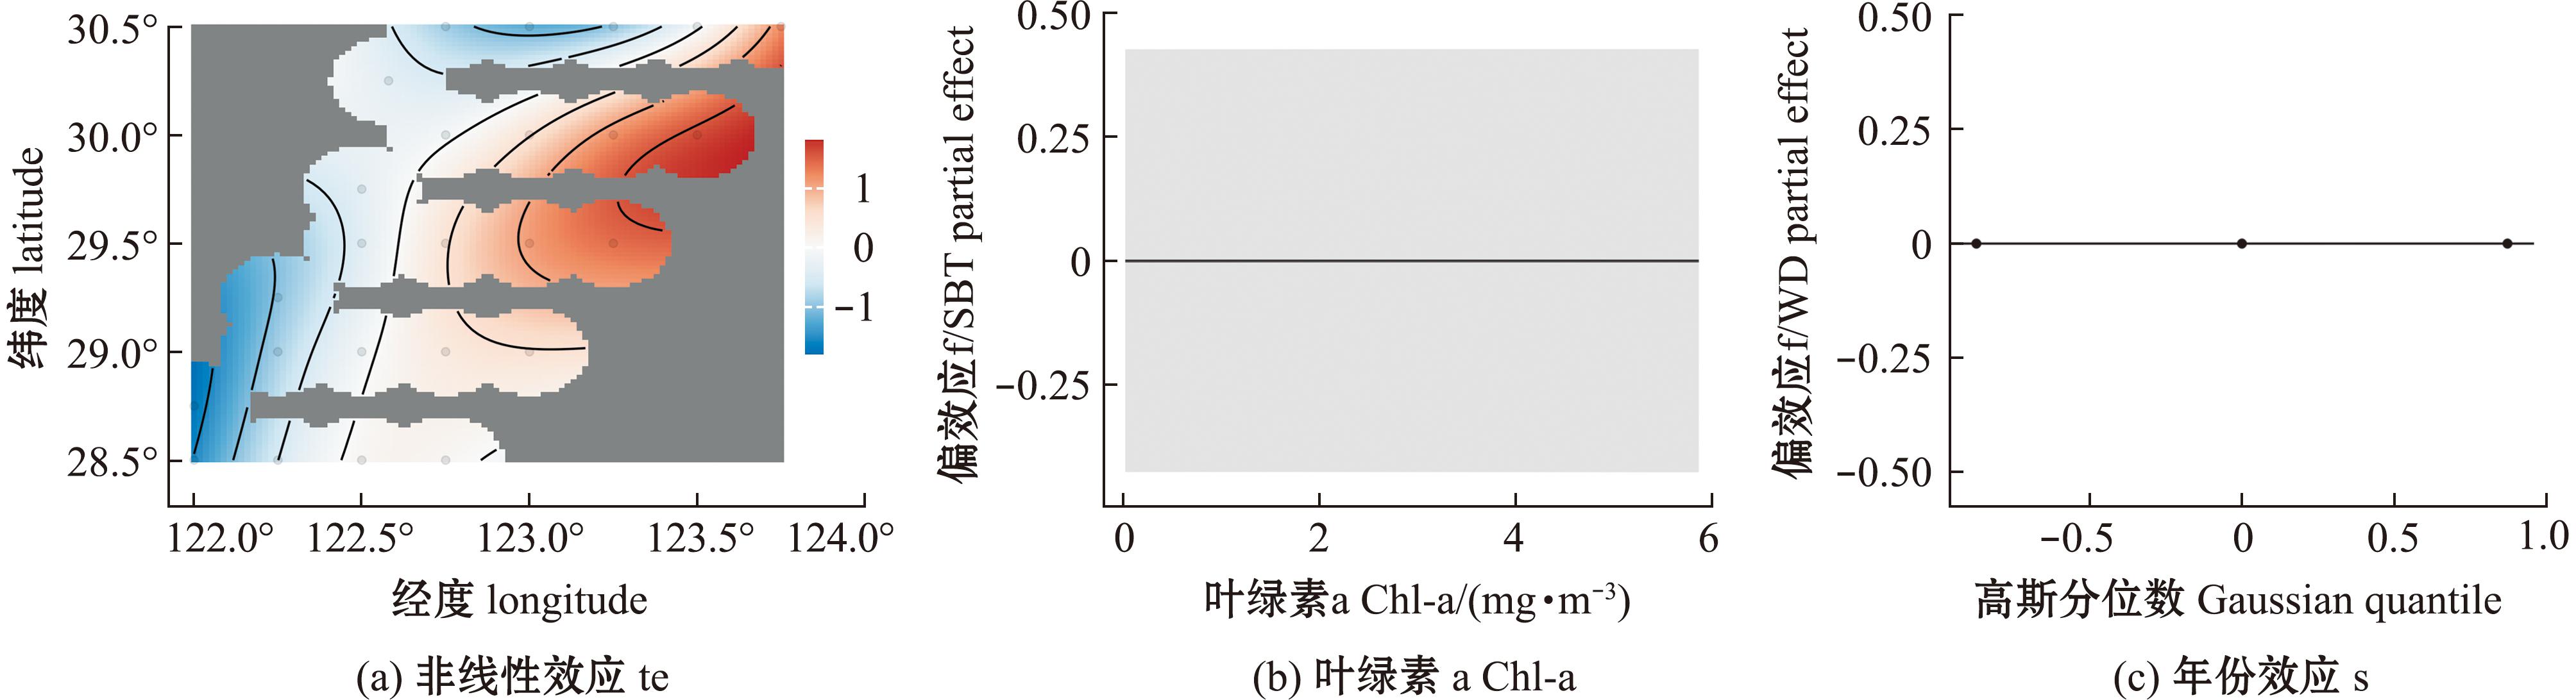
图7 GAM2秋季最优模型中环境因子对小黄鱼生物量的影响
Fig.7 Effects of environmental factors on Larimichthys polyactis biomass in GAM2 autumn optimal model
3 讨论
小黄鱼作为暖温性底层洄游鱼类,其时空分布格局是自身生理习性与环境因子长期协同适应的结果,且该适应过程在春秋季呈现显著差异化特征;需特别注意的是,各环境因子并非独立作用[47],而是通过复杂的关联效应共同调控小黄鱼分布,这为分析带鱼保护区海域的小黄鱼分布提供了途径[48]。基于Two-stage GAM的结果显示,小黄鱼在带鱼保护区的空间分布受多因子共同影响,但春、秋两季的主导因子并不相同。春季阶段,出现概率对水深与底层水温、水深与叶绿素a的交互项反应最为敏感,而在小黄鱼出现的前提下,生物量变化则主要体现为空间上的高低差异;秋季则表现为水深因子对小黄鱼出现概率仍具有一定的解释力,但生物量变化基本由空间因素影响。这表明,在带鱼保护区,春季小黄鱼将环境梯度作为重点栖息选择,秋季则明显受洄游路线和越冬迁移通道的约束,呈现“路径型”聚集格局。
3.1 春季环境因子对小黄鱼资源的影响
春季GAM1模型中,水温因子是影响小黄鱼是否出现的核心因素,虽然单独的水温项显著性不强,但是模型显示“水温×水深”和“水温×叶绿素a”的交互项的效应显著,说明小黄鱼在春季并不是简单选择“某个单一因子最优”的海域,而是偏好处于合适水温、一定水深和中等叶绿素a[49]水平叠加而成的海域,这与赵伟等[50]研究小黄鱼时空分布的结论相似,春季适宜的底层水温能够减少小黄鱼产卵前的能量消耗,也更利于鱼卵仔稚鱼的发育。另外,温度也会影响浮游动物的生长速度,从而影响小黄鱼的饵料供给情况。对于春季产卵期的小黄鱼来说,稳定且适温的水团意味着更低的代谢压力和更好的觅食条件,小黄鱼这种分布格局与带鱼保护区的理化环境特点密切相关。小黄鱼对叶绿素a(一定程度上代表了初级生产力)的偏好并非“数值越高越好”,而更接近于“适中而稳定”的初级生产力水平,这与朱海晨等[13]研究江苏近海夏季小黄鱼资源密度与栖息环境关系的结果不一致,可能是因为分析季节不同,夏季当年生幼体小黄鱼生长速度较快,摄食频率和强度较高,以维持自身的生长发育;而春季时小黄鱼生殖不仅需要饵料供应也需要稳定的环境。小黄鱼并不直接摄食浮游植物,而是主要依赖浮游动物和底栖生物[51-52],中等叶绿素a含量更有利于维持连续稳定的饵料供应,这与小黄鱼在生殖期既需要稳定水文条件,又依赖丰富饵料补充能量的生活史特征相一致[53]。春季GAM1模型虽未将水深判定为显著影响因子,但结合春季规律及小黄鱼生态需求,水深仍能通过调控水体温度梯度、盐度分层等理化参数间接作用于其分布,此外,水深对小黄鱼的影响还存在间接传导效应,如春季底层水温、叶绿素a等因子会随水深变化而改变,进而通过影响饵料生物群落结构,间接约束小黄鱼的空间分布。
在春季密度模型(GAM2)中,仅保留经纬度平滑项、叶绿素a和年份效应,其中空间效应最为突出,而叶绿素a含量和年份因子的贡献较小,说明在出现概率已被解释之后,生物量高低主要表现为空间区域间差异。结合图2、图5,可观察到高密度区相对集中在调查海域中西部及局部东北侧海域。这些区域受台湾暖流支流影响[54],存在一个流速较缓、流向偏东北的一个弱流区域[55],为底栖与底层鱼类提供了适宜的产卵和索饵场,此外,海礁渔场是小黄鱼重要的产卵场和索饵场,位于舟山渔场东北部,地形复杂,岛礁是幼鱼躲避敌害良好的栖息场所,因此研究区域东北部小黄鱼密度较高[34],从而成为春季小黄鱼相对稳定的高密度聚集带[56]。
3.2 秋季环境因子对小黄鱼资源的影响
与春季相比,秋季小黄鱼分布的水深依赖性更强。秋季GAM1模型中,水深因子是影响小黄鱼是否出现的核心因素,这与王雅丽等[34]研究结果相似,其平滑曲线显示在较浅水区(8~25 m)出现概率偏低,而在25~68 m随水深增加逐渐升高,这符合暖温性底层洄游鱼类的生活习性,但与李迎冬等[46]研究山东半岛南部海域小黄鱼时空分布的结果不同,他认为小黄鱼在夏季多集中分布于30 m以浅的水域,这可能与调查海域的海底深度及分析季节有关;而在秋季密度模型中,空间因子高度显著、其他环境因子的整体作用不强,说明秋季小黄鱼的生物量主要受地理位置影响,这与张虎等[53]对江苏南部海域小黄鱼的空间分布特征研究相似。图3和图7显示,秋季高密度区主要位于保护区东部及东北部,这与小黄鱼从沿岸向大沙渔场等越冬渔场[57]迁移的经典洄游路径高度吻合[5,58]。带鱼保护区东北部分处于小黄鱼向黄海暖流主轴的洄游路径上,水深较大[52],受黄海暖流及其分支水团影响显著[54,59],为越冬前群体集结和短期索饵提供了适宜的水文环境,因此成为秋季小黄鱼聚集的重要通道。
秋季模型中,底层水温、盐度及叶绿素a等因子整体不显著,但是并不意味着这些因子对生态过程完全无关,更可能是因为这些因素的变化幅度不大,它们能起到的影响作用,被更明显的空间相关因素所覆盖[60]。秋季海区温盐结构相对稳定、适宜范围在保护区内分布较广,小黄鱼对这些梯度的选择不像春季那样敏感。
3.3 Two-stage GAM模型的适用性
与单一GAM或GLM模型相比,Two-stage GAM模型的优势在于能更自然地处理“零值占比高、正值右偏”的渔业调查数据[50,61]。本研究中,第一阶段采用二项分布模型聚焦“出现/未出现”过程,第二阶段在出现站位上对正值部分使用Tweedie分布拟合生物量梯度,在保留非线性平滑和空间效应的同时,避免了在大量零值上强行拟合连续分布所带来的偏差。从结果看,春季出现概率模型的偏差解释率约为45%,密度模型约为40%;秋季分别约为21%和33%,与国内外类似海区的渔业生态建模研究相当[62],说明该方法能够较好地反映带鱼保护区内小黄鱼的生物状况。
4 结论
深入理解鱼类不同生活史阶段的分布模式是科学定制渔业资源保护方案的基础,保护区的管理以及调查站位设置等方面需采用科学的技术进行探究[43]。综合来看,小黄鱼春秋两季的分布差异本质上是其生命周期策略与环境因子动态匹配的结果。为实现这一目标,相关部门亟需加强以下几方面工作。
1)建议春季围绕环境梯度展开工作,重点关注水温与叶绿素a浓度交互效应的栖息海域,以及水温与水深的交互效应主导栖息地选择、空间因子决定密度热点,将符合该环境条件的海域重点保护,减少小黄鱼春季产卵的人为影响,保护区东北角海域受暖流影响成为小黄鱼高密度聚集区,中西部也有成为小黄鱼高密度区域的潜力,更要减少人为干预,加强保护。
2)秋季则聚焦“越冬洄游”,水深因子显著影响栖息地选择,空间因子因越冬场位置及洋流路径成为核心驱动,保护区东北部是小黄鱼的高密度聚集区,可引导渔民聚焦其他区域作业,减少对该海域的干扰,这种季节间的分布动态,既体现了小黄鱼对环境因子的适应性调整,也反映出海洋生态系统中生物与环境相互作用的复杂性与关联性。
3)在实际调查中,渔获数据存在的零值较多,在后续资源调查中应增设沿岸调查站点,以积累更多有效、完整的基础数据,进而提升研究结果的精确性。未来建议在本研究结果基础上追踪调查小黄鱼资源分布,为带鱼保护区的区域优化提供科学依据,明确在带鱼保护区管理中应重点关注的区域。
本研究中通过整合环境因子,对带鱼保护区海域春秋两季小黄鱼空间分布特征和资源密度规律进行了初步探讨并提出建议。结果表明,该保护区内小黄鱼群体的分布特征整体上与其洄游习性相符,建议带鱼保护区在后续小黄鱼资源保护中加强对东北部海域的管护,这有利于提高渔业资源恢复力和保护区的经济效益与保护价值。
[1] 孙毅.温度对小黄鱼早期生长发育和性别分化的影响[D].舟山:浙江海洋大学,2018.SUN Y.Effects oftemperature on early growth and sex differentiation in little yellow croaker[D].Zhoushan:Zhejiang Ocean University,2018.(in Chinese)
[2] 王宇馨,张心仪,陈艳,等.臭氧微纳米气泡耦合气调包装对冷藏小黄鱼的保鲜效果[J].中国食品学报,2025,25(11):285-295.WANG Y X,ZHANG X Y,CHEN Y,et al.Freshness-keeping effect of ozone micro-nano-bubbles coupled air conditioning package on small yellow croaker in cold storage[J].Journal of Chinese Institute of Food Science and Technology,2025,25(11):285-295.(in Chinese)
[3] 刘尊雷,谢汉阳,严利平,等.黄海南部和东海小黄鱼资源动态的比较[J].大连海洋大学学报,2013,28(6):627-632.LIU Z L,XIE H Y,YAN L P,et al.Comparative population dynamics of small yellow croaker Larimichthys polyactis in Southern Yellow Sea and East China Sea[J].Journal of Dalian Ocean University,2013,28(6):627-632.(in Chinese)
[4] 刘梦影,吕泽华,田思泉,等.应用栖息地适宜性指数研究温台渔场小黄鱼的空间分布特征[J].上海海洋大学学报,2020,29(1):92-101.LIU M Y,LÜ Z H,TIAN S Q,et al.Spatial distribution of Larimichthys polyactis in Wen-Tai fishing ground based on habitat suitability index[J].Journal of Shanghai Ocean University,2020,29(1):92-101.(in Chinese)
[5] 李子东,王燕平,仲霞铭,等.江苏海域小黄鱼时空分布及生物学特征研究[J].海洋渔业,2023,45(1):73-85.LI Z D,WANG Y P,ZHONG X M,et al.Spatio-temporal and spatial distribution and biological characteristics of Larimichthys polyactis in Jiangsu sea area[J].Marine Fisheries,2023,45(1):73-85.(in Chinese)
[6] 汪振华,沈慧,林军,等.马鞍列岛东部海域小黄鱼时空分布特征[J].水产学报,2022,46(6):959-972.WANG Z H,SHEN H,LIN J,et al.Spatial and temporal distribution of small yellow croaker(Larimichthys polyactis) in Eastern Ma’an Archipelago[J].Journal of Fisheries of China,2022,46(6):959-972.(in Chinese)
[7] WANG Y F,MA C Y,SONG X J,et al.Assessment of fish diversity in the East China Sea hairtail national aquatic germplasm resources conservation zone using DNA barcoding[J].Global Ecology and Conservation,2024,53:e03013.
[8] 胡翠林,张洪亮,张亚洲,等.带鱼保护区春秋季鱼类群落特征及与环境因子的关系[J].水产学报,2018,42(5):694-703.HU C L,ZHANG H L,ZHANG Y Z,et al.Fish community structure and its relationship with environmental factors in the Nature Reserve of Trichiurus japonicus[J].Journal of Fisheries of China,2018,42(5):694-703.(in Chinese)
[9] KANG J H,PARK J Y,KIM E M,et al.Population genetic analysis and origin discrimination of snow crab (Chionoecetes opilio) using microsatellite markers[J].Molecular Biology Reports,2013,40(10):5563-5571.
[10] 林龙山.东海区小黄鱼现存资源量分析[J].海洋渔业,2004,26(1):18-23.LIN L S.Analysis on extant abundance of small yellow croaker Pseudosciaena polyactis in the East China Sea[J].Marine Fisheries,2004,26(1):18-23.(in Chinese)
[11] 严利平,刘尊雷,张辉,等.小黄鱼生物学特征与资源数量的演变[J].海洋渔业,2014,36(6):481-488.YAN L P,LIU Z L,ZHANG H,et al.On the evolution of biological characteristics and resources of small yellow croaker[J].Marine Fisheries,2014,36(6):481-488.(in Chinese)
[12] 李建生,凌建忠,胡芬.长江口近岸水域小黄鱼仔稚鱼时空分布和生长特征[J].海洋渔业,2018,40(4):404-412.LI J S,LING J Z,HU F.Temporal and spatial distribution and growth characteristics of Larimichthys polyactis larvae and juveniles in the coastal waters of the Yangtze River Estuary[J].Marine Fisheries,2018,40(4):404-412.(in Chinese)
[13] 朱海晨,汤建华,吴磊,等.江苏近海夏季小黄鱼资源密度与栖息环境关系探讨[J].应用生态学报,2024,35(10):2881-2886.ZHU H C,TANG J H,WU L,et al.Relationship between the resource density of Larimichthys polyactis and the habitat environment factors in summer in Jiangsu coastal waters,China[J].Chinese Journal of Applied Ecology,2024,35(10):2881-2886.(in Chinese)
[14] 戴黎斌,田思泉,彭欣,等.浙江南部近海小黄鱼资源分布及其与环境因子的关系[J].应用生态学报,2018,29(4):1352-1358.DAI L B,TIAN S Q,PENG X,et al.Distribution of Larimichthys polyactis and its relationship with environmental factors in offshore water of southern Zhejiang[J].Chinese Journal of Applied Ecology,2018,29(4):1352-1358.(in Chinese)
[15] YI N Z,XIA Y,ZHANG C,et al.Combined effects of fishing and environment on the growth of Larimichthys polyactis in coastal regions of China[J].Fishes,2024,9(9):367.
[16] 张雯.可持续发展视角下海洋渔业资源养护的法律保障机制研究[J].黑龙江水产,2025,44(4):477-481.ZHANG W.Legalsafeguard mechanisms for fishery resource conservation from the per-spective of sustainable development[J].Heilongjiang Fisheries,2025,44(4):477-481.(in Chinese)
[17] ZHANG X,LIU C,LIU Y X,et al.An analysis of the impacts of meteorological factors on ozone concentration using generalized additive model in Tianjin,China[J].Journal of Atmospheric and Solar-Terrestrial Physics,2025,277:106669.
[18] 陈文龙,依里帆·艾克拜尔江,张雨思,等.环境因子与新疆野苹果幼苗生长和存活的相关性分析[J].广西植物,2026,46(1):86-97.CHEN W L, AKBERJAN ERFAN,ZHANG Y S,et al.Correlation analysis of environmental factors with the growth and survival of Malus sieversii seedlings[J].Guihaia,2026,46(1):86-97.(in Chinese)
[19] VENABLES W N,DICHMONT C M.GLMs,GAMs and GLMMs:an overview of theory for applications in fisheries research[J].Fisheries Research,2004,70(2/3):319-337.
[20] 闫敏,张衡,伍玉梅,等.基于GAM模型研究时空及环境因子对南太平洋长鳍金枪鱼渔场的影响[J].大连海洋大学学报,2015,30(6):681-685.YAN M,ZHANG H,WU Y M,et al.Effects of spatio-temporal and environmental factors on fishing grounds of albacore tuna Thunnus alalunga in the South Pacific Ocean based on generalized additive model[J].Journal of Dalian Ocean University,2015,30(6):681-685.(in Chinese)
[21] 刘月,陈新军,汪金涛.基于GAM和BRT模型的不同渔汛期水温垂直结构对西北太平洋柔鱼CPUE的影响[J].大连海洋大学学报,2023,38(6):1063-1071.LIU Y,CHEN X J,WANG J T.Impact of vertical structure of water temperature during different fishing seasons on CPUE of Neon flying squid (Ommastrephes bartramii) in the Northwest Pacific Ocean using GAM and BRT models[J].Journal of Dalian Ocean University,2023,38(6):1063-1071.(in Chinese)
[22] 王雅丽.舟山渔场产卵场保护区及邻近海域小黄鱼生物生态学特征与资源分布[D].舟山:浙江海洋大学,2022.WANG Y L.Biological and ecological characteristics and resource distribution of Larimichthys polyactis in Zhoushan fishery spawning ground reserve and adjacent sea areas[D].Zhoushan:Zhejiang Ocean University,2022.(in Chinese)
[23] 李凡,李显森,赵宪勇.底拖网调查数据的Delta-模型分析及其在黄海小黄鱼和银鲳资源评估中的应用[J].水产学报,2008,32(1):145-151.LI F,LI X S,ZHAO X Y.Bottom trawl survey data analysis based on Delta-distribution model and its application in the estimation of small yellow croak and silver pomfret in Yellow Sea[J].Journal of Fisheries of China,2008,32(1):145-151.(in Chinese)
[24] 中华人民共和国农业农村部.海洋渔业资源调查规范:SC/T 9403—2012[S].北京:中国农业出版社,2013.Ministry of Agriculture and Rural Affairs of the People’s Republic of China.Technical specification for marine fishery resources survey:SC/T 9403—2012[S].Beijing:China Agriculture Press,2013.(in Chinese)
[25] 马文玉, 郜允兵, 赵亚楠, 等.2000—2021年农田大气镉沉降通量时空变化及影响因素[J].环境工程学报,2026,20(1): 177-189.MA W Y, GAO Y B, ZHAO Y N, et al.Spatio-temporal variation and influencing factors of atmospheric cadmium deposition flux in farmland from 2000 to 2021[J].Chinese Journal of Environmental Engineering,2026,20(1): 177-189.(in Chinese)
[26] 刘乐超,王文博,杨庆宇.基于广义相加模型(GAM)的虎生境适宜性评估[J].云南地理环境研究,2025,37(4):58-69.LIU L C,WANG W B,YANG Q Y.Assessment of tiger habitat suitability based on the generalized additive model(GAM)[J].Yunnan Geographic Environment Research,2025,37(4):58-69.(in Chinese)
[27] 张云雷,徐宾铎,张崇良,等.基于Tweedie-GAM模型研究海州湾小黄鱼资源丰度与栖息环境的关系[J].海洋学报,2019,41(12):78-89.ZHANG Y L,XU B D,ZHANG C L,et al.Relationship between the habitat factors and the abundance of small yellow croaker(Larimichthys polyactis) in Haizhou Bay based on the Tweedie-GAM model[J].Haiyang Xuebao,2019,41(12):78-89.(in Chinese)
[28] 余纯,黄丹.基于均值漂移惩罚的混合泊松回归模型的离群值检测与稳健推断[J].统计与决策,2025,41(11):55-61.YU C,HUANG D.Outlierdetection and robust inference of mixture poisson regression models based on mean-shift penalization[J].Statistics and Decision,2025,41(11):55-61.(in Chinese)
[29] 杨丹.敏感性问题的调查设计及基于零膨胀泊松模型的统计推断[D].重庆:重庆理工大学,2025.YANG D.Investigation and design of sensitivity problems and statistical inference based on zero expansion Poisson model[D].Chongqing:Chongqing University of Technology,2025.(in Chinese)
[30] 潘佳琪.最小和最大负二项分布的连续表示[D].长春:吉林大学,2025.PAN J Q.Continuous representation of minimum and maximum negative binomial distributions[D].Changchun:Jilin University,2025.(in Chinese)
[31] 赵志文,屈美玉,殷明娥.具有测量误差和缺失数据的两个负二项分布总体参数估计与检验[J].吉林师范大学学报(自然科学版),2021,42(4):31-35.ZHAO Z W,QU M Y,YIN M E.Parameter estimation and hypothesis testing of two Pascal distribution populations with measurement error and missing data[J].Jilin Normal University Journal (Natural Science Edition),2021,42(4):31-35.(in Chinese)
[32] 李政,王硕,杨羽睿,等.基于two-stage GAM模型探究万泉河口须鳗虾虎鱼和真吻虾虎鱼仔鱼分布格局及其对环境因子的响应[J].水生态学杂志,2025,46(5):172-183.LI Z,WANG S,YANG Y R,et al.Distribution and environmental drivers of larval Taenioides cirratus and Rhinogobius similis in the Wanquan River Estuary using a two-stage GAM approach[J].Journal of Hydroecology,2025,46(5):172-183.(in Chinese)
[33] EBANGO NGANDO N,SONG L M,CUI H X,et al.Relationship between the spatiotemporal distribution of dominant small pelagic fishes and environmental factors in Mauritanian waters[J].Journal of Ocean University of China,2020,19(2):393-408.
[34] 王雅丽,王晶,周永东,等.基于two-stage GAM的舟山渔场及邻近海域小黄鱼时空分布特征[J].中国水产科学,2022,29(4):633-641.WANG Y L,WANG J,ZHOU Y D,et al.Spatial and temporal distribution characteristics of Larimichthys polyactis in Zhoushan fishing ground and the adjacent waters based on two-stage GAM[J].Journal of Fishery Sciences of China,2022,29(4):633-641.(in Chinese)
[35] 王雅丽,胡翠林,李振华,等.舟山渔场产卵场保护区春季小黄鱼群体结构及资源动态[J].应用生态学报,2021,32(9):3349-3356.WANG Y L,HU C L,LI Z H,et al.Population structure and resource change of Larimichthys polyactis in spring in Zhoushan fishery spawning ground protection area,China[J].Chinese Journal of Applied Ecology,2021,32(9):3349-3356.(in Chinese)
[36] 林龙山.黄海南部和东海小黄鱼渔业生物学及其管理策略研究[D].青岛:中国海洋大学,2009.LIN L S.Study on the fishery biology and management strategy of Larimichthys polyactis in the southern Yellow Sea and the East China Sea[D].Qingdao:Ocean University of China,2009.(in Chinese)
[37] 宫源廷,赵国庆,张玉钦,等.基于GAM的海阳近海三疣梭子蟹资源丰度与环境因子的关系[J].烟台大学学报(自然科学与工程版),2026,39(1):63-71.GONG Y T,ZHAO G Q,ZHANG Y Q,et al.Relationship between abundance of Portunus trituberculatus in Haiyang offshore area and environmental factors based on GAM[J].Journal of Yantai University (Natural Science and Engineering Edition),2026,39(1):63-71.(in Chinese)
[38] KOV CS L.Feature selection algorithms in generalized additive models under concurvity[J].Computational Statistics,2024,39(2):461-493.
[39] AMODIO S, ARIA M, D’AMBROSIO A.On concurvity in nonlinear and nonparametric regression models [J].Statistica, 2014, 74(1): 81-94.
[40] MORLINI I.On multicollinearity and concurvity in some nonlinear multivariate models[J].Statistical Methodsand Applications,2006,15(1):3-26.
[41] 李斌,郭福生,吴志春,等.一种脉状矿体三维界面构建的新方法:基于格林函数优化的径向基函数建模法[J].大地构造与成矿学,2025,49(6):1449-1462.LI B,GUO F S,WU Z C,et al.A new 3D surface modeling method for vein orebodies:radial basis function interpolation optimized by Green’s function[J].Geotectonica et Metallogenia,2025,49(6):1449-1462.(in Chinese)
[42] 梁燕萍,黄立华,刘伯顺,等.不同物料改良苏打盐碱土的效果评估[J].土壤与作物,2025,14(4):391-404.LIANG Y P,HUANG L H,LIU B S,et al.Efficacy evaluation of different amendments in improving saline-sodic soil[J].Soil and Crop,2025,14(4):391-404.(in Chinese)
[43] 石东雨.吕泗渔场保护区小黄鱼和银鲳的栖息地适宜性评价[D].上海:上海海洋大学,2024.SHI D Y.Habitat suitability evaluation of Larimichthys polyactis and Pampus argenteus in the MPAs of lvsi fishing ground[D].Shanghai:Shanghai Ocean University,2024.(in Chinese)
[44] 张毅,姚昊阳,贾树愚,等.臭氧和温度交互作用及其协同健康影响研究进展[J].科学通报,2025,70(22):3584-3593.ZHANG Y,YAO H Y,JIA S Y,et al.Advances in ozone and temperature interactions and their synergistic health effects[J].Chinese Science Bulletin,2025,70(22):3584-3593.(in Chinese)
[45] 董宇.迁移人群热适应机理及室内热环境评价研究[D].西安:西安建筑科技大学,2023.DONG Y.Study on thermal adaptation mechanism of migrating population and indoor thermal environment evaluation[D].Xi’an:Xi’an University of Architecture and Technology,2023.(in Chinese)
[46] 李迎冬,张崇良,纪毓鹏,等.山东半岛南部海域小黄鱼时空分布及其与环境因子的关系[J].中国水产科学,2021,28(4):442-450.LI Y D,ZHANG C L,JI Y P,et al.Spatio-temporal distribution of Larimichthys polyactis in southern waters off the Shandong Peninsula and its relationship with environmental factors[J].Journal of Fishery Sciences of China,2021,28(4):442-450.(in Chinese)
[47] 张坤阳.中华绒螯蟹(Eriocheir sinensis)养殖系统生命周期的碳足迹测算[D].大连:大连海洋大学,2023.ZHANG K Y.Calculation of carbon footprint of Eriocheir sinensis culture system in life cycle[D].Dalian:Dalian Ocean University,2023.(in Chinese)
[48] 翟璐,徐宾铎,纪毓鹏,等.黄河口及其邻近水域夏季鱼类群落空间格局及其与环境因子的关系[J].应用生态学报,2015,26(9):2852-2858.ZHAI L,XU B D,JI Y P,et al.Spatial pattern of fish assemblage and the relationship with environmental factors in Yellow River Estuary and its adjacent waters in summer[J].Chinese Journal of Applied Ecology,2015,26(9):2852-2858.(in Chinese)
[49] 李玉鹏,吴福星,连玉岭,等.基于最大熵模型预测北部湾东北部水域中华白海豚的潜在栖息地[J].应用海洋学学报,2025,44(4):630-639.LI Y P,WU F X,LIAN Y L,et al.Predicting the potential habitats of Indo-Pacific humpback dolphin (Sousa chinensis) in northeastern Beibu Gulf of China based on MaxEnt model[J].Journal of Applied Oceanography,2025,44(4):630-639.(in Chinese)
[50] 赵伟,任一平,徐宾铎,等.应用STAR模型研究海州湾小黄鱼春季资源量的时空分布[J].水产学报,2022,46(12):2330-2339.ZHAO W,REN Y P,XU B D,et al.Spatio-temporal distribution of larimichthyspolyactisin Haizhou Bay based on STAR model[J].Journal of Fisheries of China,2022,46(12):2330-2339.(in Chinese)
[51] 雷志远,张明伟,石鹏,等.青岛近岸海域大型底栖动物群落特征与底栖生态质量评价[J].中国海洋大学学报(自然科学版),2025,55(5):87-99.LEI Z Y,ZHANG M W,SHI P,et al.Characteristics of macrofaunal communities and benthic ecological quality assessment in the coastal waters of Qingdao[J].Periodical of Ocean University of China(Natural Science Edition),2025,55(5):87-99.(in Chinese)
[52] 李国东,李冬佳,熊瑛,等.基于GAM的黄海南部越冬小黄鱼资源丰度与环境因子关系[J].海洋渔业,2023,45(4):403-411.LI G D,LI D J,XIONG Y,et al.Relationship between environmental factors and abundance of overwintering Larimichthys polyactis in the southern Yellow Sea based on GAM[J].Marine Fisheries,2023,45(4):403-411.(in Chinese)
[53] 张虎,沈独清,薛莹,等.基于组合物种分布模型研究江苏南部海域小黄鱼的空间分布特征及其影响因素[J].上海海洋大学学报,2024,33(6):1345-1356.ZHANG H,SHEN D Q,XUE Y,et al.Spatial distribution and influencing factors of Larimichthys polyactis in the southern waters of Jiangsu Province based on ensemble species distribution model(ESDM)[J].Journal of Shanghai Ocean University,2024,33(6):1345-1356.(in Chinese)
[54] 高阳,张翼,张辉,等.黄海南部和东海北部夏季小黄鱼幼鱼的空间分布研究[J].海洋渔业,2023,45(1):86-94.GAO Y,ZHANG Y,ZHANG H,et al.Spatialdistribution of Larimichthys polyactis juveniles in the southern Yellow Sea and northern East China Sea in summer[J].Marine Fisheries,2023,45(1):86-94.(in Chinese)
[55] 连淑琳.基于耳石信息的东海日本鲭个体生长与栖息生境年间差异分析[D].上海:上海海洋大学,2024.LIAN S L.Analysis of inter-annual variation in individual growth and habitat of Scomber japonicus in the East China Sea based on otolith information[D].Shanghai:Shanghai Ocean University,2024.(in Chinese)
[56] 袁兴伟,姜亚洲,高小迪,等.黄海南部及东海黄鮟鱇时空分布[J].应用生态学报,2023,34(2):519-526.YUAN X W,JIANG Y Z,GAO X D,et al.Spatiotemporal distribution of Lophius litulon in the southern Yellow Sea and East China Sea[J].Chinese Journal of Applied Ecology,2023,34(2):519-526.(in Chinese)
[57] 徐兆礼,陈佳杰.小黄鱼洄游路线分析[J].中国水产科学,2009,16(6):931-940.XU Z L,CHEN J J.Analysis on migratory routine of Larimichthy polyactis[J].Journal of Fishery Sciences of China,2009,16(6):931-940.(in Chinese)
[58] 高阳.黄海南部和东海北部夏季小黄鱼幼鱼分布及其来源初探[D].上海:上海海洋大学,2022.GAO Y.Preliminary study on the distribution and source of juvenile Pseudosciaena crocea in summer in southern Yellow Sea and northern East China Sea[D].Shanghai:Shanghai Ocean University,2022.(in Chinese)
[59] 李志远.渤海、黄海和东海的海面高度和流动对冬季天气尺度风的响应[D].杭州:浙江大学,2019.LI Z Y.Sea surface height and current responses to synoptic winter wind in the Bohai,Yellow and East China Seas[D].Hangzhou:Zhejiang University,2019.(in Chinese)
[60] F DORMANN C,M MCPHERSON J,B  M,et al.Methods to account for spatial autocorrelation in the analysis of species distributional data:a review[J].Ecography,2007,30(5):609-628.
[61] 韩青鹏,单秀娟,万荣,等.基于地统计二阶广义线性混合模型的黄海冬季小黄鱼时空分布和资源量指数估算[J].水产学报,2019,43(7):1603-1614.HAN Q P,SHAN X J,WAN R,et al.Spatiotemporal distribution and the estimated abundance indices of Larimichthys polyactis in winter in the Yellow Sea based on geostatistical delta-generalized linear mixed models[J].Journal of Fisheries of China,2019,43(7):1603-1614.(in Chinese)
[62] 冯超,董婧,刘修泽,等.大连海域大泷六线鱼栖息地适宜性[J].中国水产科学,2025,32(4):538-550.FENG C,DONG J,LIUX Z,et al.Habitat suitability of Hexagrammos otakii in the coastal waters of Dalian[J].Journal of Fishery Sciences of China,2025,32(4):538-550.(in Chinese)