海带(Saccharina japonica)是中国重要的经济海藻,2020年山东养殖面积为15 300 hm2,产量为50.92 万t,占全国总产量的30.83%[1]。2021年11月,山东海带主产区威海荣成发生大规模海带白烂灾害,受灾面积高达8 600 hm2。本课题组前期调查荣成白烂海带时,未从海带上分离出特异性的病原微生物,海带白烂前后共生微生物群落有较大差异,海带共生微生物与大型海藻的生长状态具有相关性[2-3]。当环境条件正常时,海藻与共生菌型互利共生,微生物能促进海藻的健康生长与代谢循环,海藻能为微生物提供附着基质和营养供给[4-5]。当海藻环境条件恶化时,一些共存菌会导致海带产生病害[6],尤其是海带共生的假交替单胞菌属(Pseudoalteromonas)、弧菌属(Vibrio)、盐单胞菌属(Halomonas)、交替单胞菌属(Alteromonas)等均与海带腐烂病害具有相关性[7-8],相关菌株产生的褐藻酸酶是引起海带藻体烂苗的根本原因[9],因此研究海带共生菌群对探寻海带状态与环境变化具有重要意义。自由生活的微生物比附着于颗粒的微生物对环境变化更为敏感[10],故本研究中采集分析的共生菌来源并非海带附生菌株,而是海带白烂区域海水中的菌群。本研究中采用高通量测序技术,分析了山东荣成俚岛海带养殖区域海带受灾前后养殖环境中细菌、真菌群落结构变化,从微观角度分析了共生微生物与海带灾害的相关性,以期为揭示海带病害发生的内在机制提供科学参考。
1 材料与方法
1.1 材料
试验于2019年5月20日(A),2022年2月11日(B)、3月11日(C)、4月12日(D),在荣成俚岛海带养殖区域进行,取3个平行水样,用低温保温箱运回实验室,将平行水样混合抽滤至0.22 μm孔径的灭菌滤膜,滤膜液氮冷冻后,置于-80 ℃冰箱中保存,用于后期测序。
1.2 方法
1.2.1 样品总DNA提取 用OMEGA试剂盒(E.Z.N.ATM Mag-Bind Soil DNA Kit)提取样本总DNA。
1.2.2 PCR扩增程序 细菌16SrRNA基因扩增引物使用341F/805R(CCTACGGGNGGCWGCAG/GACTA CHVGGGTATCTAATCC)。
真菌扩增引物使用NS1/FUNGAL(GTAGTCATATGCTTGTCTC/ATTCCCCGTT ACCCGTTG)。
PCR第一轮扩增程序:将PCR管置于PCR仪中进行扩增,反应条件为:94 ℃下预变性3 min,共进行5次循环(94 ℃下变性30 s,45 ℃下退火20 s,65 ℃下延伸30 s),共进行20次循环(94 ℃下变性20 s,55 ℃下退火20 s,72 ℃下延伸30 s),然后在72 ℃下再稳定延伸5 min,最后在10 ℃下直到反应停止。第二轮扩增,引入Illumina桥式PCR兼容引物,同时,将PCR管置于PCR仪中进行扩增,95 ℃下预变性3 min,共进行5次循环(94 ℃下变性20 s,55 ℃下退火20 s,72 ℃下延伸30 s),72 ℃下延伸5 min,最后在10 ℃下直到反应停止。试验委托生工生物工程(上海)股份有限公司基于Illumina MiSeq测序平台对细菌和真菌序列进行测序分析,并计算Alpha多样性指数与菌群组成。
1.3 数据处理
采用SPSS 19.0软件进行数据计算与分析。采用OrignPro 9.1与GraphPad Prism 9软件作图。
2 结果与分析
2.1 不同时期微生物多样性分析
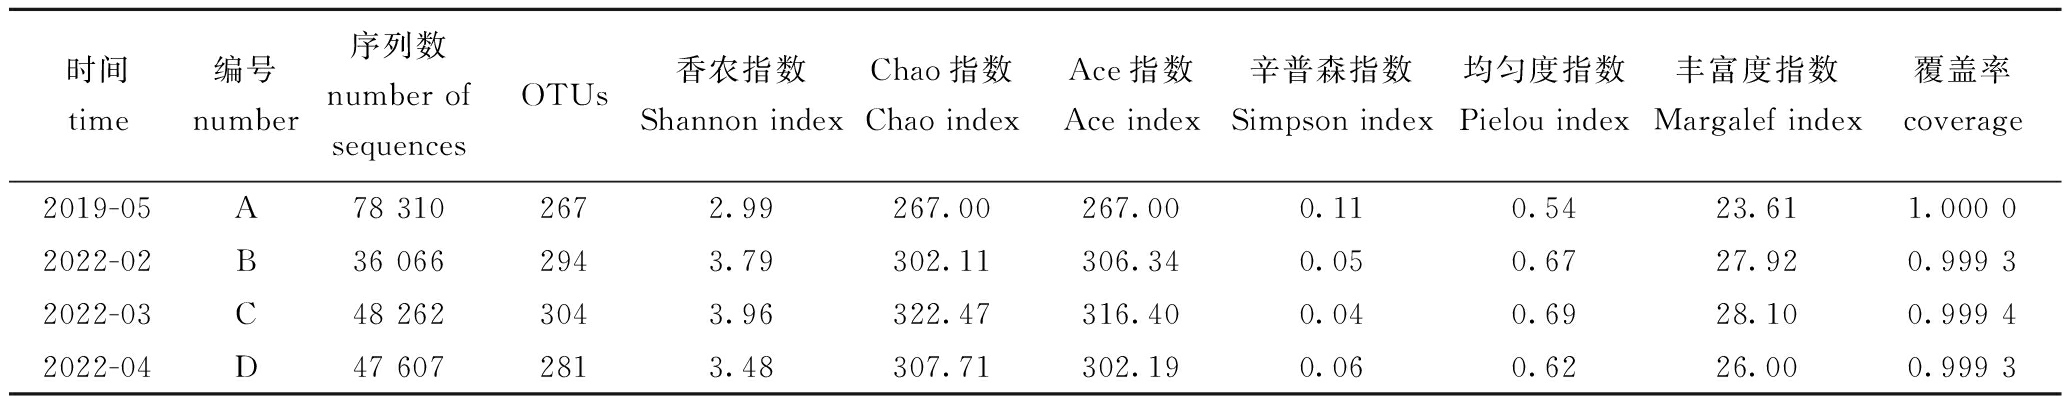
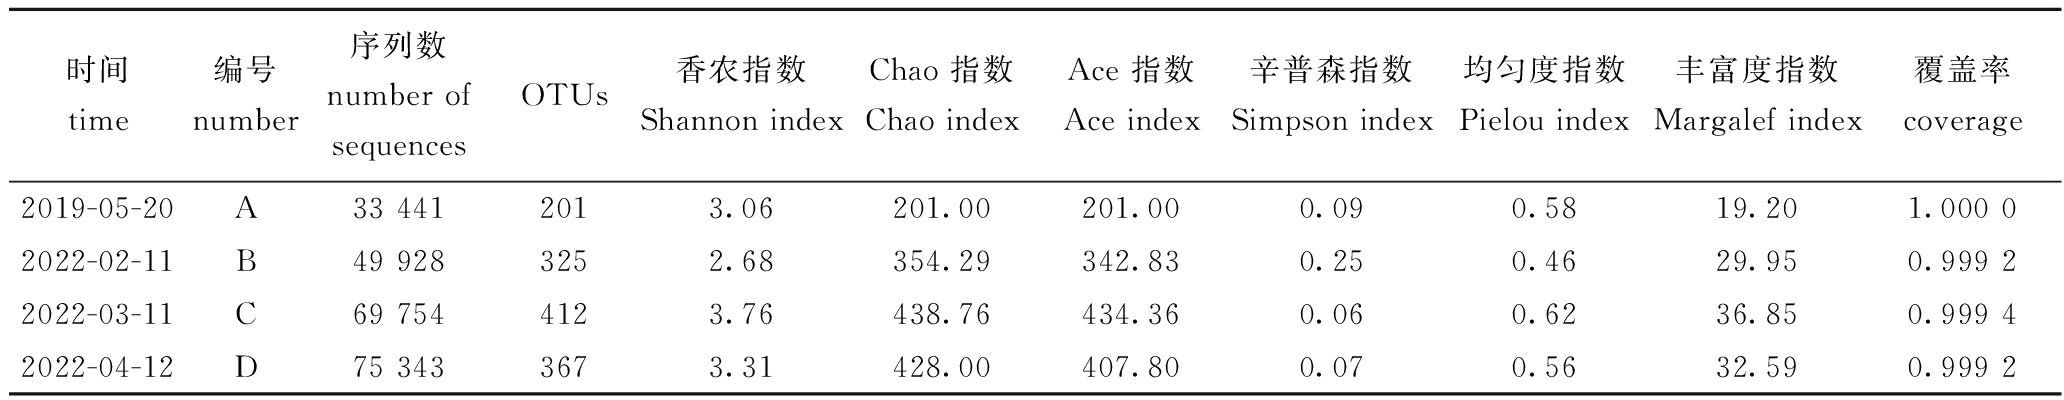
本研究中利用Illumina MiSep测序技术平台对不同时期海带养殖区水环境的微生物细菌在OTU水平上进行多样性分析,海带白烂后OTU数量上升,Alpha多样性指数、Shannon指数、Chao指数、均匀度指数Pielou(E)及丰富度指数Margalef (DMG)比白烂前升高,同时存在先上升后下降的趋势。Simpson指数比白烂前下降,2月—4月存在先下降后上升的趋势(表1)。真菌的趋势基本相同,但在2022年2月真菌的多样性与均匀度较白烂前均有下降,但在3月—4月多样性又上升且高于白烂前(表2)。
表1 不同时间水环境中细菌Alpha多样性指数
Tab.1 Alpha diversity index of bacteria in the water environment at different times
时间time编号number序列数number of sequencesOTUs香农指数Shannon indexChao指数Chao indexAce指数Ace index辛普森指数Simpson index均匀度指数Pielou index 丰富度指数Margalef index 覆盖率coverage2019-05A78 3102672.99267.00267.000.110.5423.611.000 02022-02B36 0662943.79302.11306.340.050.6727.920.999 32022-03C48 2623043.96322.47316.400.040.6928.100.999 42022-04D47 6072813.48307.71302.190.060.6226.000.999 3
表2 不同时间水环境中真菌Alpha多样性指数
Tab.2 Alpha diversity index of fungi in the water environment at different times
时间time编号number序列数number of sequencesOTUs香农指数Shannon indexChao 指数Chao indexAce 指数Ace index辛普森指数Simpson index均匀度指数Pielou index 丰富度指数Margalef index 覆盖率coverage2019-05-20A33 4412013.06201.00201.000.090.5819.201.000 02022-02-11B49 9283252.68354.29342.830.250.4629.950.999 22022-03-11C69 7544123.76438.76434.360.060.6236.850.999 42022-04-12D75 3433673.31428.00407.800.070.5632.590.999 2
从样本中随机抽取一定数量的序列,统计这些序列对应OTU数量,以抽取的数据量为横轴,可以得出样品的测序深度情况。从图1可见,多数样本的序列数在接近10 000时,OTU已经接近饱和,再增加测序量对于发现新OTU的边际贡献很小。说明测序数据量合理,所含菌种数较多。现有测序量已经可以反映样品中细菌丰度信息。
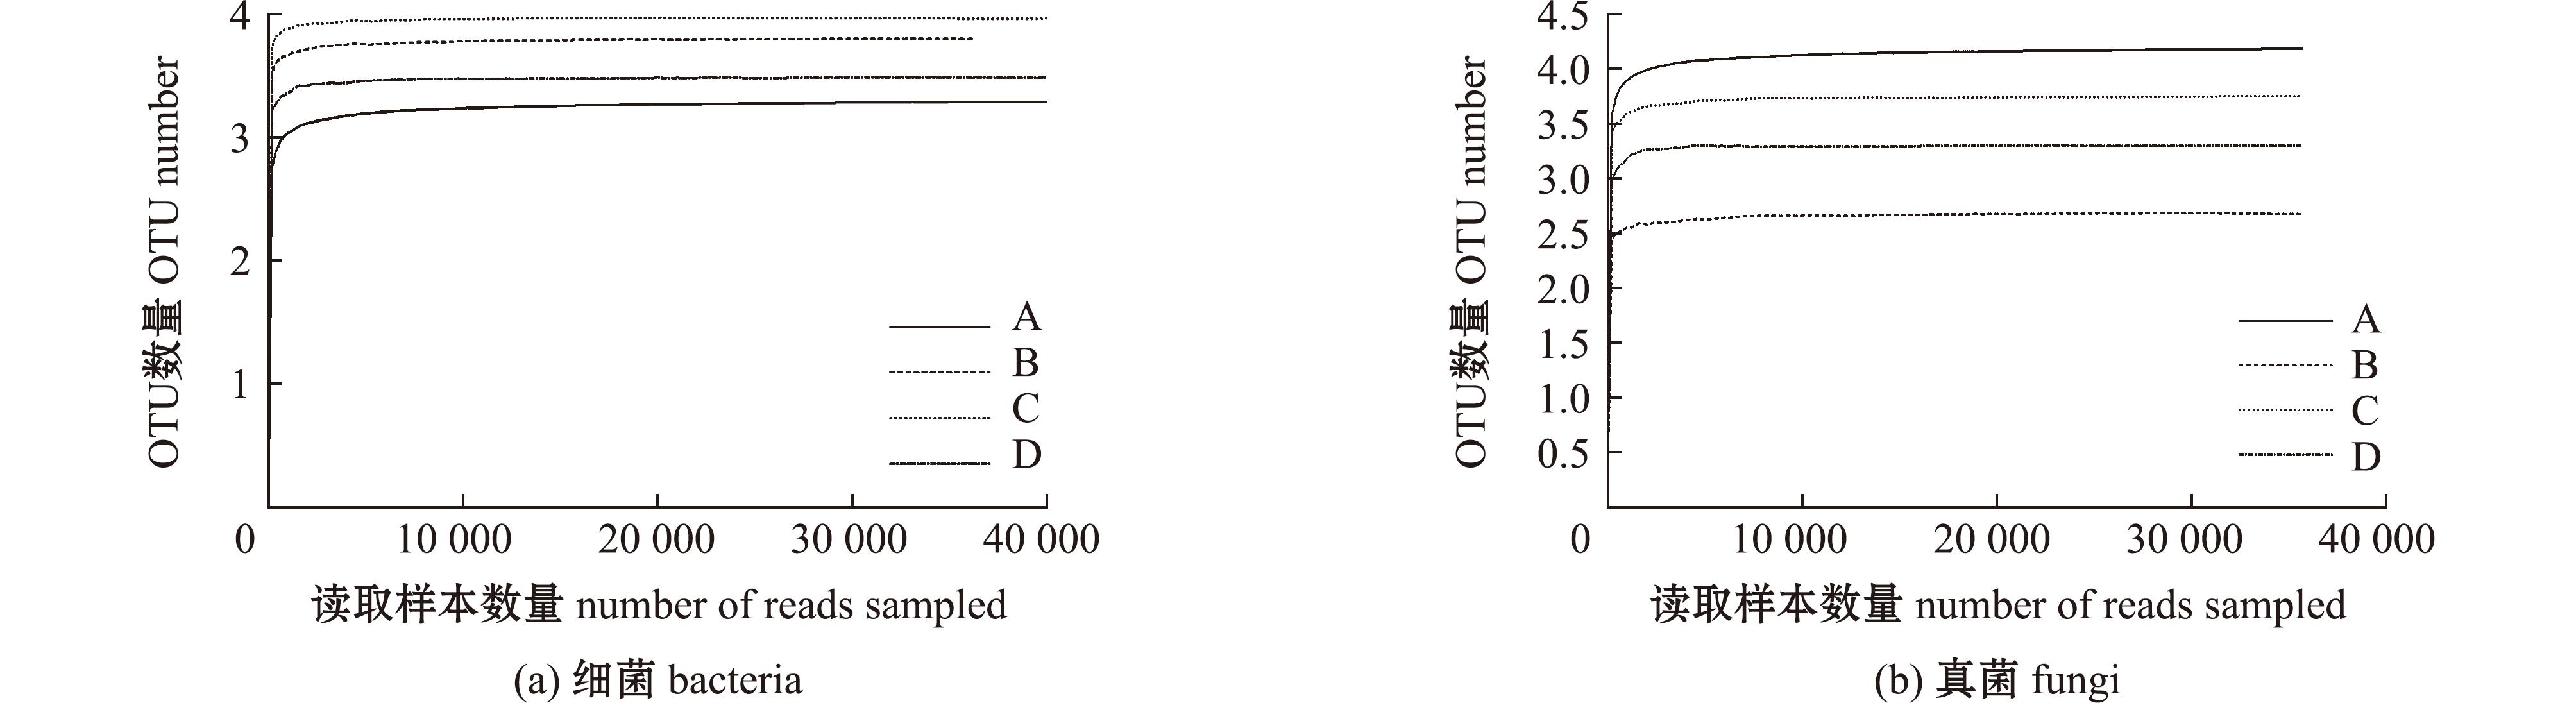
图1 样本的稀释性曲线
Fig.1 Dilution curve of the sample
2.2 不同时期微生物群落组成分析
由于相对丰度小的物种较多,将相对丰度小于0.05的门、小于0.1的属均归为“其他物种”,门水平群落组成分布如图2和图3所示,属水平群落组成分布如图4和图5所示。
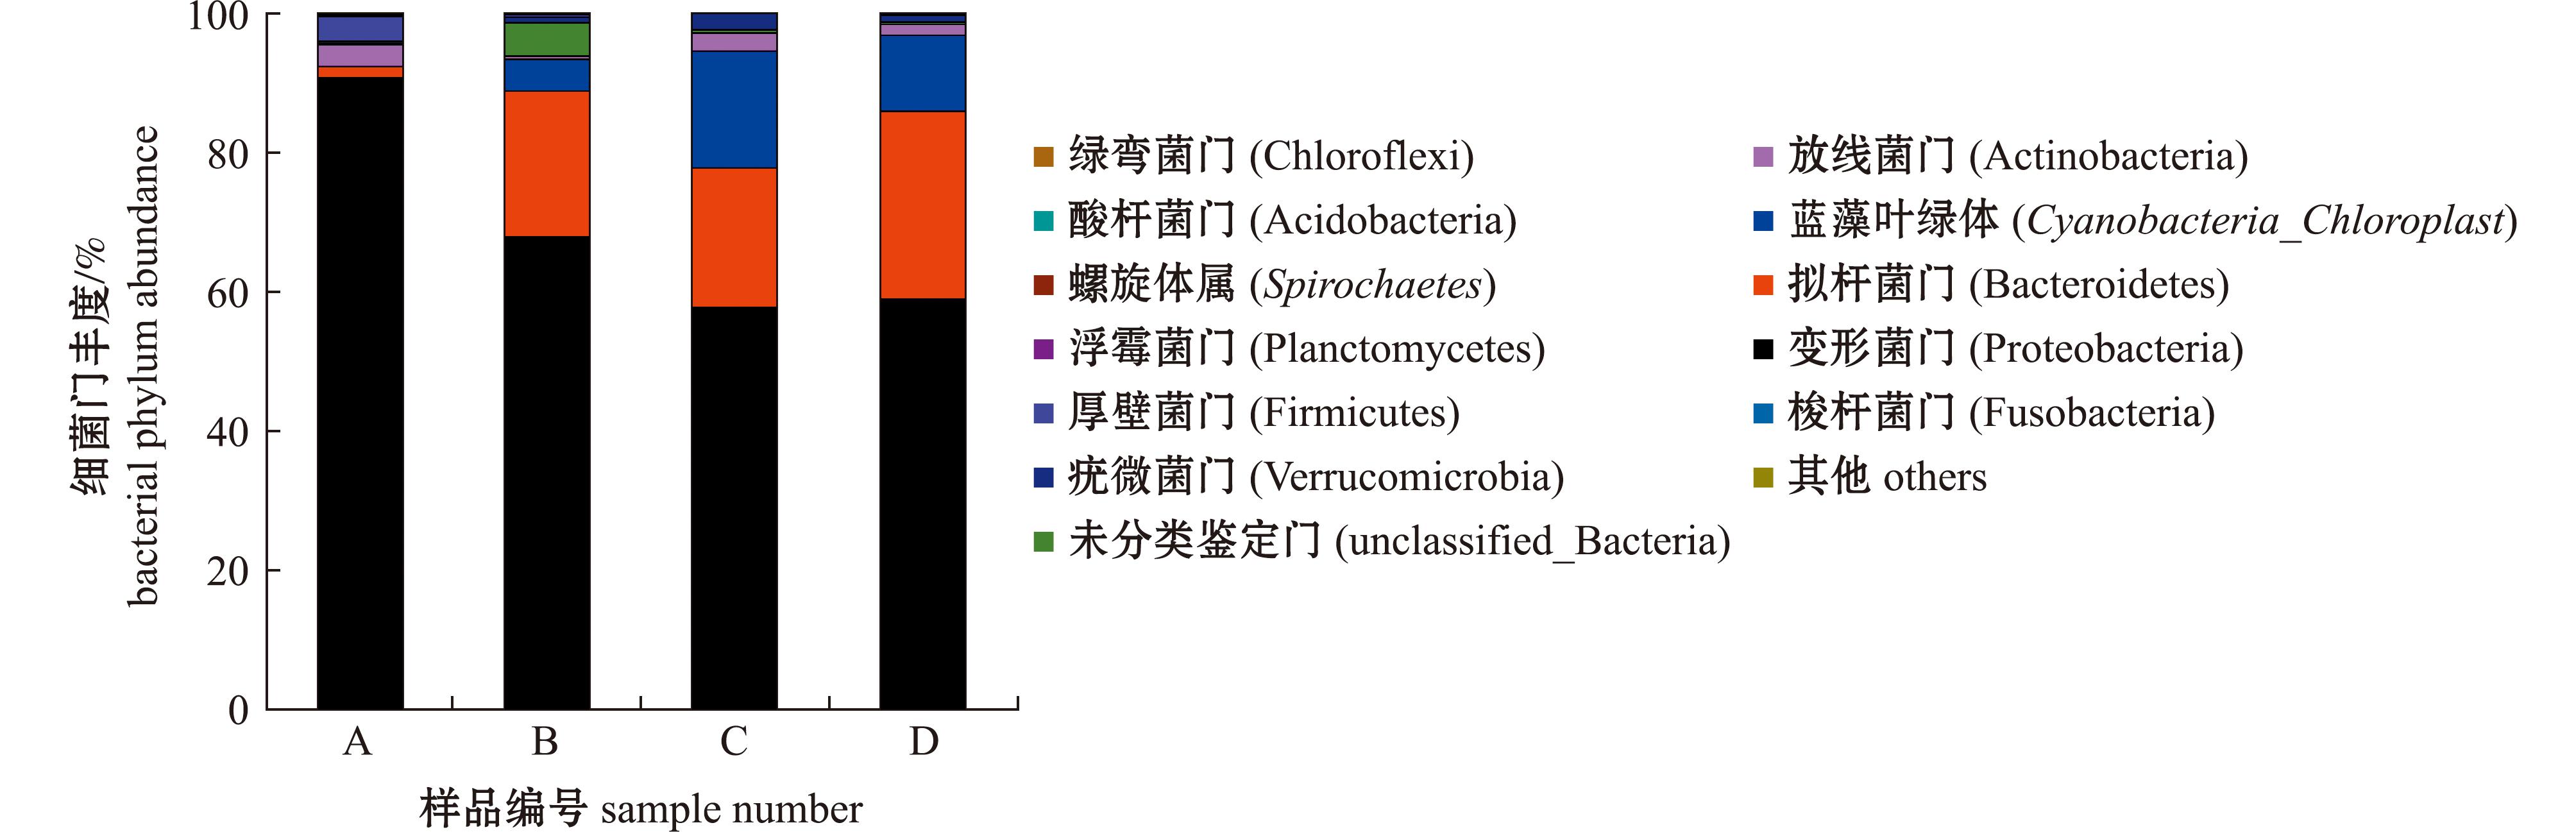
图2 不同采样时间门水平上细菌丰度
Fig.2 Bacterial abundance at phylum level at different sampling times
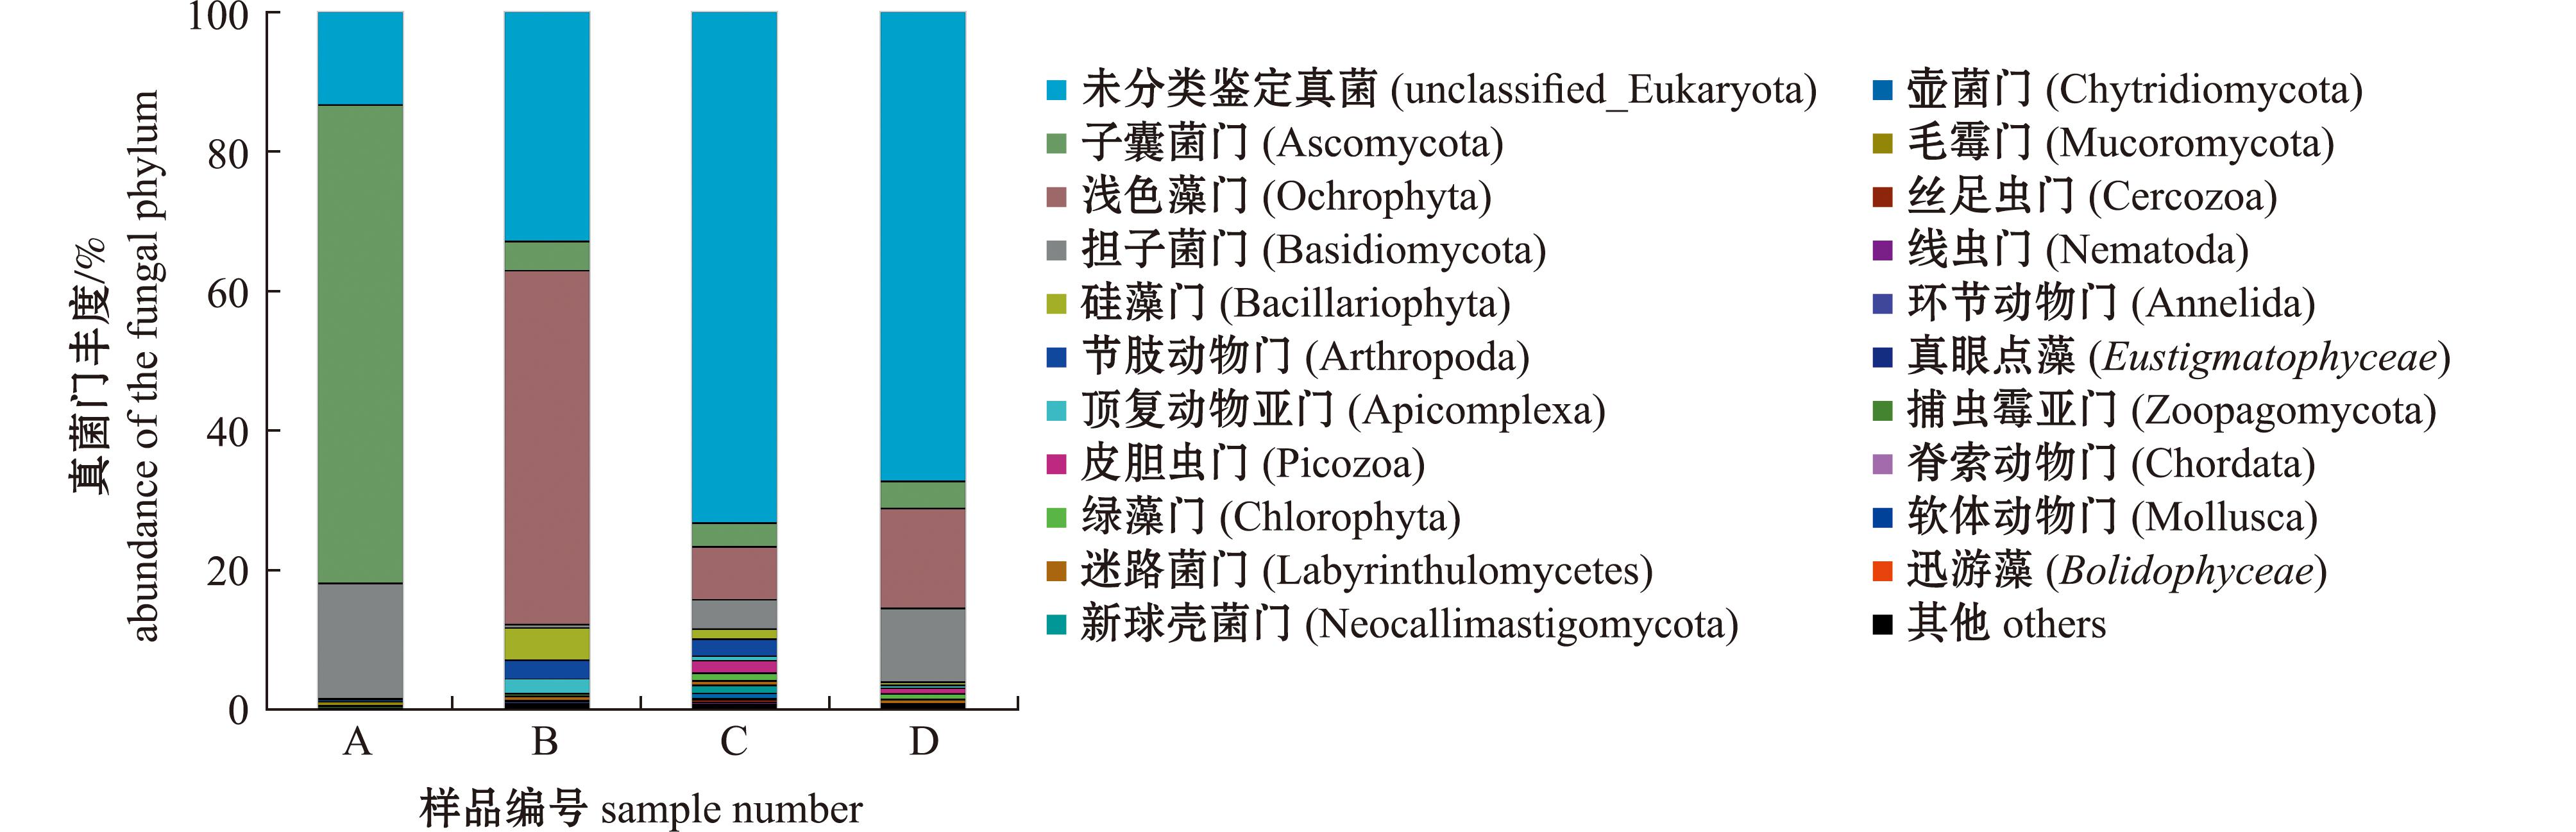
图3 不同采样时间门水平上真菌丰度
Fig.3 Fungi abundance at phylum level at different sampling times
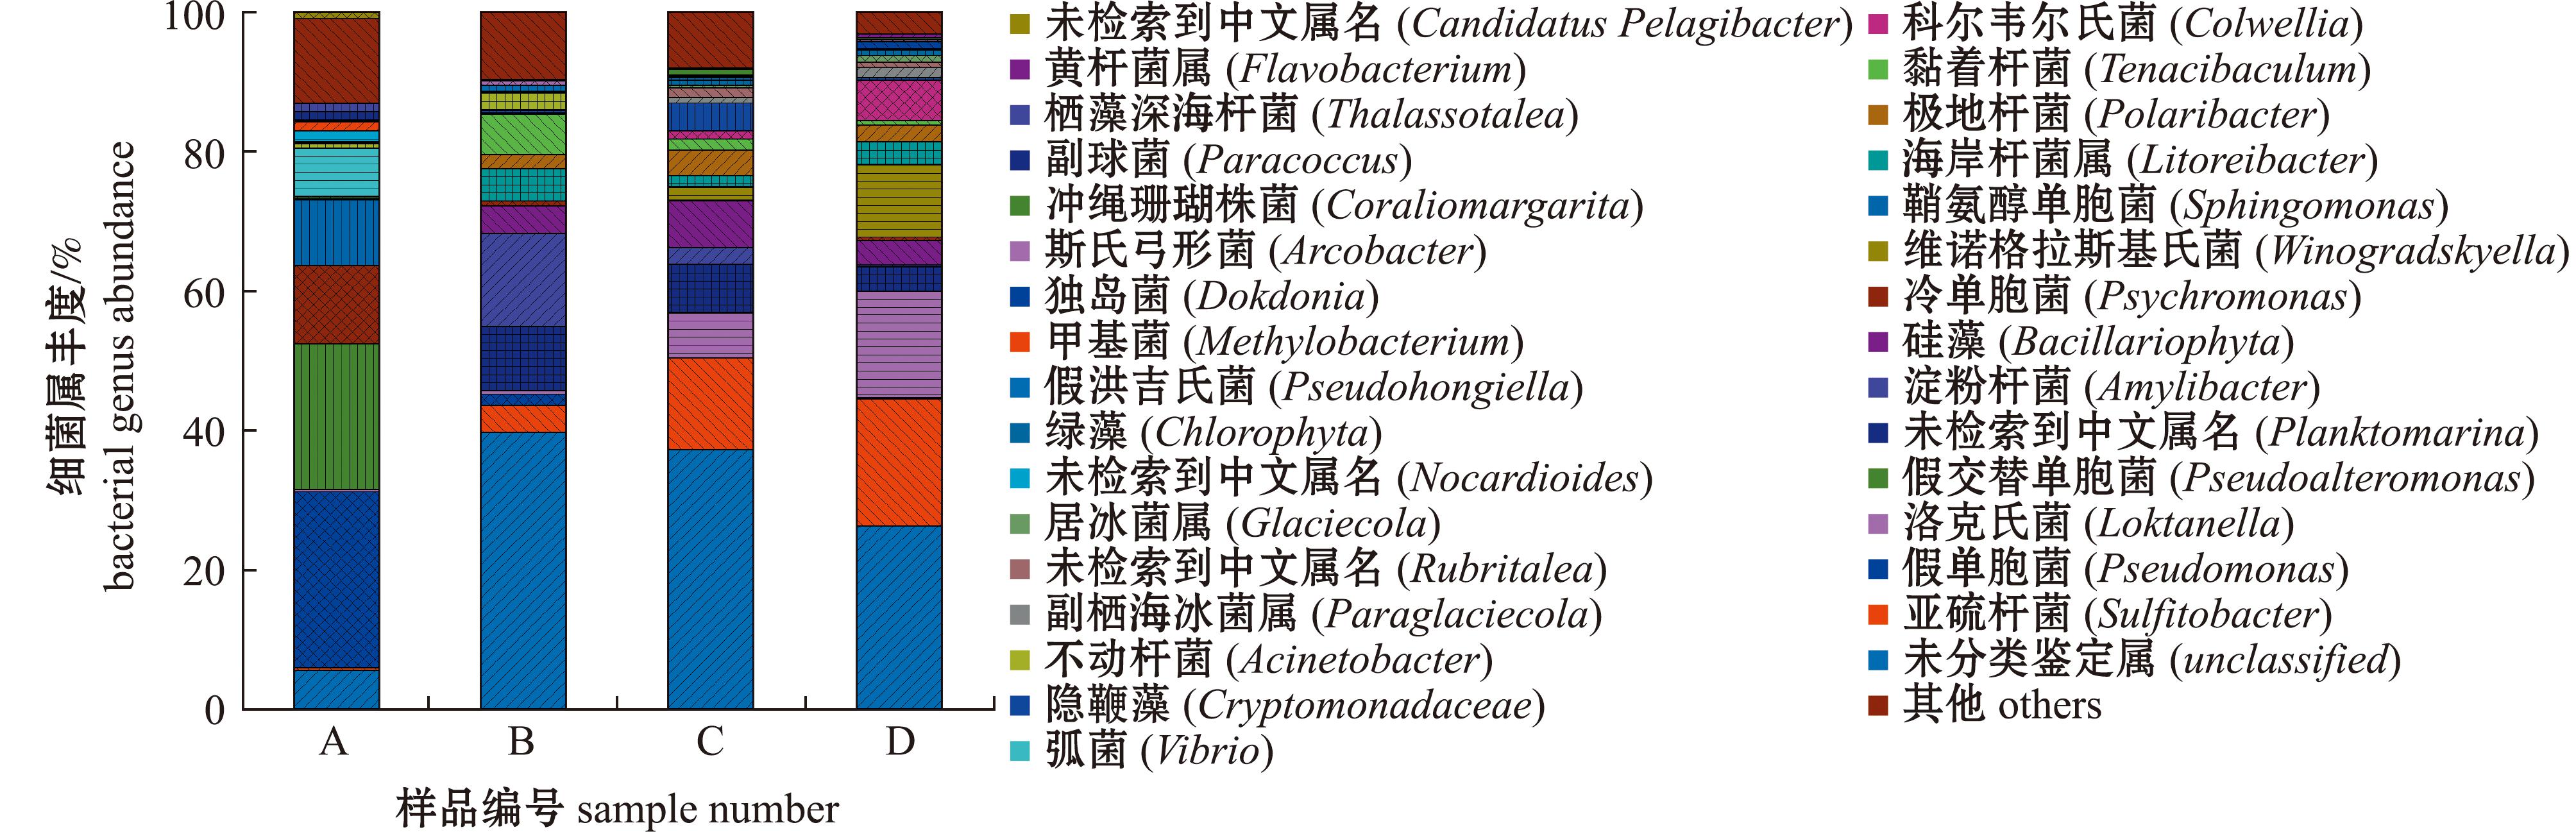
图4 不同采样时间属水平上细菌丰度
Fig.4 Bacterial abundance at genus level at different sampling times
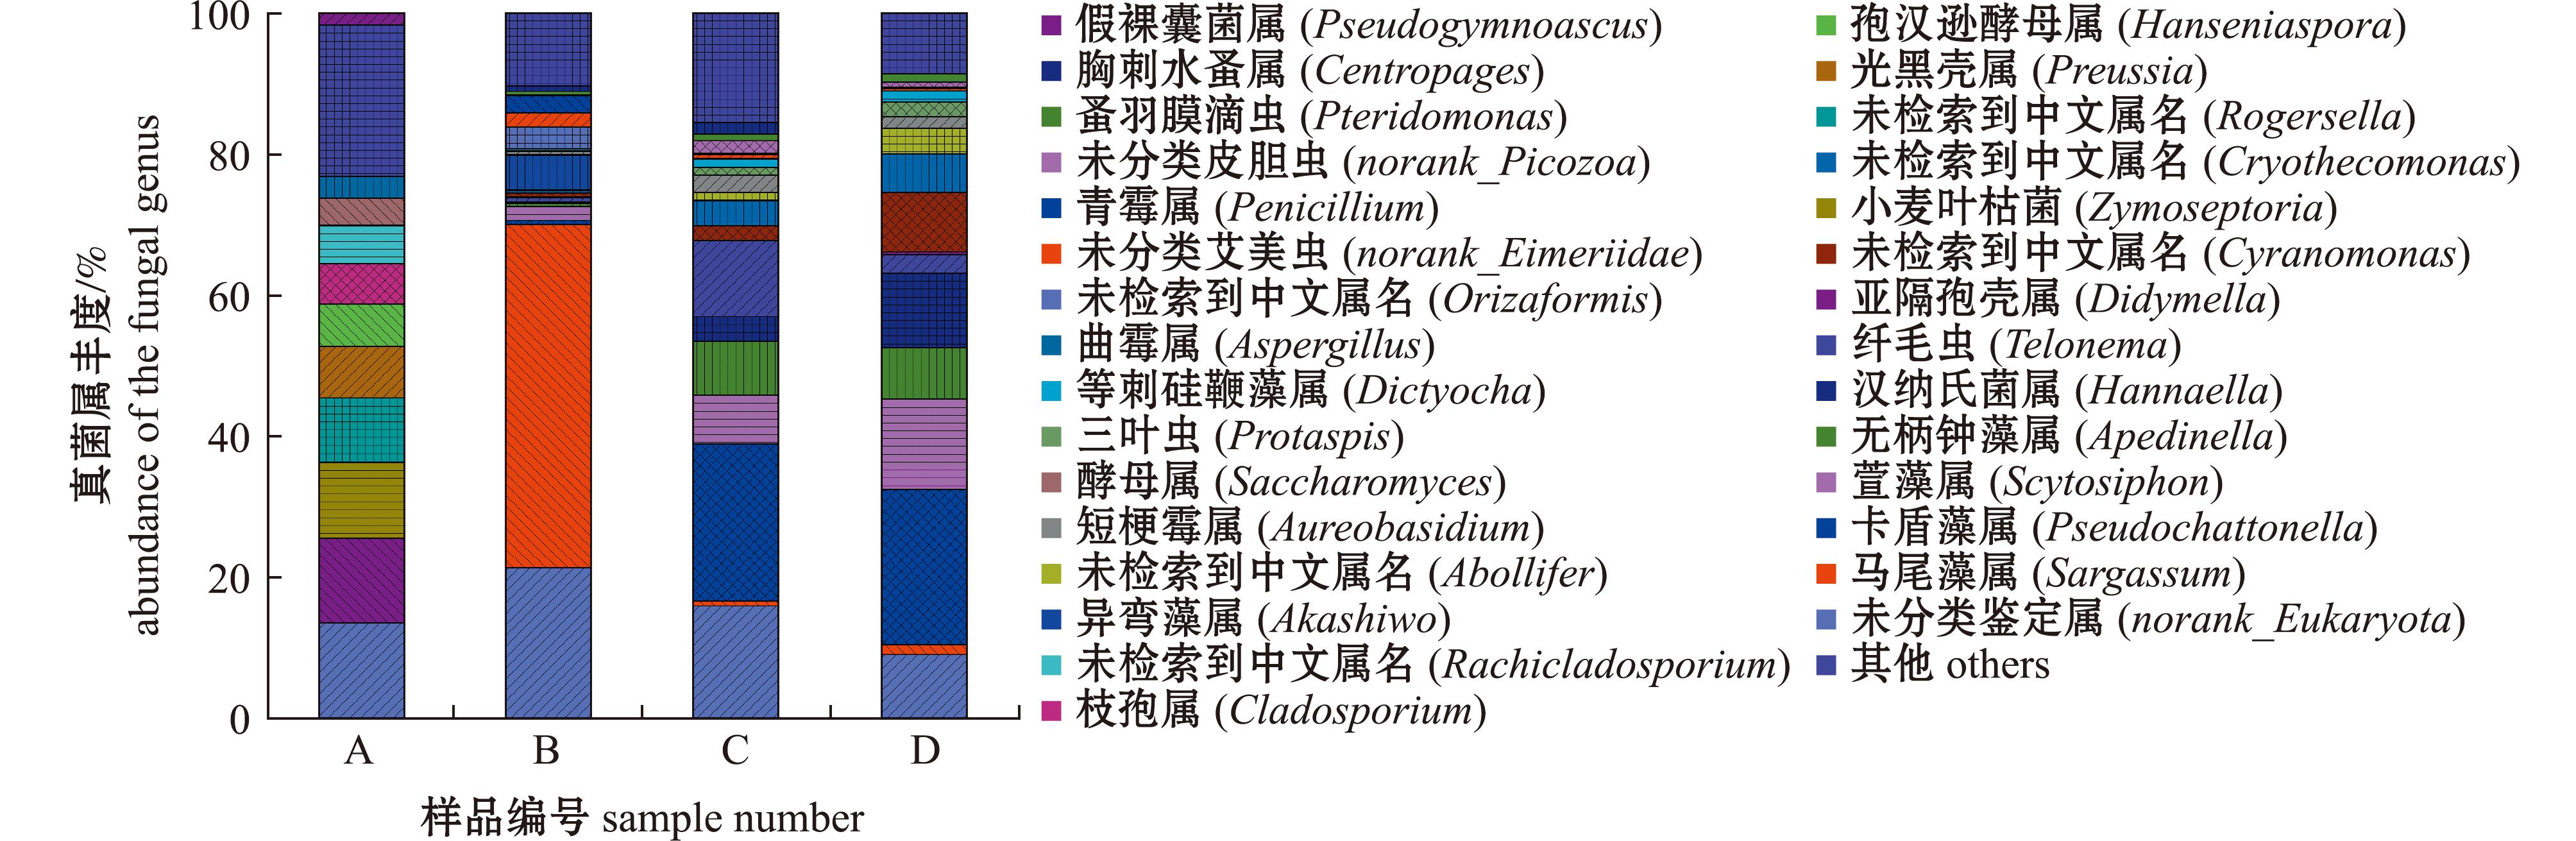
图5 不同采样时间属水平上真菌丰度
Fig.5 Fungi abundance at genus level at different sampling times
2019年5月(A)海带白烂前相对丰度最高的3个细菌门中,变形菌门(Proteobacteria)占比90.47%,拟杆菌门(Bacteroidetes)占比1.75%,放线菌门(Actinobacteria)占比3.09%,3门占比总和为95.31%。海带白烂后3门占比在2022年2月(B,89.04%)、3月(C,80.15%)有所降低,4月(D,87.27%)有所回升。
变形菌门丰度降至57.45%(3月),而拟杆菌门丰度为26.99%(4月),升至灾害前的14倍。蓝藻叶绿体(Cyanobacteria_Chloroplast)在白烂前未检出,白烂后3月份升高至16.82%;厚壁菌门(Firmicutes)丰度由白烂前的3.56%降低至3月份的0.05%,降幅达98.54%;疣微菌门(Verrucomicrobia)白烂前丰度为0.26%,3月份(2.34%)上升了8倍。
海带白烂前未分类真核生物占比13.55%,海带白烂后3月份升高至73.40%,4月份降低至67.46%,白烂增加了真菌的生物多样性。白烂前丰度较高的是子囊菌门(Ascomycota),丰度为68.49%;担子菌门(Basidiomycota),丰度为16.63%,两门丰度占比总和为85.12%。白烂后两门丰度降低至4.61%和7.66%,后又回升至14.51%。褐藻门(Ochrophyta)白烂前未检出,白烂后陡升至50.73%(2月),4月下降至14.29%。硅藻门(Bacillariophyta)在海带白烂前未见,在2月份丰度为4.60%,3、4月份逐渐降低,分别为1.41%和0.40%,接近白烂前的水平。
海带灾害前未分类细菌属占比5.65%,灾害后2月份升高(39.62%),3月份再升高(37.24%),4月份(26.33%)有所降低,白烂增加了细菌属的生物多样性。白烂前海水中细菌属丰度占比较高的5个属为假单胞菌(Pseudomonas)、假交替单胞菌(Pseudoalteromonas)、冷单胞菌(Psychromonas)、鞘氨醇单胞菌(Sphingomonas)和弧菌(Vibrio),5个属的总丰度为73.6%,但这5个属在海带白烂后丰度都大幅下降,总和占比分别为2.38%~0.33%。
白烂后,亚硫杆菌(Sulfitobacter)的丰度由白烂前的0.3%逐渐升高至18.13%(4月)。洛克氏菌(Loktanella)的丰度由白烂前的0.31%逐渐升高至15.36%(4月)。Planktomarina白烂前丰度为0.05%,2月升高至9.18%,4月下降至3.47%,淀粉杆菌(Amylibacter)白烂前丰度为0.01%,2月上升至13.34%,4月下降至0.3%,接近白烂前的丰度。维诺格拉斯基氏菌(Winogradskyella),白烂前丰度为0.01%,4月份上升至10.31%,科尔韦尔氏菌(Colwellia)由白烂前的0.13%上升至5.73%(4月)。黏着杆菌(Tenacibaculum)白烂前丰度为0.29%,白烂后2月份上升至5.74%,4月份下降至0.60%。
海带白烂前真菌的群落结构变化比较大,白烂前海水中真菌属丰度占比较高的5个属有亚隔孢壳属(Didymella)、小麦叶枯菌(Zymoseptoria)、Rogersella、光黑壳属(Preussia)、孢汉逊酵母属(Hanseniaspora),总丰度为45.2%,但白烂后亚隔孢壳属由灾前的12.08%降至2月份的0.028%,4月份又上升至0.44%,其他属丰度均为0。
鼠尾藻属(Sargassum)的丰度在白烂前未检出,白烂后2月份为48.77%,3、4月份降至1%左右。在高通量测序的所采用引物,在海水中扩增得到鼠尾藻的序列,说明除海带外,鼠尾藻也出现了降解。究其原因可能是相关微生物也可以降解鼠尾藻或环境条件也不利于鼠尾藻的生存。白烂后丰度占前5的真菌属在白烂前均未检出,其中卡盾藻属(Pseudochattonella)逐渐上升至22.00%,萱藻属(Scytosiphon)、无柄钟藻属(Apedinella)、汉纳氏菌属(Hannaella)、Cyranomonas属4月份分别上升至12.80%,7.31%,10.53%,8.43%。Telonema属3月份上升至10.77%,4月份下降至2.58%。
2.3 不同时期微生物功能预测分析
PICRUSt将现有的16SrRNA基因测序数据与代谢功能已知的微生物参考基因组数据库相对比,实现了对细菌和古菌代谢功能的预测,为阐明哪些KO功能类别在这些差异中最占优势,将注释功能按丰度排序,选择丰度高、白烂前后变化较大的功能绘制功能丰度热图(图6),图中每一列代表一个样本,行代表功能,颜色块代表功能丰度值,颜色越红表示丰度越高,颜色越蓝则反之。
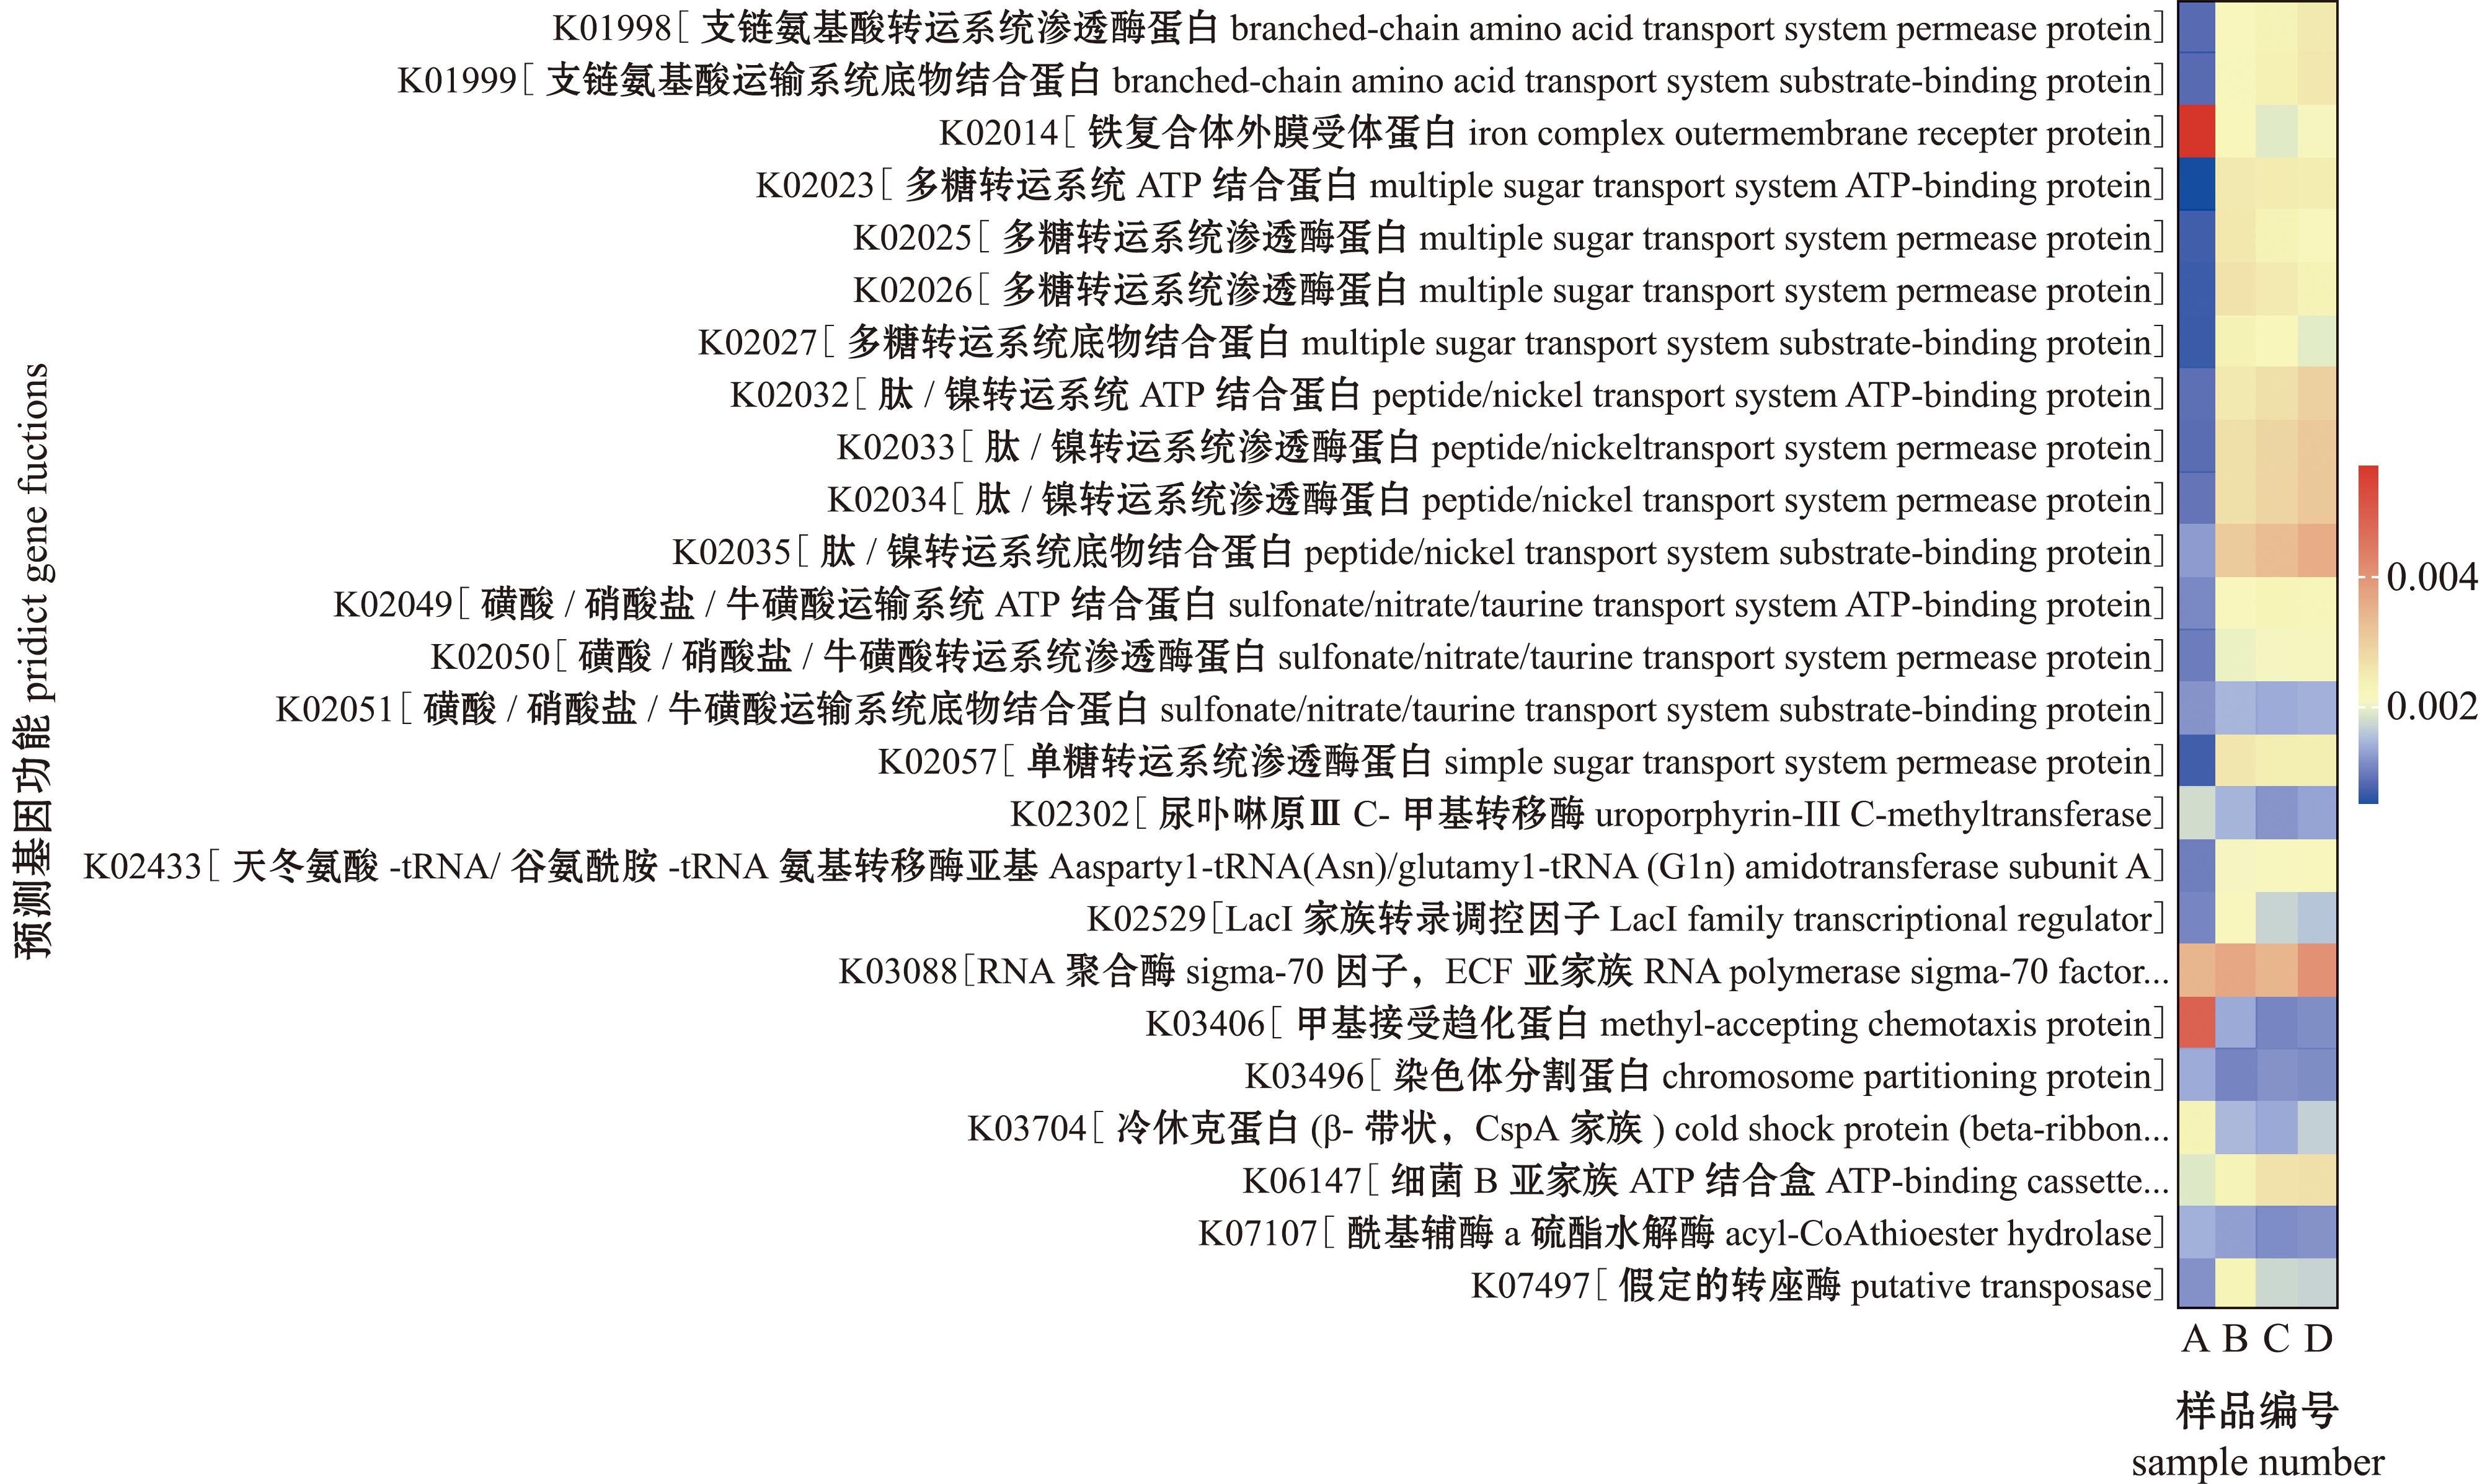
图6 不同时间点基因表达功能预测热图
Fig.6 Function prediction heatmap of genes expressed at different times
海带白烂前预测丰度最高的基因功能为铁载体受体蛋白(K02014),占比0.58%,灾害后降至20余位,丰度约0.20%。第2位的是甲基化趋化蛋白(K03406),白烂前占比0.49%,白烂后降至约40位,丰度为0.12%~0.15%。丰度第3位的RNA聚合酶sigma-70因子(K03088),白烂后上升至第1位。肽/镍转运系统底物结合蛋白(K2035),在海带白烂前丰度占比0.14%,为20位,白烂后上升至第2位,丰度上升至0.33%~0.35%。白烂前丰度最低的多糖转运系统ATP结合蛋白(K02023),白烂后上升至十几位,丰度由白烂前的0.047%上升至0.25%。丰度十几位的酰基辅酶a硫酯水解酶(K07107)与染色体分区蛋白(K03496),在白烂后降至约50位。
3 讨论
海带白烂发生后1月份调查区域海水中硝态氮含量为20~50 μg/L,磷含量为2~3 μg/L,存在营养限制。李晓东等[11]调查了威海荣成海带养殖区12个站位后也发现养殖区海域氮、磷营养盐含量均处于严重贫瘠状态。有研究发现,赤潮的发生会消耗海水中的营养,赤潮发生区域的总磷含量会显著低于非赤潮区域[12]。荣成海带白烂前海域中曾发生过赤潮,因此初步分析是赤潮导致海水氮磷营养的贫瘠。除了氮磷的降低,赤潮消退期间,藻体死亡分解和消耗也会导致水体中溶解氧降低[12],海带养殖区域环境条件的改变可引起藻类、微生物状态与组成改变。
3.1 海带白烂后水环境中微生物的多样性增加,群落结构发生变化
随着海带白烂与赤潮衰退,细菌与真菌中的α多样性指数升高,细菌群落的多样性升高[13]。海洋中丰度较高的细菌门有变形菌门、放线菌门、拟杆菌门、厚壁菌门[14]。变形菌门作为第一优势菌门,丰度多为50%以上。白烂后变形菌门丰度有所降低,因为变形菌门与环境中的磷含量正相关,磷限制导致变形菌门的丰度降低,赤潮后水体中溶解氧降低[15],也限制了变形菌门中好氧菌的生长。厚壁菌门是固氮过程的主要微生物,放线菌门是反硝化过程中的主要微生物[16],氮限制导致这两个门的丰度降低。拟杆菌门属于异养厌氧细菌,参与碳水化合物和蛋白质的物质循环,是藻类衍生碳水化合物的重要分解者[17],因此海带白烂后拟杆菌门的丰度大幅升高。疣微菌门可见于海洋、湖泊、土壤、肠道等,门中有好氧菌与厌氧菌。自然环境中的疣微菌门,能够适应寡营养、高温、强酸等多种恶劣条件。部分疣微菌门成员具有编码糖苷水解酶、硫酸盐酶、多肽酶、酯酶等多糖酶的基因,可以利用岩藻多糖、结冷胶、瓜尔胶、甘露糖等多种复杂多糖[18-20]。疣微菌门生长适宜于低氮磷条件,添加氮磷后疣微菌门的丰度反而会降低[21-23]。海带白烂后条件适宜疣微菌门生长,因此丰度上升。未分类真核生物占比升高,说明白烂后真菌的多样性升高。子囊菌门和担子菌门均为海洋中的常见真菌优势种,分析丰度下降主要原因是未分类真核生物、褐藻门的升高引起[24]。褐藻门丰度的升高,主要是鼠尾藻属丰度升高所致,除海带外,其他褐藻也存在降解。
3.2 浮游植物群体的演变是养殖区微生物群落结构变化的主要原因
浮游植物群落结构逐渐演变,硅藻2月份丰度最高,3月份开始降低,浮游植物逐渐朝蓝藻类群的方向演变,蓝藻3月份丰度达到最高,4月份开始降低,卡盾藻的丰度在4月份达到最高。浮游植物群落结构随着时间在不断变化,此结果与魏超[25]的研究结果一致。除本次鉴定出的浮游植物外,李晓东等[11]调查发现,威海东北部海域12月赤潮优势种为多纹膝沟藻(Gonyaulax polygramma)和红色赤潮藻(Akashiwo sanguinea)。
养殖海域赤潮指示菌的丰度大幅上升。亚硫杆菌是与赤潮(棕囊藻、蓝藻、硅藻)相关的关键菌群,亚硫杆菌属可以给硅藻和微小绿藻提供吲哚-3-乙酸(IAA),这种生长因子可促进硅藻细胞的分裂,硅藻产生二甲基巯基丙酸(dimethylsulfoniopropionate,DMSP)供菌株生长代谢[26-27]。本次调查发现,亚硫杆菌丰度上升至第一位。除了亚硫杆菌,其他报道的赤潮相关菌属海洋浮游菌属Planktomarina[28]、淀粉杆菌属、无柄钟藻属[29]、破囊壶菌[30]、变形菌门的洛克氏菌(Loktanella)[12]等均是2、3、4月的荣成养殖海域的主要菌群。
3.3 变形菌门的海藻降解菌属、子囊菌门的致病菌并非海带白烂的主要原因
假单胞菌、假交替单胞菌属、冷单胞菌属、弧菌属均属于变形菌门-γ-变形菌纲,鞘氨醇单胞菌属于α-变形菌纲,这几个属的菌具有编码褐藻胶裂解酶、纤维素酶等的酶。海带白烂前这几个属丰度较高,但在海带白烂后,其丰度却大幅降低。分析原因可能有两个,一是赤潮引起的环境条件(溶解氧与营养盐)改变导致。这几个属中假单胞菌、假交替单胞菌属等都是严格好氧菌,生长与产酶均需要氧气。同时多个属是反硝化菌,代谢硝态氮还原至亚硝态氮,同时需要固定大量磷酸盐[28],而环境中氮、磷限制导致丰度下降。二是菌间竞争导致,有研究指出,与假单胞菌属、弧菌属相比,维诺格拉斯基氏菌属等在利用海藻上更有竞争力,维诺格拉斯基氏菌属具有利用海藻多糖的能力,包括海藻酸盐、卡拉胶和海带淀粉[31],因此海带白烂后维诺格拉斯基氏菌属的菌株丰度上升。总之,变形菌门假单胞菌、假交替单胞菌属、冷单胞菌属、弧菌属等不是导致海带白烂的原因。真菌门的亚隔孢壳属、Rogersella、小麦叶枯菌是植物原生病菌,可导致植物叶片生成黑斑[32-33]。在海带白烂前,这几个真菌属丰度较高,但在海带白烂后丰度均接近为0,说明其不是导致海带白烂的直接原因。
3.4 海带白烂后菌株编码碳源代谢及菌间竞争的基因功能上调
RNA聚合酶sigma-70因子(K03088)是一种负责从DNA或RNA模板制造RNA的酶,参与调节应激反应、运动性能和毒力分泌相关的基因表达。海带白烂前占比0.345%,白烂后上升至第1位[34-35]。海带白烂后细菌与真菌的群落多样性提高,环境比较复杂,菌落之间竞争导致sigma-70因子功能表达丰度较高。肽/镍转运系统底物结合蛋白(K2035)在灾害前丰度占比为20位,灾害后上升至第2位。功能蛋白参与碳源能量代谢,以及化能自养菌的碳固定代谢[36]、菌的定植过程[37]等。灾前丰度最低的多糖转运系统ATP结合蛋白(K02023)参与多糖在细胞与环境中的摄取与转运,在灾后上升至10余位。说明在白烂后细菌对于碳的代谢增强。酰基辅酶a硫酯水解酶(K07107)参与细菌脂质代谢,裂解支链脂肪酸、短链和长链饱和及不饱和酰基辅酶A等,其硫酯酶主要以脂酰CoA为水解底物,释放出游离脂肪酸,这是细胞分解脂肪酸获取能量的核心代谢途径[38],脂质代谢功能降低,说明环境中可利用脂质较少,同时也说明环境中糖类碳源提供的能量可以满足细菌生长需求。
4 结论
1)海带白烂后水环境中微生物的多样性增加,菌群编码碳源代谢及菌间竞争的基因功能上调。养殖区域除海带外,其他褐藻(鼠尾藻)也存在降解现象。
2)赤潮的发生可引起海带养殖区海域微生物群落结构的变化,很多赤潮相关菌的丰度大幅上升。
3)变形菌门的假单胞菌、假交替单胞菌属、冷单胞菌属、弧菌属,真菌门的Didymella、Rogersella、小麦叶枯菌相较白烂前丰度均出现大幅下调,因此并不是此次海带白烂的直接原因。综合分析,赤潮引起的环境条件变化是导致海带白烂的直接原因。
[1] 农业农村部渔业渔政管理局,全国水产技术推广总站,中国水产学会.2021中国渔业统计年鉴[M].北京:中国农业出版社,2021.Bureau of Fisheries,Ministry of Agriculture and Rural Affairs,National Fisheries Technology Extension Center,China Society of Fisheries.2021 China fishery statistical yearbook [M].Beijing:China Agriculture Press,2021.(in Chinese)
[2] LEMAY M A,DAVIS K M,MARTONE P T,et al.Kelp-associated microbiota are structured by host anatomy(1)[J].Journal of Phycology,2021,57(4):1119-1130.
[3] COMBA GONZ LEZ N B,NI
 O CORREDOR A N,L
 PEZ KLEINE L,et al.Temporal changes of the epiphytic bacteria community from the marine macroalga Ulva lactuca (santa marta,Colombian-Caribbean)[J].Current Microbiology,2021,78(2):534-543.
[4] WANG G G,SHUAI L,LI Y,et al.Phylogenetic analysis of epiphytic marine bacteria on Hole-Rotten diseased sporophytes of Laminaria japonica[J].Journal of Applied Phycology,2008,20(4):403-409.
[5] SINGH R P,REDDY C R K.Seaweed-microbial interactions:key functions of seaweed-associated bacteria[J].FEMS Microbiology Ecology,2014,88(2):213-230.
[6] EGAN S,GARDINER M.Microbial dysbiosis:rethinking disease in marine ecosystems[J].Frontiers in Microbiology,2016,7:991.
[7] YUMOTO I,YAMAGUCHI K,YAMADA K,et al.Relationship between bacterial flora and occurrence of the Alteromonas sp.,the causative agent of red-spots on the culture bed of makonbu Laminaria japonica,in the coastal area of Funka Bay[J].Nippon Suisan Gakkaishi,1989,55(11):1907-1914.
[8] SAWABE T,TANAKA R,IQBAL M M,et al.Assignment of Alteromonas elyakovii KMM 162T and five strains isolated from spot-wounded fronds of Laminaria japonica to Pseudoalteromonas elyakovii comb.nov.and the extended description of the species[J].International Journal of Systematic and Evolutionary Microbiology,2000,50(1):265-271.
[9] 王伟伟,王娜,张壮志,等.海带夏季育苗系统褐藻酸降解菌数量组成分析[J].大连海洋大学学报,2017,32(1):26-32.WANG W W,WANG N,ZHANG Z Z,et al.Quantity and composition of alginic acid decomposing bacterial community in summer seedling system of kelp Saccharina japonica[J].Journal of Dalian Ocean University,2017,32(1):26-32.(in Chinese)
[10] YANG C Y,WANG Q,SIMON P N,et al.Distinct network interactions in particle-associated and free-living bacterial communities during a Microcystis aeruginosa bloom in a plateau lake[J].Frontiers in Microbiology,2017,8:1202.
[11] 李晓东,苏丽,李晓捷,等.2021—2022年山东荣成海带产区大规模溃烂灾害综合调查分析[J].中国农业科技导报,2023,25(1):206-222.LI X D,SU L,LI X J,et al.Comprehensive analysis of large-scale Saccharina japonica damage in the principal farming area of Rongcheng in Shandong Province from 2021 to 2022[J].Journal of Agricultural Science and Technology,2023,25(1):206-222.(in Chinese)
[12] 徐沙.基于宏组学技术探究棕囊藻赤潮生消过程中微生物群落结构变化及其生态功能[D].青岛:中国科学院大学(中国科学院海洋研究所),2021.XU S.The variation of marine microbial community structure and its ecological functions following a Phaeocystis bloom,highlighted by omics techniques[D].Qingdao:University of Chinese Academy of Sciences(Institute of Oceanology,Chinese Academy of Sciences),2021.(in Chinese)
[13] 王顺.两淮采煤沉陷水域微生物群落格局及构建机制[D].淮南:安徽理工大学,2024.WANG S.Microbial community pattern and construction mechanism in the subsidence waters of coal mining in Huaihe River and Huaihe River[D].Huainan:Anhui University of Science &Technology,2024.(in Chinese)
[14] 刘岩,李志恩,袁一鸣,等.基于高通量测序的象山港水域细菌多样性的研究[J].海洋与湖沼,2022,53(3):645-653.LIU Y,LI Z E,YUAN Y M,et al.Study on bacterial diversity in the Xiangshan harbor using high throughput sequencing[J].Oceanologia et Limnologia Sinica,2022,53(3):645-653.(in Chinese)
[15] 梁碧霞,田湘,吴庆标.基于宏基因组测序分析桉树林改种麻竹林对土壤和根系微生物群落的影响[J].广西林业科学,2024,53(6):754-762.LIANG B X,TIAN X,WU Q B.Effects of converting eucalypt plantations to Dendrocalamus latiflorus forests on soil and root microbial communities based on metagenomic sequencing[J].Guangxi Forestry Science,2024,53(6):754-762.(in Chinese)
[16] 孔令辉.叠氮溴化丙锭结合高通量测序技术分析风干农田土壤中活性微生物[D].哈尔滨:东北农业大学,2023.KONG L H.Analysis of active microorganisms in air-dried farmland soil by azido-propyl bromide combined with high-throughput sequencing technique[D].Harbin:Northeast Agricultural University,2023.(in Chinese)
[17] LIEN Y W,AMENDOLA D,LEE K S,et al.Mechanism of bacterial predation via ixotrophy[J].Science,2024,386(6719):eadp0614.
[18] 冯希.海洋疣微菌的分离、鉴定及疣微菌门分类体系整理[D].济南:山东大学,2021.FENG X.Isolation,polyphasic taxonomy of marine strains of verrucomicrobia and updation the classification system of verrucomicrobia[D].Jinan:Shandong University,2021.(in Chinese)
[19] 金川博.海洋疣微菌的分离、鉴定及比较基因组分析[D].济南:山东大学,2022.JIN C B.Isolation,identification and comparative genomics analysis of marineverrucomicrobia[D].Jinan:Shandong University,2022.(in Chinese)
[20] 郭战胜.威海典型人工鱼礁区微生物群落结构特征研究[D].济南:山东大学,2022.GUO Z S.Research on the characteristics of microbial community in the typical artificial reef area of Weihai[D].Jinan:Shandong University,2022.(in Chinese)
[21] 张松林,王晓宇,郭俊霞,等.磷和根际土壤菌群调控川丹参有效成分含量的机理[J].分子植物育种,2023,21(20):6874-6885.ZHANG S L,WANG X Y,GUO J X,et al.Mechanisms of phosphorus and root zone soil microbial regulating active ingredient content of Chuandanshen[J].Molecular Plant Breeding,2023,21(20):6874-6885.(in Chinese)
[22] 付博阳,张钧浩,杨明晓,等.追氮时期对强筋小麦根际土壤微生物群落结构的影响[J].河北农业大学学报,2022,45(3):1-8.FU B Y,ZHANG J H,YANG M X,et al.Effects of nitrogen topdressing timing on microbial community structure in strong gluten wheat rhizosphere soil[J].Journal of Agricultural University of Hebei,2022,45(3):1-8.(in Chinese)
[23] 于方明,姚亚威,谢冬煜,等.泗顶矿区6种土地利用类型土壤微生物群落结构特征[J].中国环境科学,2020,40(5):2262-2269.YU F M,YAO Y W,XIE D Y,et al.Study on the soil microbial community structure associated with six land use in Siding mining area[J].China Environmental Science,2020,40(5):2262-2269.(in Chinese)
[24] 武凡琳.矿物和碳基材料对堆肥微生物群落特征和品质的影响[D].呼和浩特:内蒙古大学,2024.WU F L.Effects of minerals and carbon-based materials on compost microbial community characteristics and compost quality[D].Hohhot:Inner Mongolia University,2024.(in Chinese)
[25] 魏超.杭州湾水体氮磷营养物基准及微宇宙验证[D].北京:中国环境科学研究院,2024.WEI C.Nitrogen and phosphorus nutrient criteria and microcosmic verification in Hangzhou bay[D].Beijing:Chinese Research Academy of Environmental Sciences,2024.(in Chinese)
[26] 曲立平.海洋硅藻藻际玫瑰杆菌类群细菌的种群结构研究[D].汕头:汕头大学,2021.QU L P.Metapopulation structure of marine diatom-associated Roseobacter group[D].Shantou:Shantou University,2021.(in Chinese)
[27] 杨淋.Sulfitobacter pseudonitzschiae H46在不同藻际环境中的藻菌关系及抑藻机制研究[D].青岛:自然资源部第一海洋研究所,2023.YANG L.Study on the relationship between algae and bacteria and the mechanism of algae inhibition of Sulfitobacter pseudonitzschiae H46 in different algal environments[D].Qingdao:First Institute of Oceanography,Ministry of Natural Resources of the PRC,2023.(in Chinese)
[28] 郑鑫.不同盐度滨海水体浮游植物及微生物对氮磷的响应过程研究[D].烟台:中国科学院大学(中国科学院烟台海岸带研究所),2023.ZHENG X.Phytoplankton and microbial response processes to nitrogen and phosphorus in coastal waters at different salinities[D].Yantai:University of Chinese Academy of Sciences(Yantai Institute of Coastal Zone Research,Chinese Academy of Sciences),2023.(in Chinese)
[29] 唐紫琦.南黄海绿潮发生期间浮游生物群落特征及其相关关系研究[D].青岛:中国科学院大学(中国科学院海洋研究所),2024.TANG Z Q.Study on the characteristics and interrelationships of plankton communities during the occurrence of green tide in the southern Yellow Sea[D].Qingdao:University of Chinese Academy of Sciences(Institute of Oceanology,Chinese Academy of Sciences,2024).(in Chinese)
[30] 刘媛媛.产纤维素酶破囊壶菌的筛选及其纤维素酶功能研究[D].天津:天津大学,2020.LIU Y Y.Screening of thraustochytrids with cellulase activity and study on their cellulase function[D].Tianjin:Tianjin University,2020.(in Chinese)
[31] 王朔.海水养殖废水中磺胺甲恶唑去除及同步反硝化研究[D].大连:大连理工大学,2024.WANG S.Study on removal and simultaneous denitrification of sulfamethoxazole from mariculture wastewater[D].Dalian:Dalian University of Technology,2024.(in Chinese)
[32] 张亚鑫,肖婉,张峥,等.稻田稗属杂草致病菌的分离与鉴定[J].中国生物防治学报,2021,37(6):1276-1287.ZHANG Y X,XIAO W,ZHANG Z,et al.Isolation and identification of plant pathogens of barnyard grass in the paddy fields[J].Chinese Journal of Biological Control,2021,37(6):1276-1287.(in Chinese)
[33] OMRANE S,SGHYER H,AUD ON C,et al.Fungicide efflux and the MgMFS1 transporter contribute to the multidrug resistance phenotype in Zymoseptoria tritici field isolates[J].EnvironmentalMicrobiology,2015,17(8):2805-2823.
[34] 伍婷婷.σ factor SigW/anti-σ factor RsiW系统参与东湖假单胞菌HYS毒性相关功能的研究[D].武汉:武汉大学,2020.WU T T.σ factor SigW/anti-σ factor RsiW system participated in the study on the toxic function of HYS of Pseudomonas Donghu[D].Wuhan:Wuhan University,2020.(in Chinese)
[35] 毕伟伟.RpoS/RpoN蛋白对两种鱼源致腐菌调控作用探究[D].杭州:浙江工商大学,2020.BI W W.Regulation of RpoS/RpoNprotein in Shewanella and Pseudomonas isolated from the fish[D].Hangzhou:Zhejiang Gongshang University,2020.(in Chinese)
[36] 赵琼.凡纳滨对虾养殖池塘细菌群落代谢特征与结构功能的关系[D].哈尔滨:哈尔滨工业大学,2024.ZHAO Q.Relations between metabolic characteristics and structure,functions of bacterial communities in litopenaeus vannamei farming ponds[D].Harbin:Harbin Institute of Technology,2024.(in Chinese)
[37] 吴勇.大豆根际核心细菌合成群落的定殖活性研究[D].咸阳:西北农林科技大学,2024.WU Y.Studies on the colonisation activity of the rhizosphere core bacterial synthetic community of soybean[D].Xianyang:Northwest A &F University,2024.(in Chinese)
[38] 王佳.谷氨酸棒杆菌体内的脂酰CoA硫酯酶功能蛋白鉴定及其对脂肪酸合成的影响[D].呼和浩特:内蒙古农业大学,2021.WANG J.Identification of functional protein of acyl-CoA thioesterase in Corynebacterium glutamicum and its effect on fatty acid synthesis[D].Hohhot:Inner Mongolia Agricultural University,2021.(in Chinese)